光开关
2026 年诺贝尔生理学或医学奖授予光门控离子通道与光遗传学。这里从神经元为什么带电讲起,一章一章搭一台虚拟实验台,每个数字你都能亲手拨出来。
三分钟看懂一束蓝光,怎么拿到了诺贝尔奖
你的每一个念头、每一个动作,背后都是脑子里一群神经元在放电。想弄清哪一类神经元管什么,最直接的办法是只让那一类放电,还要快到跟得上毫秒级的放电,说停就停。电极挑不出细胞的类型,药又太慢。后来人们从一种绿藻身上找到一个见了蓝光就开门的蛋白质,让想研究的那一类神经元读出它的基因,从此一束光就能让它们按毫秒放电。这就是光遗传学,2026 年的诺贝尔生理学或医学奖奖给了它。
- 1973有人提出:一种细菌的蛋白质见了光就把质子往外送,是一个光驱动的泵
- 2002–03纳格尔、黑格曼等人发现:绿藻里的 ChR1、ChR2 是被光直接打开的通道
- 2005ChR2 装进大鼠海马的培养神经元,蓝光一下一下地让它们放电
- 2007只让一类和保持清醒有关的神经元读出 ChR2,光每秒闪 5 到 30 下,睡着的小鼠醒得更快
- 202610 月 5 日,诺贝尔生理学或医学奖授予戴塞洛斯、黑格曼和纳格尔
读完你能带走的三样东西
一条完整的推理链
从高中课本里的电压、离子、光子出发,一步一步走到获奖的那一步。不用先懂神经科学,第 0 章用二十分钟把要用的工具补齐。
一个分辨数字的习惯
站里每个数都交代了来路:是实验量出来的,还是本站模型算出来的。以后读新闻、读论文,看到一个数先问一句它是怎么来的。
一个发现真实的样子
最好用的工具,来自一群人研究绿藻为什么会朝着光游。当年做这件事的人,自己也没想到它会跟医学扯上关系。
写给零基础的高中生。家长陪着读也行;只看短片、只听小说,也能弄明白这个奖为什么给了它。
按你的时间,选一条路
第0章 先修速览:二十分钟备齐工具
拧亮一倍的光,每个光子会更有劲吗
开篇故事第 0 集 · 氯离子进细胞,电流却向外一束蓝光的十八天
大厅的大屏上,蓝光过敏的名字从榜单中间一路滑到最底下一行,旁边弹出了一个红色的叉。
系统提示摸底测第 7 题判定:蓝光过敏认为钾离子进细胞、钠离子出细胞、氯离子进细胞这三件事里,只有钠离子出细胞算外向电流,答案错误,本题不得分。
系统提示当前排名倒数第一,按营地的规矩,摸底测的名次决定第一周洗暗室的顺序,排在最后的人第一个上场。
二十分钟之前,十几个营员刚把行李箱拖进宿舍楼大厅,每人领到一块答题板,饮水机在墙角咕嘟咕嘟地响,大理石地面把行李轮子的声音放大了好几倍。摸底测一共六块,电压、离子、细胞膜、基因、光子和指数衰减各占一块,第六题问的是胞外的钠离子有 145 mM、胞内只有 10 mM,一个只放钠离子过的通道打开,钠离子往哪边走。蓝光过敏想都没想就写了往细胞里,答对了,他把答题笔往桌上一拍,对旁边的电极老炮说:“进细胞就是内向电流,这套题简直是送分,我要是排在你后面,第一周的暗室我替你洗。”
许一舟在草稿纸上给第七题的三件事各画了一个箭头,画到氯离子那一笔时笔尖停住了,他隐约觉得物理课上学过的某个约定要在这里冒出来,可又不敢确定生物有没有换一套规矩,所以没有接话。
屏幕上的叉一直亮着,蓝光过敏把答题笔捏得咔咔响,冲着屏幕喊:“氯离子明明走进了细胞,我是照字面答的,凭什么判我错?”
岑老师端着保温杯从楼梯口走过来,把杯子放在前台的柜台上。“电流的方向只按正电荷来算。往屋里放进一块冰,和从屋里拿走一块热炭,屋里的热量都在变少。氯离子带负电,走进细胞,对细胞来说就和正电荷走出去是一回事。”
许一舟这才把笔放下,把三个箭头重新画了一遍,抬头说:“钠出去和氯进来,对细胞的效果都是正电荷往外,只有钾进来才是内向。”岑老师嗯了一声,端起保温杯往楼梯走,走到一半回头补了一句,第七题的分数不会改。
熄灯之后,宿舍楼的走廊安静下来,营地论坛上却很快盖起了一栋关于第七题的楼。
第七题的氯离子明明走进了细胞,为什么判成外向电流
1L许一舟我把第七题的三件事各换成正电荷画了箭头,钠出细胞和氯进细胞指向细胞外,钾进细胞指向细胞里,整理成了一张表。
2L蓝光过敏氯离子明明走进了细胞,凭什么判成外向电流,这道题肯定出错了,我今晚就要提交申诉,楼上的表我不认。
3L电极老炮楼上的申诉不会成功。我拆收音机的时候也碰到过这个约定,负电荷往左走,图纸上就当成正电荷往右走。
4L衣藻本藻补一条出处,外向电流指的是正电荷离开细胞的方向,进细胞的氯离子要先换成往外走的正电荷,再来判断方向。
5L岑(带教认证)1L 的表整理得对。蓝光过敏的申诉驳回,擦滤光片的抹布挂在暗室的门后面,自己去拿。
走廊尽头的公告板上多了一张便签,岑老师的字迹写着,明天下午全营到报告厅,大屏会直播今年诺贝尔生理学或医学奖的公布,便签角落里另有一行小字,暗室值日表从明晚七点开始,第一个名字是蓝光过敏。
系统结算 · 本章考点
- 电流的方向只按正电荷算:负电荷往一边走,就当成正电荷往另一边走
- 正电荷进入细胞的电流叫内向电流,离开细胞的叫外向电流
- Cl⁻ 进细胞是外向电流,Na⁺ 出细胞也是外向电流,K⁺ 进细胞是内向电流
- 胞外 Na⁺ 145 mM、胞内 10 mM,只放 Na⁺ 的通道一开,Na⁺ 顺着浓度差往细胞里走,是内向电流
- Na⁺ 和 K⁺ 各带一个正电荷,Cl⁻ 带一个负电荷
- 后面会一再用到六样工具:电压、离子、细胞膜、基因、光子和指数衰减
后面的章节会一再用到六样小东西:电压、离子、细胞膜、基因、光子和指数衰减,每一样在初中或高中课本里都见过,只是可能有一阵子没碰了。每一块只占一小段,末尾有一道自评题,读得快的话二十分钟能过完。后面的章节第一次用到某一块时会链回这里,所以每一块都能单独读。
学完这一章你应该能做到
- 说出电压的单位和意思,判断一股电流算内向还是外向
- 写出 Na+、K+、Cl−、Ca2+ 各带几个电荷,读懂「145 mM」这类浓度
- 说清离子为什么穿不过细胞膜,以及通道和泵各自怎么让离子过去
- 解释每个细胞都带着全套基因,却做出不同的蛋白质
- 用 E = hc/λ 比较两种颜色的光子能量,并把光强换算成每秒每平方毫米的光子数
- 用 e−1 和 e−3 估计经过一个、三个时间常数后还剩多少
0.1 为什么电压像水压,又不完全像?
电压是推电荷的劲:两点之间有电压,电荷就被推着从一点走向另一点,电压越大推得越猛。单位是伏特,神经细胞里的电压很小,习惯用千分之一伏,毫伏,记作 mV。神经元是脑里靠电信号工作的细胞,外面包着一层膜(0.3 讲)。它没在放电的时候叫静息,静息时膜内比膜外低几十毫伏,本站后面的模拟统一取 −65 mV。
打个比方
水从水压高的地方流向水压低的地方,水压差越大水流越猛,电压差推电荷也是这个样子。
类比失效处:水只有一种,一律流向低处。电荷有正有负,同一个电压差把正电荷推向电压低的一侧,把负电荷推向电压高的一侧,方向相反。
正电荷往右走,和负电荷往左走,对电路造成的效果一样,所以约定电流的方向只按正电荷算:负电荷往一边走,就当成正电荷往另一边走。落到细胞上,就得到后面天天要用的两个词:正电荷进入细胞的电流叫内向电流,离开细胞的叫外向电流。下面用到的 Na+ 是带一个正电荷的钠离子,Cl− 是带一个负电荷的氯离子,0.2 细讲。
Na+ 进入细胞
我先看它带什么电:正电。正电荷进细胞,是内向电流。
Cl− 进入细胞
我先看它带什么电:负电。负电荷进细胞,等于正电荷出细胞,是外向电流。最怕见到「进」字就写内向,所以先看正负。
差别在:进细胞的电荷是正是负,电流的方向就反过来。
一个 Cl− 从细胞里走到细胞外,这股电流算内向电流还是外向电流?电流的方向指向细胞里还是细胞外?
变式:把 Cl− 换成 Ca2+,从细胞外进入细胞里,电流方向变不变?同样数量的离子,电流的大小变不变?
后面还会碰到几个单位和词头,先在这里说清。电流是每秒流过多少电荷,单位是安培,写作 A。词头 m(毫)是千分之一,µ(微)是百万分之一,n(纳)是十亿分之一,p(皮)是万亿分之一,所以 µA 是微安,pA 是皮安。神经元里的电流小,常常用到这两个。
0.2 细胞里外的盐水,浓度差多少?
食盐溶进水里,钠原子丢掉一个电子,氯原子多得一个电子,水里就漂着带电的原子。丢几个电子带几个正电荷,得几个电子带几个负电荷。
离子(ion):带了电的原子。Na+ 和 K+ 各带一个正电荷,Ca2+ 带两个正电荷,Cl− 带一个负电荷。
浓度(concentration):每升溶液里溶了多少。mM 是毫摩尔每升,1 摩尔约含 6.02×10²³ 个粒子,毫摩尔是它的千分之一。
细胞外(简称胞外)和细胞里(胞内),三种主要离子的浓度差得很远:Na+ 外多内少,K+ 内多外少,Cl− 外多内少。离子在水里不停乱撞,浓的一边离子多,每秒撞到对面去的比撞回来的多,结果是净移动到稀的一边,这叫扩散,没有谁在指挥,只是数量上的差。所以只要让某种离子过得了膜,它就顺着浓度差走。
胞内 K+ 是 140 mM,胞外是 5 mM。如果膜上一个只放 K+ 过的孔打开了,只看浓度差,K+ 净往哪边走?
变式:换成 Cl−(胞外 120 mM,胞内 5 mM),它净往哪边走?
成熟神经元里,胞内氯的浓度会在 5 到 15 mM 甚至更高之间变化,第 12 章会用到这一点。
0.3 离子为什么穿不过细胞膜,又是怎么过去的?
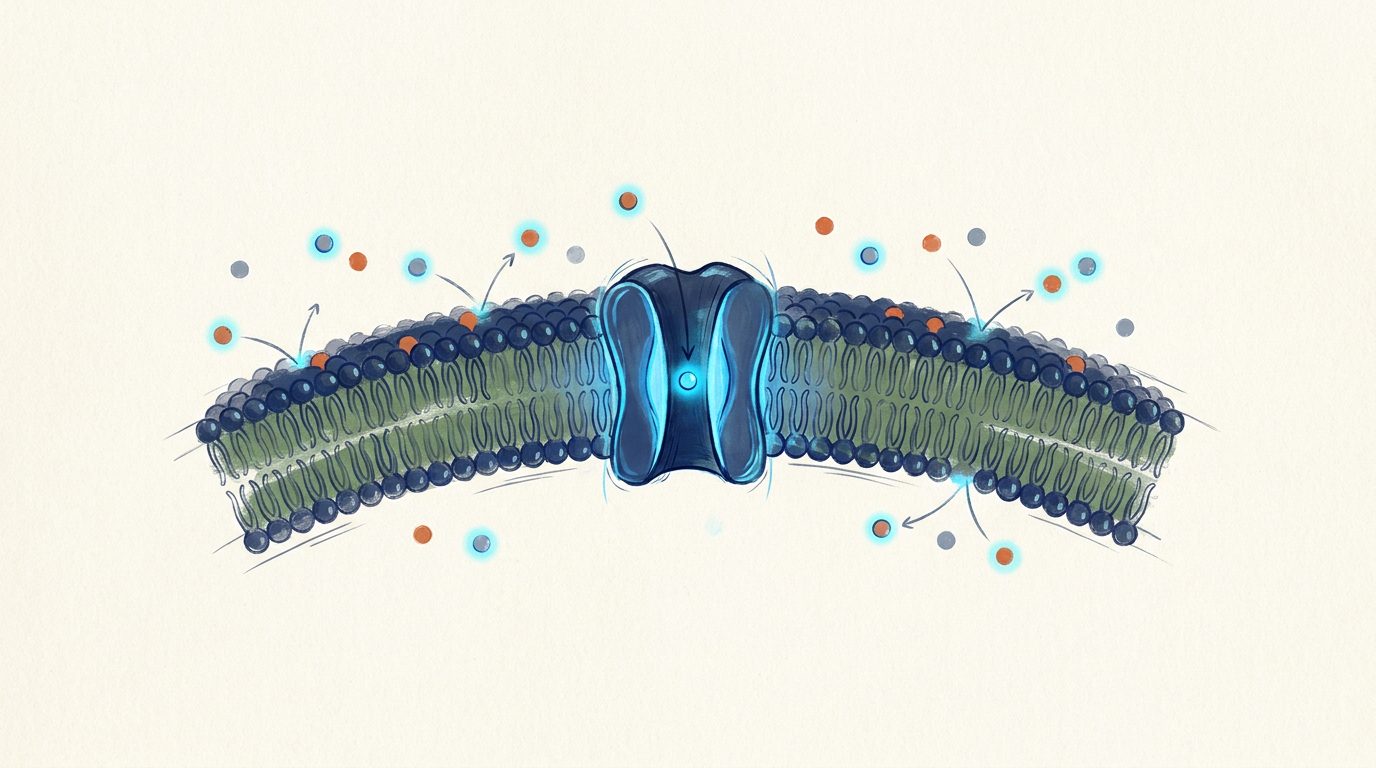
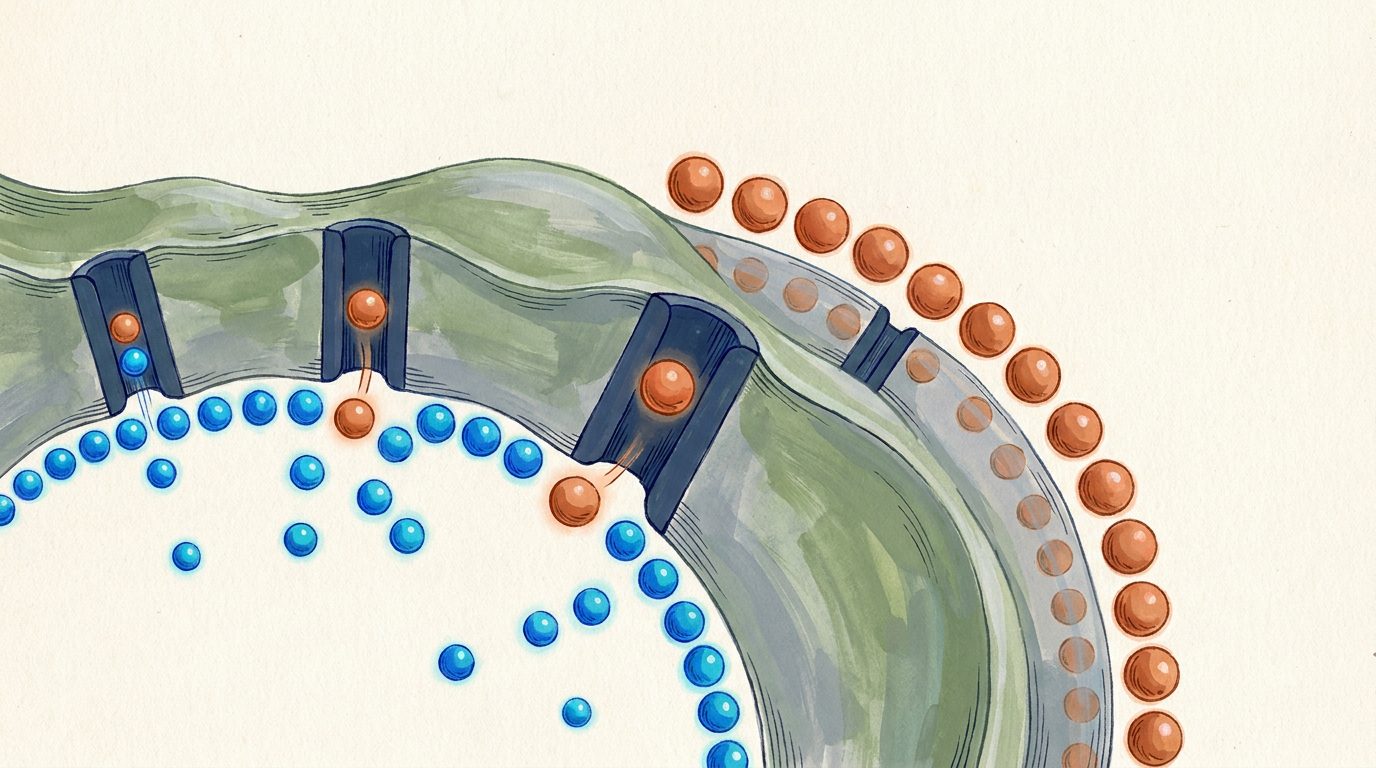
往油里倒一勺盐水,盐水会聚成水珠,不肯混进油里。细胞膜的主体是两层油分子,带电的离子待在油里很不自在,几乎穿不过去。可细胞需要让离子进出,于是膜上嵌着蛋白质,离子只能从它们那里过。
通道(ion channel):穿过膜的蛋白质孔。孔开着,离子顺着浓度差和电压自己流过去,不用能量,门开一次就放过很多离子。
泵(ion pump):用能量搬运离子的蛋白质,能把离子逆着浓度差搬过膜,一轮动作只搬少数几个。
后面会用光去推动这两样东西,一种是光驱动的泵,一种是光打开的通道,哪个更划算,第 6 章回来算。
某种离子细胞外浓、细胞里稀。要让它顺着浓度差流进细胞,该用通道还是泵?要把它从细胞里搬回细胞外呢?
变式:一个蛋白质每吸收一个光子,就把一个离子搬过膜,不管两边谁浓谁稀。它是通道还是泵?
0.4 为什么每个细胞带着全套基因,做出的蛋白质却不一样?
蛋白质是细胞里干活的分子,通道、泵、感光的分子都是蛋白质。一个蛋白质是氨基酸排成的长链,排列顺序决定它折成什么形状,形状决定它干什么。顺序写在 DNA(细胞里存配方的长分子)上,写着一个蛋白质配方的那一段 DNA 就是基因。第 1 章要认识的光开关,指吸了光就能改变细胞电状态的蛋白质,它自己也是一个蛋白质,用到的那一段由 315 个氨基酸排成。
基因(gene):DNA 上写着一个蛋白质配方的一段。细胞照着配方读出来,做出蛋白质。
你身上几乎每个细胞带着同一整套配方,神经元、肌肉细胞、皮肤细胞都一样,但每个细胞只读其中一部分。读哪些,由基因旁边的一段控制序列(一段 DNA,像这个基因的开关)和细胞里已有的蛋白质一起决定。读的不同,做出的蛋白质就不同,细胞的样子和本事也就不同。第 10 章会用到这一点:一段基因如果只在某一类细胞里被读,交给所有的细胞,也只有那一类细胞会做出对应的蛋白质。
一个人的神经元和皮肤细胞,DNA 里的基因一样吗?它们做出的蛋白质种类一样吗?各用一句话说理由。
变式:一个只在肝细胞里被读的基因,神经元的 DNA 里有这一段吗?神经元会做出对应的蛋白质吗?
0.5 蓝光和黄橙光的光子,哪个更有劲,一束光里有多少个?
光是波,两个波峰之间的距离叫波长,波长决定颜色,可见光从 400 nm 的紫到 700 nm 的红,1 nm 是十亿分之一米。后面的光开关吸收约 470 nm 的蓝光,还会用到约 590 nm 的黄橙光。
光又是一份一份的,一份叫一个光子,一个光子的能量由波长决定:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| E | 一个光子的能量,单位焦耳(J) | 光子越有劲,数越大 |
| h | 普朗克常数,6.63×10−34 J·s | 固定的常数,连起「波」和「一份一份」 |
| c | 光速,3.00×108 m/s | 另一个固定的常数 |
| λ | 波长,代入时要换成米 | 在分母上,波长越短能量越高 |
| hc | 两个常数乘起来,6.63×10−34 × 3.00×108 ≈ 1.989×10⁻²⁵ J·m | 下面每次都要用 |
470 nm 蓝光
我先把波长换成米,最怕漏掉 10−9 这个换算:470 nm = 4.70×10⁻⁷ m。E = 1.989×10⁻²⁵ ÷ 4.70×10⁻⁷ ≈ 4.23×10⁻¹⁹ J。
590 nm 黄橙光
同样先换成米:590 nm = 5.90×10⁻⁷ m。E = 1.989×10⁻²⁵ ÷ 5.90×10⁻⁷ ≈ 3.37×10⁻¹⁹ J。
差别在:波长长约四分之一,单个光子的能量就低约五分之一,波长在分母上。
光强是每秒落在单位面积上的能量,也就是功率除以面积,常写成 mW/mm²(毫瓦每平方毫米),1 W 就是每秒 1 J。每秒落下的总能量除以一个光子的能量,就是每秒落下多少个光子。算 470 nm、1 mW/mm²:1 mW = 10−3 J/s,每平方毫米每秒落下 10−3 J,光子数 = 10−3 ÷ 4.23×10⁻¹⁹ ≈ 2.4×10¹⁵ 个每秒。换成 590 nm,每个光子少了点劲,同样的功率里光子反而多,约 3.0×10¹⁵ 个每秒。
绿光的波长是 530 nm,光强是 1 mW/mm²。每秒落在每平方毫米上的光子大约有多少个?
变式:同样是 530 nm,把光强提高到 10 mW/mm²,光子数变成多少?
0.6 关灯以后电流为什么不是一下子归零,还剩多少怎么算?
热水放凉,一开始降得快,后来越降越慢,因为每一刻降多少,跟它比室温还高出多少成正比。下面说的「剩下的量」,就是这个高出的部分。写成一小步一小步的更新:每过一小段时间 Δt,剩下的量少掉 Δt/τ 那一份,τ 叫时间常数,单位和时间一样。取 τ = 10 ms,Δt = 1 ms,每步少掉 1/10、剩 0.9,走 10 步剩 0.9 的十次方,约 0.349;一步切成 0.1 ms,走 100 步,0.99 的一百次方约 0.366;切得再细,趋近 0.368,写作 e−1(e 是自然常数)。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| x(t) | t 时刻还剩的量 | 比如关灯后剩下的光电流 |
| x0 | 起始的量 | t = 0 时的值 |
| e | 自然常数,约 2.718 | 每一小步都按固定比例少掉,切到无限细就出现它 |
| τ | 时间常数,和 t 用同一种时间单位 | 每过一个 τ,剩下的乘一次 0.368 |
所以一个 τ 后剩约 37%,三个 τ 后剩约 5%(e−3 ≈ 0.050)。第 8 章会看到,光开关关灯后电流的 τ 约 10 ms,30 ms 后只剩约 5%。
指数衰减
每个 τ 乘 0.368,越往后每次掉得越少,永远归不了零。
常见的错想法
以为一个 τ 就掉光,或者每个 τ 掉同样多。
差别在:每次掉的是剩下部分的固定比例,掉的量一次比一次少。
光电流关灯后以 τ = 10 ms 衰减,起始是 100 pA。关灯 20 ms 后还剩约多少 pA?
变式:τ = 5 s 时,要等多久,电流才降到起始值的 10% 以下?按整数个 τ 来数。
章末自测:六道题,混着做一遍
六道题覆盖前面的六块,答不出的那一块回去再读。
细胞外 Na+ 是 145 mM,细胞里是 10 mM。让一个只放 Na+ 过的通道打开,Na+ 净往哪边走?这股电流是内向还是外向?
变式:换成 K+(胞内 140 mM,胞外 5 mM),同样的通道打开,离子的方向和电流的类型各是什么?
膜上同时发生三件事:K+ 进细胞,Na+ 出细胞,Cl− 进细胞。哪几件算外向电流?
变式:如果是 Ca2+ 出细胞,同时 Cl− 出细胞,两件事的电流方向各是什么?
一个蛋白质每吸收一份能量,就把一个 Na+ 从浓度低的细胞里搬到浓度高的细胞外。它是通道还是泵?依据是什么?
变式:一个蛋白质平时关着,光一照就打开一个孔,离子顺着浓度差涌过去。它是通道还是泵?
研究者想让只有一类神经元做出某种蛋白质,却把这个蛋白质的基因送进了很多种细胞。按 0.4 的道理,这个想法有可能成功吗?靠什么?
变式:反过来,如果这段控制序列在所有细胞里都被认得,会得到什么结果?
一个 400 nm 的紫光光子和一个 700 nm 的红光光子,谁的能量更高?大约高多少倍?
变式:两个光子的波长分别是 470 nm 和 590 nm,谁的能量更高?比值约是多少?
光电流起始是 200 pA,时间常数 τ = 10 ms。关灯 10 ms 后还剩约多少 pA?再过 10 ms 呢?
变式:起始 200 pA,换成 τ = 5 s,10 s 后还剩约多少?
留给你的问题
第 6 章会问:同样要让一个神经元放电,光驱动的泵和光打开的通道,哪一种需要的光子更少?先凭这一章的内容猜一猜,再写下你的理由。
不看材料,写下这一章的三堵墙
第一堵:电流的方向按正电荷算,所以 Cl− 进细胞反而是外向电流。第二堵:通道让离子顺着浓度差自己流,泵花能量逆着浓度差搬,两者不能混。第三堵:每过一个时间常数只剩约 37%,要三个才降到约 5%,一个时间常数远没有「掉完」。
第1章 这个奖,奖的是一个开关
电极、药、光,没有一个自己会选类型
开篇故事第 1 集 · 快又能停的电极判了输一束蓝光的十八天
报告厅大屏上的直播还在倒计时,一行淡蓝色的系统判定先压了上来,电极老炮的方案没有通过。
系统提示光台出题:叫醒一只睡着的虚拟小鼠,只碰下丘脑里和保持清醒有关的分泌素神经元,别的细胞一概不动,反应要快到跟得上毫秒级的放电,还要能随时停下。
系统提示电极老炮提交的方案是往光台里的下丘脑通电,三项要求里有一项没有做到,方案判为未通过,他要加洗一晚暗室。
一刻钟之前,全营在报告厅里坐满,等着大屏直播今年诺贝尔生理学或医学奖的公布,下午的太阳从高窗斜着照在屏幕上,投影仪的风扇吹出一阵阵热风,蓝光过敏缩在最后一排,今晚轮到他洗暗室。岑老师趁直播还没有开始,把题目投到屏幕上,只说了一句话,谁有方案谁就交,没有过关的人加洗一晚暗室。电极老炮第一个举了手:“电极。通电几毫秒就起效,一断电就停,快和停我都占了,你们还要去找什么新东西?”许一舟在本子上给快和停各画了一个勾,一时挑不出毛病,其他人也没有出声。
现在判定弹了出来,电极老炮把椅子往后一推,椅腿在地板上划出一声尖响:“快我做到了,停我也做到了,凭什么判我没过?”
岑老师说:“快和停你都做到了。可题目要的是只叫醒这一类细胞,电极选不了细胞的类型。电流经过那块组织的时候,里面的细胞一视同仁,催着别人放电的和压着别人不让放的,一起被推。”
就在这时,大屏上的倒计时归零,下方滚出了一行字幕。
系统提示直播字幕:2026 年 10 月 5 日,瑞典卡罗琳医学院的诺贝尔大会公布,生理学或医学奖授予卡尔·戴塞洛斯、彼得·黑格曼和格奥尔格·纳格尔,以表彰他们在光门控离子通道和光遗传学方面的发现。
报告厅里静了几秒,岑老师看着屏幕说:“2007 年有人用这个办法叫醒了一只睡着的小鼠,光每秒闪 5 到 30 次,它从睡着到醒来的时间就变短,每秒只闪 1 次,就没有这个效果。今天的奖,奖的就是把这件事做成的办法。”电极老炮盯着字幕里的光字看了很久,把答题板翻过来,在背面写下了明晚两个字。
夜里,营地论坛上的楼盖得比前一天晚上还要高,高到要翻好几页才看得完。
电极又快又能停,诺贝尔大会为什么偏偏把奖给了光
1L衣藻本藻我先核了公布的信息,今天只是公布,颁奖典礼要等到 12 月 10 日的斯德哥尔摩,三位获奖者公布当天的年龄是 54、71、73。
2L蓝光过敏我在暗室里一边擦滤光片一边看了回放,三位获奖者每人拿 1200 万瑞典克朗,光开大一点果然就行了。
3L电极老炮楼上的数字不对,1200 万瑞典克朗是整份奖金,三个人平分。我还是不服,药能按受体认细胞,再配上电极,凭什么非得用光?
4L许一舟药要先在组织里扩散,撤药又只能等它被冲走,起落都由组织说了算,跟不上毫秒级的放电,也没法说停就停。
5L岑(带教认证)光对谁都一视同仁,选谁要看哪一类细胞读出了接收器的基因,接收器由基因管,不由光管。电极老炮的暗室排在明晚。
散场之前,岑老师在报告厅门口贴了一张便签,上面画着两只杯子,中间隔着一层膜,杯壁上分别标着 140 mM 和 5 mM,旁边只有一行字,明天上午电生理室见,电压表会停在哪个数,先写在便签背面。
系统结算 · 本章考点
- 睡着的小鼠被光叫醒要同时成立三样:光到达那一小群细胞、只有那一类细胞听得懂光、细胞的反应跟得上光
- 三把尺子是只碰一类细胞、毫秒级、能开也能关;电极又快又能停,缺的是选类型
- 药物能按受体选类型,但要等药在组织里扩散、被清除,跟不上毫秒级的放电,也没法随时停
- 光对谁都一视同仁,脑里的神经元本来对蓝光没有反应;选谁由细胞身上的基因管,不由光管
- 2007 年的实验里,每秒闪 5 到 30 次的光缩短了小鼠从睡着到醒来的时间,每秒闪 1 次没有这个效果
- 10 月 5 日是公布,颁奖典礼在 12 月 10 日的斯德哥尔摩;奖金 1200 万瑞典克朗,三人平分
- 三位获奖者公布当天的年龄是 54、71、73,获奖理由是光门控离子通道和光遗传学方面的发现
2007 年,一个研究组让一只睡着的小鼠醒了过来。没有出声,也没有碰它,只是顺着一根细光纤,往它脑深处一块叫下丘脑的区域里,一小群叫分泌素神经元的细胞上亮了一束蓝光,这群细胞和保持清醒有关。光每秒闪 5 到 30 次,小鼠从睡着到醒来的时间就变短;光每秒只闪 1 次,没有这个效果。这背后有一个困扰了神经科学几十年的问题:脑里有许多种靠放电传信号的细胞,叫神经元,想知道哪一种细胞负责哪件事,为什么一直做不到?2026 年 10 月 5 日公布的诺贝尔生理学或医学奖,奖的就是把这件事做成的那个办法。
学完这一章你应该能做到
- 说出让睡着的小鼠被光叫醒的实验,必须同时成立的三样东西
- 说清电极和药物各在哪一把尺子上停住,并推出「光加接收器」这个办法
- 用一句话各自讲出黑格曼、纳格尔、戴塞洛斯在「把开关装起来」这件事上做的那一步
- 把一句话归到证据四档的某一档,知道这一档该怎样使用
- 把「10 Hz、2 s、10 ms」展开成一份脉冲起止时间表
这一章给虚拟实验台装第一块:一份由三个旋钮组成的实验设置,分别是挑哪一类细胞、用什么节奏给光、要它开还是关。之后每一章造出的真零件,从神经元到光开关,都要接在其中某一个旋钮上,现在它们还只是三个空位。
1.1 一只睡着的小鼠被光叫醒,要做成这件事,哪几样东西得同时成立?
拿到一个听起来很神奇的实验,我先做一件事:把它拆成「必须同时成立的几样东西」,每一样问一遍,缺了会怎样。睡着的小鼠被光叫醒,至少要三样。第一,光得到达那一小群细胞,所以要有一根光纤把光送进脑里。第二,只有那一类细胞听得懂光,旁边的细胞不能有反应,否则小鼠醒来的原因没法归给它们。第三,细胞的反应要跟得上光。神经元靠一下一下的电脉冲传信号,一次叫一次放电,只持续几毫秒(一毫秒是千分之一秒),光一闪就放一次电,反应慢了,闪一次和放一次就对不上号。
实验里还有一个可以拨的量:光闪得多快。每秒闪几次叫频率,单位是赫兹,写作 Hz,5 Hz 是每秒闪 5 次。研究者发现,5 到 30 Hz 的节奏能缩短小鼠从睡眠到觉醒的时间,1 Hz 不行。
必要条件清点:拿到一个实验,先写出它成立必须同时满足的几样东西,再逐样问现有的手段谁能做到。
同一个睡眠实验换了两种做法。甲:光纤把光送到位,光很亮,但下丘脑里所有的神经元都对光敏感。乙:只有分泌素神经元对光敏感,光纤也送到了位置,可这类细胞要等光照开始后好几秒才有反应,而且快慢不定。拿三样东西去量,两种做法各缺了哪一样?
变式:想让小鼠脑里的一类神经元安静下来,而不是兴奋起来,三样东西需要改写吗?改在哪一样上?
1.2 电极和药物都是现成的,为什么做不成上面那件事?
目标:睡着的小鼠,只叫醒分泌素这一类神经元,别的细胞一概不动,要快到跟得上毫秒级的放电,还要能随时停。手边有三样现成办法:往脑里插一根电极通电,往脑里注射一种药,或者直接打一束光。你觉得哪一样能行?
答完再看
三样都不行,各缺一块。电极又快又能停,可那一小块脑组织里各种细胞和神经纤维混在一起,电流一通就一起受影响,它选不了类型。药物能按受体选类型,可它要在组织里扩散开才起作用,撤的时候又只能等它被冲走,一来一回都由组织说了算,跟不上毫秒级的放电,也没法说停就停。光来去都是瞬间,可脑里的神经元本来对蓝光没有反应,光打上去什么也不发生。
先把电极认真走一遍。它真的好用:插进下丘脑,通电,电流把附近细胞的膜电压推过放电的门槛(门槛第 3 章讲),它们马上放电,断电就停。它只差一样,分不清谁是谁。有的神经元催着下一个细胞放电,有的压着不让放,电流经过时它们一视同仁。Aravanis 等人 2007 年的光纤论文,摘要里就直说了:电极没法可靠地选中某一类细胞。
再走药物。细胞表面有只认某种分子的受体,药物按受体选细胞,选择性比电极好得多。可它要从注射的地方在组织里扩散开,走到受体旁边,再和受体结合,才开始起作用;要撤药,也只能等它被分解或被冲走。这一来一回花的时间由组织决定,不由你下命令的那一刻决定,而放一次电只要几毫秒,没法让你说「就在这一刻,让它放电」。第 4 章会把药物这堵墙再走细一点。
电极
快,毫秒级,能随时停。分不清细胞类型,刺激的是电极周围所有的东西。
药物
能按受体选细胞类型。起和落都要等药在组织里扩散、被清除,跟不上毫秒级的放电,也没法随时停。
差别在:一个缺「选类型」,一个缺「够快」,两把尺子各只拿到一把。
自己推一遍:从两堵墙到一个新部件
药物为什么能分细胞类型?分类型靠的是什么东西?
想好了再看
靠受体:只有一类细胞的表面长着认得这种药的蛋白质,别的细胞没有,药就只作用在它身上。选择性的来源,是细胞身上有没有一个特定的蛋白质。
一类细胞身上有没有某个蛋白质,由什么决定?分类型这件事,能不能从药转交给别的东西?
想好了再看
由基因决定(第 0 章 0.4):细胞带着全套基因,读哪一段,就做出哪个蛋白质。只让一类细胞读某一段基因,这一类细胞就独占这个蛋白质。分类型的活,可以交给基因。
这个蛋白质该能做什么,药才可以不要,换成光?
想好了再看
它要能吸收光,吸光后改变细胞的电。光本身不分类型,一束光照上去所有细胞都被照到,可只有带着这个蛋白质的细胞会响应。选谁,由蛋白质管,不由光管。
对这个蛋白质,还有什么要求,才不会又掉回「太慢」那堵墙里?
想好了再看
从光到电之间不能隔着太多站传话。最好吸光的部分和让离子流动的部分就在同一个分子上,吸光后孔直接打开。这个要求,决定了该去哪里找它。
打个比方
电视遥控器发出的红外信号会照到整个客厅,可只有装了接收器的电视会换台。光遗传学里,光是遥控器的信号,细胞身上的光敏蛋白质是电视里的接收器。光对谁都一视同仁,只有装了接收器的细胞听得见。
类比失效处:遥控器的信号带着编码,不同的电视认不同的码,一个遥控器能分别指挥好几台。一束蓝光里没有编码,对所有细胞一模一样,选择性全部来自细胞身上有没有接收器,也就是来自基因,不来自光。
所以这个新部件要同时做到三件事:能感光,吸光后细胞的电马上改变,而且是蛋白质,由基因规定谁拥有它。电极和药物各缺一把尺子,光加上这样的接收器,三把尺子才凑齐。
假如明天有人造出一种药,只作用于一类神经元,起效只要几毫秒。三把尺子里它已经满足了哪两把?第三把要看什么才能判断?
变式:把这种药换成一根电极,三把尺子里它满足了哪几把,缺的是哪一把?
有人说:只要光束够细、够准,不用给细胞装接收器,光自己就能只选中一类细胞。请构造一个具体情形,说明这个想法行不通。
变式:光斑缩到刚好只盖住一个细胞,上面两层理由里哪一层仍然成立?
答辩:如果我是审稿人
你说电极「做不到」选类型,这个说法是不是太绝对了?电极刺激(脑深部电刺激)在医院里就用来治病。
参考防守(先自己组织语言再看)
说法要限定。Aravanis 等人写的是电极没法「可靠地」选中某一类细胞,意思是在混杂的组织里,电流本身给不出选择。治疗用的脑深部电刺激确实有效,只是它到底作用在哪一类细胞上,至今有争论,Aravanis 和 Gradinaru 的摘要都提到了这一点。所以该写成「电极做不到按类型刺激」,不能写成「电极没有用」。
1.3 2026 年 10 月 5 日公布的奖,奖给了谁,奖的是什么?
2026 年 10 月 5 日(周一),瑞典卡罗琳医学院的诺贝尔大会公布,当年的生理学或医学奖授予三个人。获奖理由,中新网的译法是「以表彰他们在光门控离子通道和光遗传学方面的发现」。奖金 1200 万瑞典克朗,三人平分。颁奖典礼在 12 月 10 日的斯德哥尔摩,10 月 5 日这天是公布。
| 获奖者 | 年龄 | 单位 |
|---|---|---|
| 卡尔·戴塞洛斯(Karl Deisseroth) | 54 | 斯坦福大学;霍华德·休斯医学研究所 |
| 彼得·黑格曼(Peter Hegemann) | 71 | 柏林洪堡大学 |
| 格奥尔格·纳格尔(Georg Nagel) | 73 | 维尔茨堡大学 |
诺贝尔委员会主席佩尔·斯文宁松的意思是,光遗传学让我们能用过去只能梦想的方式绘制大脑的图谱。
下面这句话里有两处写得不对,找出来并改正:「2026 年 10 月 5 日,诺贝尔奖颁给了三位科学家,每人分到 1200 万瑞典克朗。」
变式:按表 1-1,三位获奖者里年纪最大的和最小的,相差几岁?
把开关装起来要三步,后面三节一步一节地走。第一步,弄清绿藻的光电流为什么那么快,推测感光的接收器和通道是同一个分子,这是黑格曼的路。第二步,把那条基因放进一个干净的细胞,证明蛋白质自己就能被光直接打开,这是纳格尔和黑格曼合作做的。第三步,让它在哺乳动物的神经元里工作,再装进活动物的脑里,这是戴塞洛斯和合作者从 2005 年起的路。这是按获奖名单挑出来的主线,参与的人比三个名字多,第 16 章再讲。
光门控离子通道(light-gated ion channel):嵌在细胞膜里的蛋白质,膜上的孔平时关着,吸收光以后自己打开,离子就能从孔里流过去(流向哪边,第 2 章讲)。
光遗传学(optogenetics):把光敏感的蛋白质的基因交给某一类细胞,让它们读出来,再用光控制这一类细胞活动的办法。
1.4 想让神经元听光,为什么要去绿藻里找接收器?
要给神经元装一个对光有反应的部件,还要它反应够快。现成最熟悉的光接收器,是眼睛里的视紫红质。如果把它的基因交给别的神经元,让神经元读出来,你觉得光一照会怎样?
答完再看
第二个对。视紫红质吸光之后,要推动一个分子,再推动下一个,最后才轮到一个通道改变开合,每一站都要时间。2002 年格罗·米森伯克的实验室试过这条路:把果蝇的三个基因一起交给神经元,神经元对光敏感了,开和关却要好几秒(博伊登 2011 年回顾里的说法)。第一个错在把眼睛的速度当成了接收器自己的速度。第三个错在神经元其实做得出来,上面那个实验就做成了。
一串传话要好几秒,对要跟上毫秒放电的实验来说,这就是一堵墙。
传话式
光被一个分子吸收,它推动第二个,第二个推动第三个,最后才有一个通道打开。每一站都要时间。眼睛的感光细胞和 2002 年的三基因系统都是这样。
一体式
吸光的分子本身就是通道,吸光后孔直接打开,中间没有站。
差别在:光和电之间隔了几站传话,隔得越多,就越慢。
一体式的接收器去哪里找?线索来自一个看上去和神经科学毫不相干的地方。单细胞的绿藻衣藻没有神经,也没有眼睛,却会朝着光游,这叫趋光,感光靠的是细胞边上一个叫眼点的小斑点。1991 年,黑格曼和同事在眼点处测到了光引起的电流。1996 年,他的组测到这股电流出现得极快,光一到,延迟小于 50 微秒,不到两万分之一秒。作者的判断是,这么快,感光分子和通道只能紧密耦合,或者就是同一个通道复合体。到 1990 年代后期,黑格曼的组越来越相信,衣藻里感光的接收器和通道是同一个分子。后来黑格曼和纳格尔在 2013 年的回顾里写道,十年前设计这些实验的时候,他们没有想到,研究绿藻趋光的分子机制,会引起医学期刊读者的兴趣。
甲:光被一个分子吸收,它推动第二个分子,第二个再推动第三个,第三个才让通道打开。乙:吸光的蛋白质自己就是一个孔,吸光后孔直接打开。哪一种更适合做毫秒级的光控制?用一句话说理由。
变式:把乙改成「吸光的分子紧贴着一个孔,吸光后直接推它一下」,速度还会慢吗?光看速度,能分清这种情形和乙吗?
答辩:如果我是审稿人
延迟小于 50 微秒,只能说明感光分子和通道紧紧挨着,没法说明它们是同一个分子。黑格曼的组为什么还朝着「同一个分子」这个方向去找?
参考防守(先自己组织语言再看)
你说得对,光看速度分不开这两种情形,作者自己写的也是「紧密耦合,或者就是同一个复合体」。可两种猜测能用同一个实验分开:假如是同一个分子,把这个分子的基因单独放进一个没有衣藻那套传话分子的细胞,光照应当仍然产生电流;假如不是,实验会失败。有一个能被检验的猜测,比一个只能留着争论的猜测更值得去找。下一节就是这个实验。
1.5 找到一条基因序列,怎么证明它自己就是一个被光直接打开的通道?
到 2000 年代初,几个组各自在衣藻的基因序列库里找到了视紫红质的序列,Boyden 等 2005 年论文的引言把它们数作三个独立的组。可序列只是纸上的一串字母。要证明它编码的蛋白质自己就是被光直接打开的通道,得有一个实验。
把这条基因放进哪一种细胞里,再给细胞照光,最能说明「蛋白质自己就是光开的通道」?
答完再看
第二个对。第一个的问题是衣藻本来就有自己的光接收器和整套传话分子,测到光电流也分不清是谁的功劳。第三个只能说「长得像」,离「光一照孔就开」还差一个实验。第二个里,没放基因的那组没有电流,放了的那组有,电流就只能来自这个蛋白质。
纳格尔、恩斯特·班贝格、黑格曼等人选的就是第二种。他们用的是非洲爪蟾的卵母细胞,一种蛙的卵细胞,它和衣藻没有关系,里面没有衣藻那套传话分子。把基因交给它,让它读出这个蛋白质,再加上视黄醛(一个吸光的小分子,这类蛋白质靠它才能吸光,第 7 章会看到它嵌在哪里),一照光,卵母细胞的膜上就出现了光控的电流。
异源表达(heterologous expression):把一种生物的基因放进另一种细胞里,让这个细胞照着它做出蛋白质。
2002 年这项工作发表在 Science 上,蛋白质被命名为通道视紫红质 1。第二年,PNAS 上的第二篇报告了通道视紫红质 2,并在哺乳动物细胞里也做了功能表达。
通道视紫红质(channelrhodopsin, ChR):来自衣藻的一类光门控离子通道,靠嵌在蛋白质里的视黄醛吸光,光一照孔就开。本站口语里也叫它「光开关」。
ChR1(2002,Science)
在爪蟾卵母细胞里,光照产生选择性通透质子的电流。作者推测通道视紫红质参与绿藻的趋光。
ChR2(2003,PNAS)
直接受光开关的阳离子通道,一价和二价阳离子都能通过。摘要最后一句说,只靠光照,就能让或大或小的细胞去极化(膜电位升高,离放电更近)。
差别在:通过的离子不同,一个只让质子过,一个让一价和二价阳离子都能过。
有人宣称:把一条基因放进卵母细胞,一照光就测到了电流,所以这个蛋白质是光开的通道。可他们没有留不放基因的对照组。请构造一个具体情形,使得「放了基因的细胞一照光就有电流」成立,而结论却是错的。
变式:放了基因的细胞加了视黄醛,另一组放了基因却没加视黄醛,只有前一组在光下有电流。这个对照排除了什么,又提示了什么?
1.6 通道有了,怎么变成一套能在活动物脑里用的办法?
ChR2 有了。现在要让下丘脑里的分泌素神经元听光,夹在它们中间的邻居不听。你觉得该怎么办?
答完再看
第二个对。第一个的问题是光能选位置,选不了类型,目标细胞和邻居挨在一起,光斑再细也一视同仁。第三个的问题是颜色只决定哪一种光开关会吸光,哪些细胞里有这个开关,由基因说了算,和光的颜色无关。选类型的信息,只能写在细胞自己身上。
2005 年的论文里还没有选类型这一步。作者是埃德·博伊登、张锋、班贝格、纳格尔和戴塞洛斯,他们把 ChR2 的前 315 个氨基酸接上一个黄色荧光蛋白作标记,让培养皿里养着的大鼠海马(脑里一块和记忆有关的区域)神经元读出来,用波长 450 到 490 nm、强度 8 到 12 mW/mm² 的蓝光去照。光照开始后,第一个动作电位(也就是放电)的峰平均在 8.0 ± 1.9 ms 时出现,每次试验之间放电时刻只差 0.5 ± 0.3 ms。(± 后面的数是标准差,说的是各个细胞、各次测量围绕平均值散开多少,数越小越整齐。)这是最早用 ChR2 这种单一分子、毫秒级驱动哺乳动物神经元放电的报告之一,同一时期还有别的组做出了相近的结果。2002 年的 ChARGe 已经让神经元对光有了反应,只是要交三个基因,开和关各要好几秒,第 4 章讲过。
培养皿里的细胞全都读了 ChR2,没有选类型这回事。要选类型,研究者把这段基因交给一个运载工具,送进脑里某一类细胞,再配上一段只在这一类细胞里被认得的控制序列,只有这一类细胞会读出它。具体怎么做,第 10 章只讲概念。
基因选类型,光照一大片
只有一类细胞读出 ChR2,光照到的细胞里,只有这一类会放电。
所有细胞都读出 ChR2,靠缩小光斑来选
光斑里的细胞,不管什么类型,全都放电。
差别在:选类型的信息,一个写在细胞的基因里,一个只能靠光落在哪里。
光怎么进脑里?2007 年,Aravanis 等人把激光接到一根直径约 200 µm 的光纤上,波长 473 nm、激光输出 20 mW,光纤出口处的光强约 380 mW/mm²(光强是每平方毫米面积上落多少毫瓦,第 0 章讲过)。他们用一段控制序列把 ChR2 限定在兴奋性神经元里,也就是前面说的催着下一个细胞放电的那一类,在完整动物身上用光控制了运动皮层(脑里管运动的区域),让动物的行为随着光发生了变化。同一年,Adamantidis 等人把 ChR2 限定在下丘脑的分泌素神经元里,光纤伸进自由活动的小鼠的外侧下丘脑,做的就是本章开头的那个实验。
把 2007 年唤醒小鼠的那次实验,写成三个旋钮的设置:目标是什么,节奏大致是什么,效果是开还是关。然后回答两个改动各会怎样:目标换成「外侧下丘脑里所有神经元都带着 ChR2」,结论还能不能归给分泌素神经元?节奏换成 1 Hz,结果会怎样?
变式:效果换成「关」,也就是让分泌素神经元安静下来,三个旋钮里哪一个要换成别的东西?
答辩:如果我是审稿人
诺贝尔奖按规则每项最多三个人,2013 年的 Brain Prize 却给了六个人。你把开关的故事讲成三个人三步,会不会让读者以为只有这三个人做了事?
参考防守(先自己组织语言再看)
会,所以要讲清楚:三步是按奖项的名单挑出来的主线,不是全部的人。2002 年 ChR1 那篇的作者里,班贝格排倒数第二;2003 年 ChR2 那篇,班贝格是末位作者;2005 年那篇的第一作者是博伊登。2013 年的 Brain Prize 就给了黑格曼、纳格尔、班贝格、米森伯克、博伊登、戴塞洛斯六个人。名单的长度受规则限制,贡献的人数不受。这件事第 16 章单独讲。
1.7 同一件事,在四种材料里为什么长得不一样?
拿「博伊登的小组记录到 ChR2 神经元被蓝光驱动放电」这件事来试,你会在四种地方读到它。原始论文给图和数字,比如 2005 年那篇里第一个动作电位出现在光照后 8.0 ± 1.9 ms。当事人的回顾给经过:博伊登 2011 年写道,2004 年 8 月 4 日凌晨约 1 点,他在钱永佑(Richard Tsien)的实验室里,对着扎上记录电极的第一个表达 ChR2 的神经元脉冲蓝光,它就放出了精确的动作电位。新闻只给一句话,同一天各家稿子之间连年龄都有出入。本站计算给你自己拨出来的曲线,公式和参数都摆在页面上。
| 档 | 它给你什么 | 用的时候 |
|---|---|---|
| 原始论文 | 图、数字、实验条件 | 我们核对过原文或摘要,数字以它为准 |
| 当事人回顾 | 经过、动机、时间 | 亲历者的记忆,有立场,细节可能随记忆而偏 |
| 新闻报道 | 一句话的结论 | 同一天的稿子会互相出入,要多家比对 |
| 本站计算 | 你自己拨出来的曲线 | 公式和参数公开,说的是「按这个模型会怎样」,不是实验结果 |
证据四档:原始论文、当事人回顾、新闻报道、本站计算。本站不在每个数字后面挂标签,最需要小心的地方写在章末的折叠小框里。
把下面三句话各归到证据四档的一档,再说哪一句里的细节最可能随回忆者的记忆和立场而偏。甲:Adamantidis 等 2007 年的论文摘要说,5 到 30 Hz 的光脉冲缩短了小鼠从睡眠到觉醒的潜伏期,1 Hz 则没有。乙:博伊登 2011 年的回顾说,2004 年 8 月 4 日凌晨约 1 点,他扎上电极的第一个表达 ChR2 的神经元,在蓝光下放出了精确的动作电位。丙:美联社和路透社都报道,三位获奖者在公布当天的年龄是 54、71、73。
变式:假设本站实验室给出一句「这个模型算出 20 Hz 时只有一半的脉冲能引起放电」,它属于哪一档?要说它符合真实的神经元,还得拿它去对哪一档?
1.8 这一站的章节之间,谁要先于谁?
全站从第 0 章到第 17 章共 18 章,后面的章要用前面章的东西。两条虚线跳过了中间几章:第 0 章的光子和光强,到第 6 章才用上;第 3 章讲的放电,到第 9 章才被装上开关。
第 9 章要把光开关装进一个神经元。照图,它至少要先用到哪两章的知识?
变式:第 12 章讲怎么让神经元闭嘴,它在图里的哪一块?沿着实线,紧挨在它前面的是哪一章,紧挨在它后面的又是哪一章?
零基础先走的核心线是:第 0 章速览,第 1 章,第 2 章,第 3 章,第 5 章,第 6 章,第 8 章,第 9 章,第 10 章,第 14 章。其余的章读完核心线再挑着看。
给虚拟实验台装第一块:一份设置,三个旋钮
为什么现在装它:这是第一级,台上还什么都没有。可后面每一章造出的零件,神经元、光开关、光、挑细胞的办法,都要接在某个旋钮上,所以先把「想做什么」写成一份能被读取的设置,零件才有地方接。
难点:从「10 Hz、2 s、10 ms」到起止时间表看着只有一步,错误却藏在两处。其一,起点要用 k 乘周期,不能一次次累加周期:3 Hz 的周期是 333.333…毫秒,每加一次都带一点点误差,累加到第 6 次得到的是 1999.9999999999998,比 2000 小,程序以为 2 秒还没到头,就会多放出第 7 个脉冲,而 2 秒里本该只有 6 个。其二,脉冲数用频率乘时长再向下取整,而计算机存小数用的是浮点数,只能存近似值,乘出来会差一点点,例如 100 Hz 乘 0.29 s 在机器里得到 28.999999999999996,直接取整成 28,少了一个,所以取整前先加一个极小的量。还要挡住一种非法输入:脉宽比周期还长,相邻脉冲会叠在一起,分不清是一个长脉冲还是两个。
自己验:输入 10 Hz、2 s、10 ms,应该得到 20 个脉冲,第一个是 0 到 10 ms,最后一个是 1900 到 1910 ms。输入 3 Hz、2 s、10 ms,应该得到 6 个脉冲,最后一个从约 1666.7 ms 开始,用累加的写法会多出第 7 个。输入 10 Hz、脉宽 150 ms,应该报错「脉冲比周期还长」。三个都对上,这一级就成了。
对你而言未知光遗传学到现在,已经在哪些物种里用过?
答案存在,只是不在这一章里。本章出现过的有:大鼠的培养神经元(2005)、自由活动的小鼠(2007);本站后面会提到的有一位视网膜色素变性的失明患者(2021)。别的已知起点有 2005 年的秀丽隐杆线虫和鸡胚的脊髓,以及 2006 年光感受器退化的小鼠视网膜。这张清单还很不完整,每一个物种用的光开关、照的细胞也不一样。
先做这一步:打开 Europe PMC(europepmc.org),搜索 optogenetics 加一种动物的英文名(比如 zebrafish、macaque),按年份从早到晚排,读最早的两三篇摘要,记下它们各用了哪一种光开关、让哪一类细胞响应。
读的时候要小心:同一天的新闻,数字会不一样
年龄、原话、折合的外币金额,同一天各家的稿子并不一致。比如获奖者的年龄,不同媒体有差一岁的写法,按出生日期推算,本站采用美联社和路透社的 54、71、73。斯文宁松的话,各家英文写法有出入,本站只写大意,不加引号当原话。本站的做法是以通讯社稿为主,再多家交叉核对,第 16 章专门讲这件事怎么核。
留给你的问题
2007 年那次实验,光纤送出的光照亮的是整片外侧下丘脑,里面什么细胞都有,为什么结论仍然能归给分泌素神经元?如果当时改用电极通电,同样的结论会差在哪里?
不看材料,写下这一章的三堵墙
第一堵:电极又快又能停,可一块组织里各种细胞和纤维混在一起,电流分不出类型。第二堵:药物能按受体选类型,可起要等药扩散过去,落要等药被清除,都跟不上毫秒级的放电。第三堵:光又快又能关,可脑里的细胞本来对光没有反应,光自己选不了类型;要有一个能感光、吸光后孔直接打开的蛋白质,由基因交给指定的那一类细胞,选谁由基因管,不由光管。
第2章 神经元为什么带电
浓度差大了十倍,电压只多挪一份
开篇故事第 2 集 · 两杯盐水里的电压不肯归零一束蓝光的十八天
电生理室里的电压表停在 −89.1 mV,数字一动不动,而许一舟写在预测单上的读数是 0。
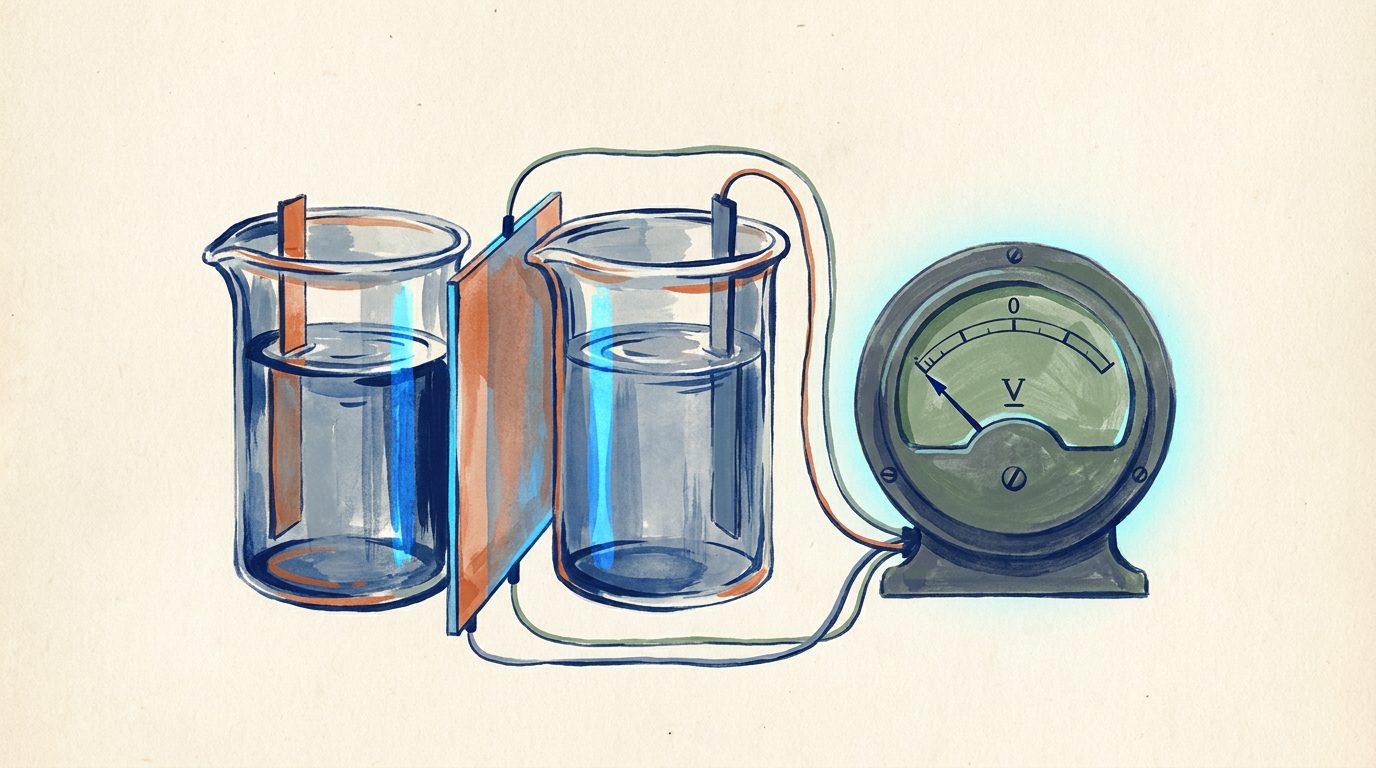
系统提示光台里的两只杯子,左杯是 140 mM 的氯化钾溶液,右杯是 5 mM,中间的膜只放钾离子过,体温 37 °C,稳定之后电压表的读数是 −89.1 mV,左杯比右杯低。
系统提示许一舟预测的读数是 0 mV,判定为错误,按赌约扣除他半天机时。
一个小时之前,岑老师把全营带进电生理室,金属屏蔽罩把外面的声音挡得干干净净,只剩电压表每隔一秒滴一声,光台上浮着两只全息的杯子,指尖碰到杯壁,有一层微微发麻的凉意。许一舟已经算好了,钾离子在左杯浓、在右杯稀,乱撞的结果是净往右走,一直走到两杯一样浓才会停,把 140 和 5 加起来除以二,两杯各是 72.5 mM,到那时没有浓度差,电压表该归零。蓝光过敏在旁边笑出了声:“你说过算得出来的才算数,那就拿半天机时来算。”许一舟这回没有躲,接下了赌约,在预测单上把算式一行一行写了出来。
现在电压表的数字还在原地不动,许一舟盯着它,嘴里念叨着钾离子明明还在往右走,怎么就不肯归零。
岑老师说:“钾离子带正电。每跑过去一个,右杯就多一个正电荷,左杯留下一个走不了的氯离子,电压就出现了,它会把后面的钾离子往回拉。”
许一舟抬起头:“那要跑过去多少个,才拉得住?”岑老师说,光台里这张膜每平方厘米的电容取 1 µF,你自己算。他用 89 mV 乘上这个电容,再除以一个钾离子带的电荷,算出摊到每平方微米的膜上只跑过去约 5600 个钾离子,而膜下面一个一微米见方的小立方体里,钾离子有 8400 万个。他把两个数并排写在预测单上,沉默了很久,才开口:“跑过去的只占约一万五千分之一,浓度几乎没有变,我那个 72.5 根本没有机会出现。”
蓝光过敏把预测单抽过去,在角落里写下半天机时四个字,还特意签了名。
当晚的营地论坛上,关于这两只杯子的回复一直刷到了熄灯之后。
电压表为什么不肯归零,钾离子到底跑过去了多少
1L电极老炮对照组呢?把膜换成只放氯离子过的那一张,电压表的读数和方向会变成什么样,我想看光台怎么判。
2L蓝光过敏我还是觉得钾离子多跑一会儿总会跑平,电压表不肯归零,多半是光台的膜出了毛病,我赢得有点心虚。
3L衣藻本藻楼上不对,每跑过去一个钾离子,电压就把后面的往回拉一点,两股劲拉平的时候两杯的浓度几乎没变。1L 的问题我查了,换成只放氯离子的膜,左杯会带正电,方向和钾正好相反。
4L许一舟我把预测单重新算了一遍,错在只看了浓度这一股劲,半天机时我认罚,每平方微米跑过去的数目整理成表,发在这条回复的后面了。
5L岑(带教认证)4L 的表发得对。整杯盐水仍然是中性的,多出来的电荷只贴在膜两面薄薄一层,半天机时照扣。
熄灯之前,光台推送了一条没有人点开的通知,明天光台里会出现第一个神经元,它静息在 −65 mV,会不会放电,要看有人往里注多大的电流。
系统结算 · 本章考点
- 一张只放 K⁺ 过的膜隔开两杯盐水,K⁺ 只跑过去极少的一点就停了,一侧带正电、一侧带负电,留下一个稳定的电压
- 每跑过去一个 K⁺,往回拉的劲就涨一点,两股劲拉平时净流动停下,K⁺ 不会一直跑到两杯都是 72.5 mM
- 按本站模型算,每平方微米的膜只跑过去约 5600 个 K⁺,膜下面 1 微米见方的小立方体里约有 8400 万个,约占一万五千分之一
- 胞外 5 mM、胞内 140 mM 的 K⁺,按能斯特方程在 37 °C 下算,平衡电位约 −89.1 mV
- 落单的电荷只贴在膜两面薄薄一层,整杯盐水仍然是中性的
- 换成只放 Cl⁻ 的膜,电压方向正好相反,挑哪一种离子,就决定电压朝哪边
把手指伸进一杯盐水,什么也感觉不到,水里的正电荷和负电荷一样多,整杯是中性的。神经元里外也都是这样的盐水,细胞里一杯,细胞外一杯,各自正负配平。可要是把一根极细的电极插进神经元,另一根放在外面,电压表会稳稳停在负六十毫伏上下。两杯中性的盐水,中间只隔着一层膜,这几十毫伏是从哪里来的?
学完这一章你应该能做到
- 说清一张只放 K+ 过的膜,为什么能在两杯中性盐水之间造出电压,跑过去的 K+ 又为什么少得改不动浓度
- 从「浓度推出去的劲 = 电压拉回来的劲」写出能斯特方程,算出 K+、Na+、Cl− 的平衡电位
- 不背公式里的符号,先判断一种离子的平衡电位是正是负
- 解释静息电位为什么落在几种平衡电位之间,用按通透性加权的方程算出约 −65 mV
- 说清为什么「什么离子都放过」反而让电压塌向 0,并说出反转电位是什么
这一章给实验台装上第二块:一张会带电的膜。第 1 级只有三个空旋钮,台上还没有任何能算出电压的东西;这一级写两个函数,一个算某一种离子的平衡电位,一个把几种离子按通透性加权,算出膜电位。第 3 章的神经元就在这张膜上放电。
2.1 两杯中性的盐水,隔一层只放钾过的膜,电压从哪来?
做一个最简单的模型。左杯是 140 mM 的氯化钾溶液,像细胞里;右杯是 5 mM 的氯化钾溶液,像细胞外。两杯中间隔一张膜,膜上的孔只放 K+ 过,Cl− 一个也过不去。一开始两杯都是中性的。过一会儿,你觉得会怎样?
答完再看
第三个对。K+ 带正电,每跑过去一个,右杯就多一个没人配对的正电荷,左杯就剩下一个走不了的 Cl−。两边一有多余的电荷,电压就出现了,它把后面的 K+ 往左拉。第一个错在以为 K+ 会带着它的伴儿一起走,可膜不放 Cl−。第二个错在只看了浓度这一股劲,没看见每走一个 K+,往回拉的那股劲就涨一点,远没跑到一半就拉平了。
先把第二个选项认真走一遍,它是最顺手的想法。K+ 在左杯浓、右杯稀,乱撞的结果是往右走的多,这是第 0 章说的扩散。那就让它一直走,走到两杯都是 72.5 mM,浓度不就平了吗?麻烦在于 K+ 带电。左杯里 K+ 和 Cl− 本来一对一对配好,走掉一个 K+,留下的 Cl− 就落了单,左杯多出一个负电荷;右杯多来一个 K+,多出一个正电荷。下一个想往右走的 K+,被左边的负电荷往回吸,被右边的正电荷往外推,得顶着这股电的劲走。
走过去的越多,落单的电荷越多,往回拉的劲越大;浓度往右推的劲却几乎不变,因为走掉的那点 K+ 改不动浓度。很快两股劲一样大,往右走的 K+ 和被拉回左边的一样多,净流动停了。这时左杯比右杯低几十毫伏,只要膜还只放 K+ 过,这个电压就一直留在那里。
膜电位(membrane potential):细胞里相对细胞外的电压。里面比外面低,膜电位就是负的。
膜只放 K+ 过
K+ 走过去一点,留下落单的 Cl−,电压很快拦住它。最后浓度几乎没变,电压留在那里。
膜让 K+ 和 Cl− 都过
K+ 和 Cl− 成对地一起走,谁也不落单,没有电压拦着,一直走到两杯浓度一样。最后既没有电压,也没有浓度差。
差别在:膜挑不挑离子。挑,才有落单的电荷,才有电压。
到底走过去多少?膜两面是导电的盐水,中间夹着一层很薄的油(第 0 章 0.3),这样的结构能把正负电荷分别存在两面,存电的本事叫电容。先算一笔账,看看要拦住 K+,得有多少个 K+ 跑过去。
自己推一遍:为拦住 K+,要有多少个 K+ 跑过去
第 3 章的神经元模型取每平方厘米膜的电容为 1 µF。要在膜两面造出 89 mV(下一节会算出这个数),每平方厘米要存多少电荷?
想好了再看
电容的意思是「存的电荷 = 电容 × 电压」。电荷的单位是库仑(C),电容的单位是法拉(F),µF 是百万分之一法拉。1 µF/cm² 就是两面差 1 V 时,每平方厘米每一面存 1 µC,也就是百万分之一库仑。89 mV 是 0.089 V,所以每平方厘米要存 0.089 × 10⁻⁶ C = 8.9×10⁻⁸ C。
这些电荷是多少个 K+ 带的?摊到每平方微米的膜上,又是多少个?
想好了再看
一个 K+ 带 1.6×10⁻¹⁹ C,所以 8.9×10⁻⁸ ÷ 1.6×10⁻¹⁹ ≈ 5.6×10¹¹ 个。1 厘米等于 1 万微米,1 平方厘米就是 108 平方微米,摊下去每平方微米约 5.6×10¹¹ ÷ 108 ≈ 5600 个。
拿这个数和膜下面细胞液里的 K+ 比一比,跑过去的占多大一份?
想好了再看
取膜下面一个 1 微米见方的小立方体,体积 1 立方微米,也就是 10−15 升。140 mM 就是每升 0.14 摩尔,一摩尔约含 6×10²³ 个粒子,所以这个小立方体里有 0.14 × 10−15 × 6×1023 ≈ 8400 万个 K+。跑过去的 5600 个,只占约一万五千分之一,浓度几乎没变。
还是那两杯氯化钾溶液,左杯 140 mM、右杯 5 mM,这次换一张只放 Cl− 过、不放 K+ 的膜。哪一杯会带正电?用一句话说理由。
变式:两杯的浓度左右对调,膜仍然只放 Cl− 过,哪一杯带正电?
所以落单的电荷只贴在膜两面薄薄一层里,离膜稍远,细胞液里的正负照样配平。「里外都是中性的盐水」和「膜两侧有电压」两句话都对,前一句说的是整杯水,后一句说的是贴着膜的那一层。
打个比方
一间挤满人的屋子开了一道门,门外是空场,人会往外挤。这道门很怪,每出去一个人,门口的地面就被垫高一点,后面的人得往坡上爬。出去的人越多坡越陡,很快就没人爬得上去了。屋里的人几乎没少,门口却多了一道坡。
类比失效处:人往外走是想走,离子没有想法,它们只是在乱撞,往外撞的比往里撞的多一点,净效果才像在「挤」。坡也不是另外修的,它就是跑出去的那些离子自己的电荷堆出来的,所以带正电和带负电的离子,看到的坡方向相反。
答辩:如果我是审稿人
你的结论靠的是「膜一个 Cl− 也不放」。真实的膜哪有这么绝对?只要 Cl− 也能慢慢过,这个电压还站得住吗?
参考防守(先自己组织语言再看)
站得住一阵子,站不住一辈子。Cl− 也能慢慢过的话,K+ 和 Cl− 会成对地一点点漏过去,两杯浓度慢慢拉平,电压也跟着慢慢消失。电压能一直留着,要两个条件同时成立:膜强烈偏袒某一种离子,以及浓度差被一直维持住。前一个条件这一节讲了,后一个条件在 2.4 节,细胞靠膜上的泵花能量把浓度差补回来。
2.2 钾跑出去一点就停,停在多少毫伏?
先告诉你一个结论:在体温下,一张只放 K+ 的膜,两边浓度差 10 倍时,两股劲在约 61.5 mV 处拉平。如果浓度差变成 100 倍,拉平时的电压大约是多少?
答完再看
第二个对。浓度推出去的劲跟着浓度比的对数走:从 1 倍到 10 倍、从 10 倍到 100 倍,各加一份同样大的劲,所以 100 倍对应两份,约 123 mV。第一个错在把劲当成和浓度比成正比。第三个错在忽略了差得越多推得越猛。
要算出停在多少毫伏,就得把两股劲各写成一个式子,让它们相等。电压往回拉的那股好写:电压越大拉得越狠,离子带的电荷越多被拉得越狠。一个 Ca2+ 带两份电荷,同样的电压拉它的劲是 K+ 的两倍。所以这股劲跟「电荷数 × 电压」成正比。
浓度往外推的那股不跟浓度比成正比。浓度比从 1 倍变成 10 倍,推的劲多一份;从 10 倍变成 100 倍,再多一份同样大的。所以它跟浓度比的对数成正比。温度越高,离子乱撞得越凶,这股劲也越大,它还跟绝对温度成正比。为什么偏偏是对数,下面这个比方给一个能踩着走的图像。
按对数走(真实的样子)
10 倍对应约 61.5 mV,100 倍约 123 mV,1000 倍约 185 mV。浓度比每乘一个 10,电压加一份。
按比例走(差一点就信了的样子)
10 倍对应约 61.5 mV,100 倍就该是 615 mV,1000 倍 6150 mV。浓度比每乘一个 10,电压也乘 10。
差别在:浓度比每乘一个 10,电压是加一份还是乘 10。
打个比方
高山上越往高处空气越稀,而且每往上爬同样一段高度,空气就按同样的比例稀一次,并不是每爬一段少掉同样多。爬一段高度要花一份能量,对应空气稀一个固定的倍数;反过来,浓度差一个固定的倍数,就对应一份固定的能量差。膜两侧的电压就是那段「高度」,浓度比就是空气稀了多少倍,于是电压跟着浓度比的对数走。
类比失效处:大气里拉住空气的是重力,对每个分子都一样,方向永远朝下。膜上的「高度差」是离子自己的电荷堆出来的,只对带电的离子起作用,正离子和负离子看到的高低正好相反。大气是一点点变稀的,膜两侧的电压却几乎全落在那层很薄的膜上。
自己推一遍:从两股劲到能斯特方程
两股劲一个是电的,一个是浓度的,单位都不一样,怎么比?
想好了再看
都换成「搬一摩尔离子过膜,要花或能放出多少能量」。这样想是因为能量是两边都说得清的东西:电的那边,能量 = 电荷 × 电压;浓度那边,从浓处走到稀处本来就会放出能量,那正是推着离子走的劲。两边换成同一种量,才能写等号。
一摩尔、每个带 z 份电荷的离子,跨过电压 E,电的那边是多少能量?
想好了再看
一摩尔一价离子带的电荷是一个固定的数,叫法拉第常数 F,约 96485 C。带 z 份电荷,就是 zF 库仑,乘上电压 E,能量是 zFE。
浓度那边,一摩尔离子从浓的一侧走到稀的一侧,能放出多少能量?
想好了再看
按上面的直觉,浓度比每乘一个固定的倍数,能量就多固定的一份,所以它跟浓度比的对数成正比;温度越高乱撞越凶,它又跟绝对温度 T 成正比。把两样乘起来,要凑出「每摩尔多少焦耳」的单位,比例常数就是气体常数 R,约 8.314 J/(mol·K),R 乘 T 正好是每摩尔的热运动能量。写成 RT·ln(c外/c内),ln 是自然对数,选它而不选以 10 为底的对数,是为了让比例常数正好就是 R,不用再多带一个 2.303。
两股劲相等,E 等于多少?符号对不对?
想好了再看
zFE = RT·ln(c外/c内),所以 E = (RT/zF)·ln(c外/c内)。拿 K+ 检查:胞外 5、胞内 140,比值小于 1,对数是负的,E 是负的,说明里面比外面低。这和 2.1 节「K+ 跑出去,里面留下负电荷」对得上。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| E | 这种离子的平衡电位,胞内减胞外,单位 V | 能拦住它的那个电压 |
| R | 气体常数,8.314 J/(mol·K) | 把温度换成能量 |
| T | 绝对温度,K = °C + 273.15 | 越热,浓度推得越猛 |
| z | 离子带几份电荷,带符号:K+ 为 +1,Cl− 为 −1 | 电荷越多,越少的电压就拉得住 |
| F | 法拉第常数,96485 C/mol | 一摩尔一价离子的电荷 |
| c外、c内 | 胞外、胞内的浓度,单位相同即可 | 只有比值进式子 |
| ln | 自然对数,计算器上的 ln 键;ln 10 ≈ 2.303 | 把「乘一个倍数」变成「加一份」 |
平衡电位(equilibrium potential):对某一种离子,浓度推出去的劲和电压拉回来的劲正好相等时的膜电位,这时这种离子的净流动为零。记作 EK、ENa、ECl。
能斯特方程(Nernst equation):式 2-1,从浓度比算平衡电位。
体温 37 °C 也就是 310.15 K,这时 RT/F 约 26.7 mV。浓度比 10 倍时 ln 10 ≈ 2.303,26.7 × 2.303 ≈ 61.5 mV,「浓度差 10 倍大约对应 61 mV」就是这么来的。代入 K+,z = +1,胞外 5 mM、胞内 140 mM,ln(5/140) ≈ −3.33,EK ≈ 26.7 × (−3.33) ≈ −89 mV。这里的 26.7 和 3.33 都是舍入过的,把没舍入的数代进去是 −89.1 mV,后面都用 −89.1。你用计算器按舍入后的数算,会差 0.1 到 0.2 mV,是舍入造成的。
在上面的实验室里先只动 K+。把胞外 K+ 从 5 mM 拨到 14 mM,浓度比正好变成 10 倍,EK 应该落在约 −61.5 mV;再拨到 50 mM,先用式 2-1 算一个数,再看实验室给的对不对得上。拨一拨温度,看「10 倍对应多少毫伏」怎么跟着变。「让钠也自由通过」那个开关先别碰,2.5 节回来拨。
37 °C,胞内 K+ 140 mM 不变,胞外 K+ 从 5 mM 升到 10 mM。EK 变成多少?比原来更正还是更负?
变式:把胞外 K+ 升到和胞内一样的 140 mM,EK 是多少?为什么?
Ca2+ 带两份正电荷。假设它的胞外浓度是胞内的 10 倍,37 °C 时它的平衡电位约多少?是一价离子在同样浓度比下的几倍?
变式:浓度比改成 1000 倍,Ca2+ 的平衡电位约多少?
答辩:如果我是审稿人
推导里把浓度那股劲当成跟浓度比的对数成正比,这是为了凑出公式的假设吧?能不能检验?
参考防守(先自己组织语言再看)
能检验,而且式子给出的预言很具体。准备一张只放 K+ 的膜,把外面的 K+ 浓度一次改 10 倍,在 37 °C 下每次电压都该挪约 61.5 mV,不管从哪个浓度开始改;温度降下来,每次挪的量按绝对温度的比例变小。只要哪一次挪的量随起点变了,或者跟温度对不上,对数这一步就有问题。拿真神经元去做,挪的量会偏小,因为它的膜不只放 K+,那是 2.4 节的事,和对数无关,用 2.4 节的加权方程能算出偏小多少。
2.3 钠和氯的平衡电位,正负号怎么定才不出错?
算 K+ 的时候符号自己就对了,换成 Cl−,很多人头一回算出来是正 85 mV,比钠还像钠。式 2-1 只有一步,错几乎都出在正负号上,所以规矩是先不碰公式,用 2.1 节的图像把符号定下来。
问三句话。这种离子顺着浓度差想往哪边走?它带正电还是负电?它走过去,会让细胞里变正还是变负?平衡电位就是能拦住它的那个电压,符号和「它走过去会造成的电压」相同。符号定了,再用式 2-1 或者「10 倍对应 61.5 mV」算大小,最后拿算出的符号和刚才判断的对一遍。
Na+:胞外 145 mM,胞内 10 mM
我先看到 Na+ 外多内少,它想往里走;它带正电,走进来会让里面变正,所以 ENa 是正的,负号排除。再算大小,浓度比 14.5 倍,ln 14.5 ≈ 2.67,26.7 × 2.67 ≈ +71.5 mV。我最怕 c外、c内 代反,检查一下,算出的正号和判断一致。
Cl−:胞外 120 mM,胞内 5 mM
Cl− 也外多内少,也想往里走;可它带负电,走进来让里面变负,所以 ECl 是负的。这一步最怕照抄钠的思路写成正号。算大小,浓度比 24 倍,ln 24 ≈ 3.18,26.7 × 3.18 ≈ 84.9,再除以 z = −1,得 −84.9 mV,和判断一致。
差别在:两种离子都想往里走,带的电相反,平衡电位的符号就相反。
| 离子 | 胞外 | 胞内 | 平衡电位 |
|---|---|---|---|
| K+ | 5 | 140 | −89.1 mV |
| Na+ | 145 | 10 | +71.5 mV |
| Cl−(成熟神经元) | 120 | 5 | −84.9 mV |
| Cl−(胞内偏高时) | 120 | 15 | −55.6 mV |
成熟神经元里胞内 Cl− 可以在 5 到 15 mM 之间变化。胞内是 15 mM、胞外 120 mM 时,ECl 是多少?比胞内 5 mM 时更正还是更负?
变式:胞内 Cl− 涨到和胞外一样的 120 mM,ECl 是多少?
一种假想的离子 X2− 带两份负电荷,胞外 10 mM、胞内 1 mM。先不用公式判断 EX 的正负,再算它约多少。
变式:把 X 换成带两份正电荷的 X2+,浓度不变,答案的哪一部分变了?
2.4 膜主要放钾过,静息电位就等于钾的平衡电位吗?
神经元的膜在静息时主要放 K+ 过,也漏一点 Na+。假设 Na+ 的通透性只有 K+ 的二十分之一,Cl− 先不管。EK 是 −89.1 mV,ENa 是 +71.5 mV。你觉得膜电位会停在哪?
答完再看
第三个对,算出来约 −65.2 mV。Na+ 虽然通透性小,可胞外的 Na+ 多得很,漏进来的每一个又被电压和浓度一起往里推,能把膜电位从 −89.1 mV 往上拽二十几毫伏。第一个错在把「漏得少」当成「没影响」。第二个错在给了两种离子一样的分量。第四个错在只看推得多猛,没看能过去多少。
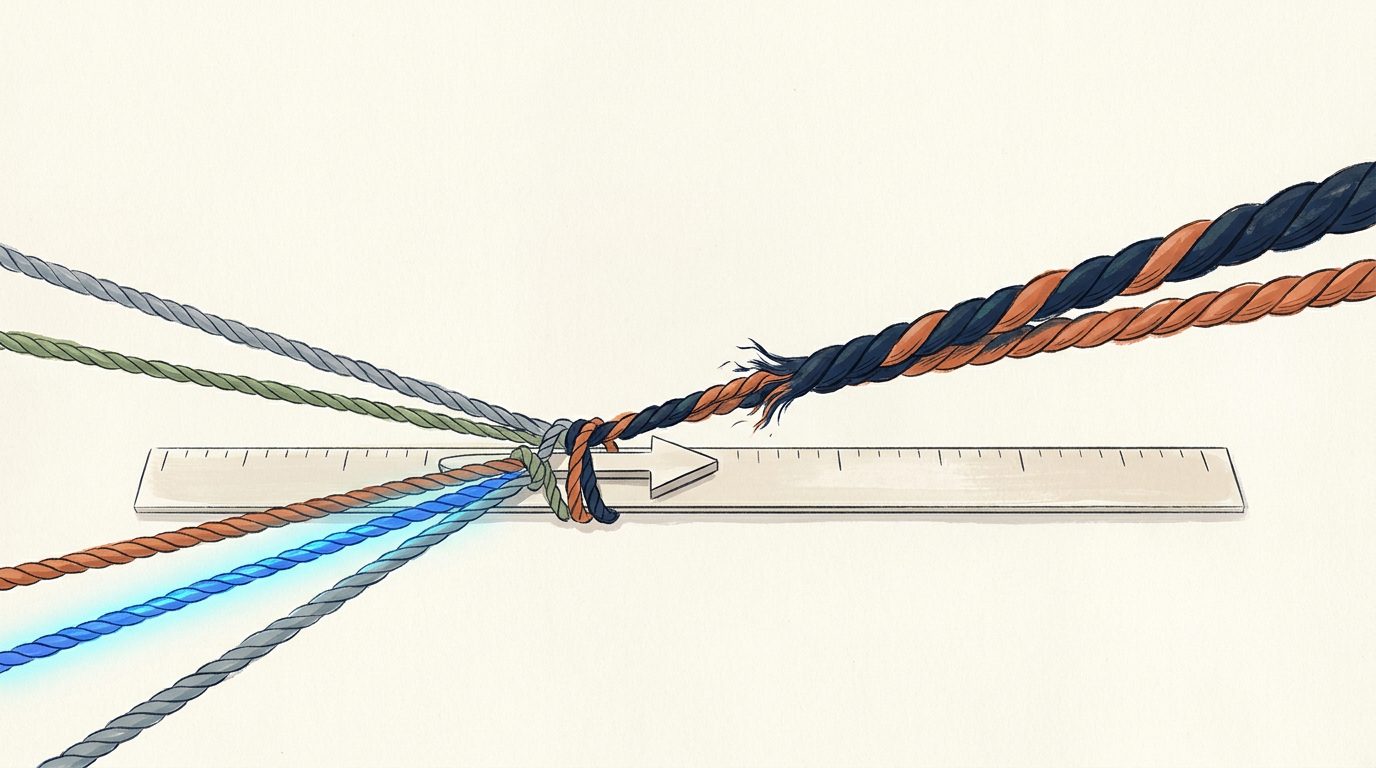
把 2.1 节那张只放 K+ 的膜换成稍微漏一点 Na+ 的膜,事情就成了拔河。K+ 想把膜电位拉到 −89.1 mV,Na+ 想拉到 +71.5 mV。停在哪,看哪一边更容易过膜:K+ 的孔多,拉得狠;Na+ 的孔少,拉得弱。最后停在两者之间、靠 K+ 那一头的地方。
停住的那一刻,两种离子都没有平衡。膜电位在 EK 上方,K+ 还在一点点往外漏;它在 ENa 下方很远,Na+ 还在一点点往里漏。停住的条件是往外走的正电荷和往里走的正电荷一样多,净电流为零,电压就不再变。
静息的神经元膜电位是 −65 mV。这时打开一个只放 Cl− 的孔,ECl 是 −84.9 mV。Cl− 净往细胞里走还是往外走?这股电流算内向还是外向?膜电位会往哪边挪?
变式:如果胞内 Cl− 是 15 mM,ECl 是 −55.6 mV,同样在 −65 mV 打开这个孔,Cl− 往哪走,电流是内向还是外向,膜电位往哪挪?
漏了这么久,浓度差不会漏光吗?会慢慢漏,可膜上还有泵(第 0 章 0.3),花能量把漏进来的 Na+ 搬出去、把漏出去的 K+ 搬回来,静息电位是靠泵撑着的稳态。把拔河写成式子,是能斯特方程的推广。推导较长,本站不推,只拿两个检查把它钉住:只有一种离子能过时,它得退回这种离子的能斯特方程;某种离子过不去时,它的项得消失。式 2-2 过得了这两关:几种离子按通透性加权,一起放进对数里。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| V静息 | 净电流为零时的膜电位 | 拔河停下的位置 |
| PK、PNa、PCl | 各离子过膜的容易程度(通透性),只看相对大小,常取 PK = 1 | 每一队拔河的人数 |
| [K]外、[K]内 等 | 胞外、胞内浓度,mM | 同式 2-1 |
| Cl 的内外对调 | Cl− 带负电,往里走的效果和正离子往外走一样 | 式 2-1 里 z = −1 的那个负号,换了个地方 |
只放 K+(PNa = 0)
式 2-2 算出 −89.1 mV,正好是 EK。
K+ 加上二十分之一的 Na+
式 2-2 算出 −65.2 mV,被 Na+ 往上拽了约 24 mV。
差别在:多了一股很弱、却离自己的平衡电位很远的拉力。
只留 K+ 一项,式 2-2 就退回 K+ 的能斯特方程。取 PNa 是 PK 的二十分之一、不管 Cl−,分子是 5 + 0.05 × 145 = 12.25,分母是 140 + 0.05 × 10 = 140.5,26.7 mV × ln(12.25 ÷ 140.5) ≈ −65.2 mV,就是预测门里那个答案。本站后面的神经元模型统一把静息电位定在 −65 mV。真神经元也在这一带,2005 年那篇论文里,表达了 ChR2 的培养大鼠海马神经元,静息电位测出来是 −60.6 ± 9.0 mV(± 后面是标准差,说的是各个细胞围绕平均值散开多少,−65 mV 在这个范围里)。
静息电位(resting potential):神经元不放电时的膜电位,是几种离子按通透性拔河拔出来的稳态。
GHK 方程(Goldman–Hodgkin–Katz equation,戈德曼–霍奇金–卡茨方程):式 2-2,按通透性给几种离子加权,算出净电流为零时的膜电位。
如果 Na+ 的通透性从 K+ 的二十分之一升到十分之一,Cl− 仍不计,膜电位约多少?往哪个方向挪?
变式:反过来把 PNa 降到 PK 的百分之一,膜电位约多少?离 EK 还差几毫伏?
答辩:如果我是审稿人
你说静息电位靠近通透性最大的那种离子。可 Na+ 的通透性只有二十分之一,却把电压拽动了 24 mV,「靠近」这个说法是不是太轻描淡写了?
参考防守(先自己组织语言再看)
加权的不只是通透性,还要乘上浓度。看式 2-2 的分子:K+ 那一项是 PK × 5 = 5,Na+ 那一项是 0.05 PK × 145 = 7.25,Na+ 的通透性只有二十分之一,它在分子里的分量却比 K+ 还大,因为胞外的 Na+ 浓度是 K+ 的 29 倍。分母里正好反过来,K+ 是 140,Na+ 只有 0.05 × 10 = 0.5,K+ 占了几乎全部。分子从 5 涨到 12.25,比值抬高到原来的 2.45 倍,26.7 mV × ln 2.45 ≈ 24 mV,这就是把电压从 −89.1 拽到 −65.2 的那一截。所以准确的说法是:电压停在净电流为零的地方,哪种离子的「通透性 × 浓度」在式子里分量大,就更靠近它的平衡电位,单看通透性会低估 Na+。
2.5 让什么离子都能自由通过,细胞不就更带电了?
按上一节的拔河,有人想:Na+ 往里冲的劲那么大,干脆让 Na+ 和 K+ 一样自由地过,两股大劲都放开,膜两侧的电压该更大了吧?浓度不变,把 PNa 调到和 PK 一样大,你觉得膜电位会怎样?
答完再看
第三个对,而且这组浓度下正好是 0 mV:分子 5 + 145 = 150,分母 140 + 10 = 150,ln 1 = 0。第一个错在以为劲越多电压越大,可两股劲方向相反,放得越开越互相抵消。第二个错在给了 Na+ 更大的分量,这里两者一样大。第四个错在以为电压只由浓度决定,2.4 节刚算过,「哪种离子更容易过」一样决定电压。
电压从哪来,现在可以说得更准了。2.1 节里,膜只放 K+,K+ 跑出去留下落单的负电荷,才有电压;两杯盐水本身并不带电。所以电压的来源是膜的挑剔,它让某一种离子比别的离子容易过得多。把挑剔拿掉,让 Na+ 和 K+ 一样容易过,K+ 往外带走正电荷,Na+ 往里带进正电荷,两笔账互相抵掉,膜电位就塌到 0 附近。三种离子一样自由,算出来约 −14.8 mV,也离 −65 mV 很远;而且没有泵的话,这样敞开着漏下去,连浓度差也会慢慢被抹平。
回到 2.2 节的实验室,打开「让钠也自由通过」那个开关,看膜电位跳到哪;再把 Cl− 的通透性也往上调,看它又挪多少。
挑剔的膜
PK : PNa = 1 : 0.05,膜电位 −65.2 mV。
不挑的膜
PK : PNa = 1 : 1,膜电位 0.0 mV。
差别在:膜偏袒哪一种离子。偏得越狠,电压越接近那种离子的平衡电位;不偏,电压塌向 0 附近。
这一点马上就会派上用场。一个通道如果同时放好几种离子过,单看这个通道,它的电流也会在某一个电压下正好为零。比这个电压低,净电流往一个方向;比它高,净电流就反过来。
反转电位(reversal potential):一个通道放好几种离子过时,它的净电流正好为零的那个膜电位。电流在这里改变方向,所以叫反转。只放一种离子的通道,反转电位就是那种离子的平衡电位。
一个对 Na+ 和 K+ 一视同仁的通道,用本章的浓度算,反转电位就在 0 mV。第 1 章的光开关 ChR2 正是一个放好几种阳离子过的通道,它的反转电位约 0 mV。静息的神经元在 −65 mV,比 0 mV 低得多,ChR2 一打开,净电流就把膜电位往 0 的方向拉。第 3 章会看到这一拉意味着什么,第 6 章会算这一拉要多少光。
有人总结:「膜的通透性越大,膜电位离 0 越远。」请构造一个具体情形,说明这句话不对。
变式:只把 K+ 的通透性加倍、Na+ 不变,膜电位往哪边移?会不会越过 −89.1 mV?
静息的神经元在 −65 mV,膜上装了一些 ChR2,它放好几种阳离子过,反转电位约 0 mV。光一照,打开了其中一小部分。(1) 膜电位往哪边移?(2) 会不会一路移到 0 mV?(3) 打开的 ChR2 越来越多,膜电位最终会靠近哪个值?
变式:换一个反转电位约 −85 mV 的光控通道,同样照光,膜电位往哪边移?
答辩:如果我是审稿人
既然挑剔才是电压的来源,神经元为什么还要在膜上装能放 Na+ 大量进来的通道?这不是在拆自己的台吗?
参考防守(先自己组织语言再看)
因为能改的权重才有用。膜电位按通透性加权,谁的权重大,电压就靠近谁的平衡电位。平时 K+ 的权重大,电压停在 −65 mV;只要在一瞬间把 Na+ 的权重调得比 K+ 大,电压就会冲向 ENa 那一头。浓度差是泵早就存好的本钱,通道的开关决定这一刻听谁的。第 3 章的放电就是这样一次换班,而且换过去以后还会自己换回来。
给实验台装上会带电的膜:两个函数
为什么现在才加:第 1 级只有三个空旋钮,台上还没有任何能算出电压的东西。神经元要放电,先得有一张静息时就带着 −65 mV 的膜,后面每一股电流都在这张膜上推来推去。
难点:容易错的有三处。温度要换成开尔文,37 °C 是 310.15 K,直接代 37 进去,「10 倍对应 61.5 mV」会变成 7 mV 出头。ln 是自然对数,换成以 10 为底的 log,所有电位只剩原来的 0.43 倍。最隐蔽的是加权函数里的 Cl−:它带负电,往里走的效果和正离子往外走一样,所以分子里放胞内浓度、分母里放胞外浓度,整个式子也不再除以 z。照着 K+、Na+ 的样子顺手写下去,Cl− 的作用就算反了,而且只在 PCl 不为零时才露馅。
自己验:nernst(+1, 5, 140, 37) 应该得到约 −89.1 mV;把胞外改成 50 mM,应该得到约 −27.5 mV;nernst(−1, 120, 5, 37) 应该得到约 −84.9 mV。vm 取 PK : PNa : PCl = 1 : 0.05 : 0,应该得到约 −65.2 mV;改成 1 : 1 : 0,应该得到 0.0 mV;改成 1 : 1 : 1,应该得到约 −14.8 mV。六个都对上,这一级就成了,还能拿 2.2 节的实验室再对一遍。
对你而言未知真实神经元静息时,Na+、Cl− 和 K+ 的通透性之比是多少?
本章为了算账,设了 Na+ 是 K+ 的二十分之一、不计 Cl−,刚好得到 −65.2 mV。真实的比例因神经元的种类、发育阶段、所在部位而不同,胞内氯也会变(表 2-1 里的 5 到 15 mM)。答案在电生理的教科书和原始文献里,只是不在本站的材料里。
先做这一步:用你在建造台阶里写的 vm 函数,把 2005 年测到的 −60.6 mV 当目标,不计 Cl−,反推 PNa 要是 PK 的几分之一;然后打开 Gerstner 等人的在线教材《Neuronal Dynamics》第 2 章(neuronaldynamics.epfl.ch),看它怎么讲静息电位,和你反推的数对一对。
读的时候要小心:浓度是典型值,第 3 章的平衡电位是另一套
表 2-1 的浓度是哺乳动物神经元的典型值:Na+、K+ 取自 Gerstner 等人的在线教材,胞内 Cl− 的 5 mM 是 Chamma 等 2012 转述的实测值,胞外 Cl− 的 120 mM 是 Doyon 等 2011 模型里的假设值。不同细胞、不同部位会有出入,胞内氯尤其多变。所以 −89.1、+71.5 这些电位是「按这组浓度算」的结果,写到小数点后一位,是为了让你能和自己的计算对上。第 3 章的神经元模型里,EK 是 −77 mV、ENa 是 +50 mV,那是 1952 年拟合枪乌贼巨轴突得到的数,和这一章的不是同一套。
留给你的问题
把神经元外面的 K+ 从 5 mM 提到 50 mM,EK 从 −89.1 mV 变成约 −27.5 mV。静息电位会往哪边挪?会不会正好挪到 −27.5 mV?用本章的道理各说一句理由,再用你的 vm 函数算一个数。
不看材料,写下这一章的三堵墙
第一堵:K+ 往外跑,并不会跑到里外一样多;每跑出去一个就留下一个落单的负电荷,电压很快把它拉住,跑出去的只是贴着膜两面的薄薄一层。第二堵:静息电位不等于 EK;膜也漏一点 Na+,电压停在几种离子的平衡电位之间、靠近通透性最大的那一种,约 −65 mV。第三堵:让所有离子都自由通过不会更带电;电压来自膜的挑剔,不挑了,膜电位就塌向 0 附近。
第3章 一次放电是怎么发生的
钠门还开着,膜电位为什么会自己掉回来
开篇故事第 3 集 · 电流翻一倍,只多两次放电一束蓝光的十八天
光台的台面上,淡蓝色的曲线刚刚走完一百毫秒,系统判定就抢在所有人说话之前弹了出来。
系统提示光台当前加载的是霍奇金和赫胥黎 1952 年的神经元模型,温度 6.3 °C,持续注入 20 µA/cm²,100 毫秒里数到的放电次数是 9 次。
系统提示衣藻本藻预测的是 7 次,判定为错;按赌约,他的预测和推理过程将作为反面教材,在光台入口的大屏上轮播到明天早晨。
半个小时之前,光台第一次接上神经元。台面亮起来的时候有一声低低的嗡鸣,空气里浮出一个淡蓝色的小圆球,旁边拖着一条细线,那是它的膜电位,安安静静地停在 −65 mV 上。许一舟先注入 10 µA/cm²,光台把一百毫秒拉长成十来秒,每放一次电就“嗒”地响一声,像有人用指甲弹了一下杯沿,响到第七声,曲线停了。
蓝光过敏立刻凑过来说:“电流加倍,次数就加倍,十四次,光开大一点不就行了。”衣藻本藻翻出打印的论文,指着其中一句话,那一句他用荧光笔划过两遍:放电要么不发生,要么就是一次完整的放电,峰值几乎不随刺激大小变。“全或无,大小都不管用,次数当然还是七次,我拿被点名当反面教材来赌。”许一舟把 7 和 14 写进表格的第二行,没有下注,他觉得这两个答案都有哪里不对,又说不出是哪里。
20 µA/cm² 一接上,台面“嗒、嗒、嗒”地响了起来,衣藻本藻的嘴唇跟着一声一声地动,数到第七声他刚要松一口气,第八声和第九声又接着响了。蓝光过敏愣了一下:“九次,我的十四次呢?”衣藻本藻抱着论文,声音发干:“全或无写得清清楚楚,次数怎么会多出两次。”
岑老师从台面旁边拿起一支圆珠笔,按了一下,笔尖弹出来,又按了一下,笔尖缩了回去,卡嗒卡嗒的两声在安静的房间里很清楚。“全或无只管一次放电的样子,没有管次数。每放完一次电,神经元都要歇一阵才能再放,你推得再狠,也只能让它歇得短一点。”
许一舟盯着那支笔,想起刚才曲线上每一次落下去的地方,问:“歇的时候,门是什么样子?”岑老师把笔放回台面:“钠那一队的闸还关着大半,钾那一队的闸却开着往下拉。同样大的第二个脉冲,起点至少要晚十点六毫秒,才引得出下一次放电,加到四倍,也要晚六点五毫秒。”
衣藻本藻没有再说话,他抬头看了一眼入口那块大屏,屏幕的蓝光正把他那句“还是七次”照得清清楚楚,他小声说:“摘要里那一句,我读了三遍。”
那天晚上,营地论坛里关于这件事的帖子越盖越高,一直吵到快要熄灯。
全或无的放电,为什么电流加倍次数还会变
1L电极老炮我只问一句,全或无说的到底是一次放电的大小,还是一百毫秒里放电的次数?对照组呢,有人拿 10 和 20 之外的电流跑过吗?
2L蓝光过敏我就说电流开大一点有用,十四次没有,九次也比七次多,那接着往上开,次数不就一路涨下去了吗。
3L衣藻本藻我读摘要只读了半句,全或无说的是一次放电的样子,我却把它读成了连放电的次数也不变。
4L电极老炮2L 不对,书里写着电流到 30、40、50 µA/cm² 时才放 10、11、12 次,越加越不划算,加到 100 反而只放出一次完整的电。
5L岑(带教认证)4L 的数没有错。次数的顶是门恢复的快慢定的,电流只能挪动一点。反面教材照挂,明天下午的光台预约别迟到。
熄灯之前,光台推送了明天下午的预约,标题只有一句话:电极室里放一块示意的组织,里面混着两类神经元。电极老炮在论坛里回了最后一条,说他只要一根电极就够了。
系统结算 · 本章考点
- 全或无:放电要么不发生,要么就是一次完整的放电;按本站的模型,脉冲从 6.98 µA/cm² 加到 13.8 µA/cm²,峰值只从约 +34.9 mV 变到约 +40.2 mV
- 放电的顶由 ENa(+50 mV) 封住,峰值停在 +40 mV 上下,之后膜电位落到最低约 −76 mV,紧挨着 EK 的 −77 mV
- 放完电后钠失活门 h 关着大半、钾门 n 还开着往下拉,这段时间叫不应期,频率的顶由它定
- 持续注入 10 µA/cm²,100 ms 放 7 次;电流加倍到 20 µA/cm²,只放 9 次,间隔从约 14.6 ms 缩到约 11.6 ms
- 同样大的第二个 1 ms 脉冲,起点要比第一个晚 10.6 ms 以上才能再引起放电;加到 4 倍,晚 6.5 ms 就行
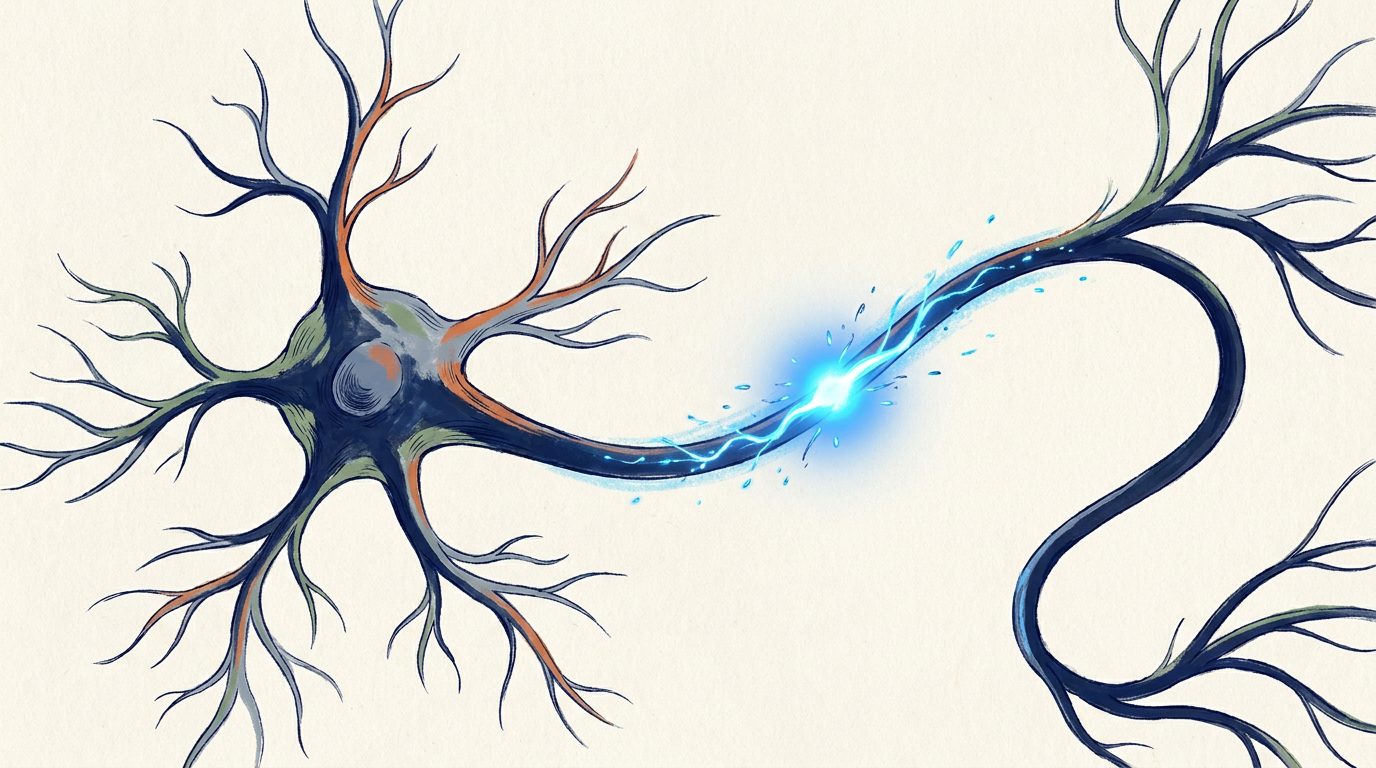
划一根火柴,轻轻一擦,什么也没有;稍一用力,火头一下子着了,着起来就是整团的火,没有「着一半」这回事,烧完了也不能马上再划。神经元放电很像这样,膜电位在约一毫秒里从 −65 mV 冲到 +40 mV 上下,再落回来,还落过了头。第 2 章说膜电位是几种离子按通透性拔河拔出来的,那么放电就意味着拔河的分量在一两毫秒里大换班。谁在换?为什么一换就停不下来,又为什么会自己换回去?
学完这一章你应该能做到
- 用「每一小步怎么更新」写出膜电位的变化:C·ΔV/Δt 等于注入电流减去几股离子电流
- 说清阈值和全或无从哪来,以及膜电位为什么冲到 ENa 跟前就停
- 说出 m、h、n 三道门各管什么、谁快谁慢,用它们解释放电后的下落和过冲
- 解释为什么注入电流加倍,放电次数并不加倍
- 预言给膜多接一股反转电位 0 mV 的电流,静息的神经元会怎样
这一章给实验台装上神经元。第 2 级的膜只有一个算出来就不动的电压,没有时间;这一级让膜电位每 0.01 毫秒走一小步,会被电流推动,会放电,放完会累。这个模型出自霍奇金和赫胥黎 1952 年的工作,对象是枪乌贼的一根粗神经纤维,3.2 节末尾细说。第 9 章的光开关就接在它身上。
3.1 往神经元里注一股电流,膜电位怎么一步步变?
一个静息在 −65 mV 的神经元,从某一刻起,往里持续注入一股很小的电流,每平方厘米膜 2 µA,一直不停。你觉得膜电位会怎样?
答完再看
第三个对。按本站的神经元模型算,膜电位涨到约 −60 mV 就回落一点,最后停在约 −63.5 mV,一次电也不放。第一个错在只看了注进来的电荷,没看膜电位一离开 −65 mV,膜上的孔就开始往回漏。第二个错在把膜当成没有存电本事的导线,其实电荷要一点一点充上去,电压才一点一点涨。
第 2 章说过,膜像一个能存电荷的夹心饼,本站的模型取每平方厘米 1 µF。往神经元里注电流,就是往这个电容里充电荷。电荷 = 电流 × 时间,电压 = 电荷 ÷ 电容,所以每过一小段时间 Δt,电压变化 ΔV = I·Δt ÷ C(Δ 是希腊字母,读作「德尔塔」,写在量的前面,表示这个量在这一小段里的变化)。注入 2 µA/cm²,要是什么也不漏,膜电位每毫秒涨 2 mV,一百毫秒能涨 200 mV。
可膜在漏。2.4 节说,静息时 K+ 还在往外漏,Na+ 还在往里漏,两股正好抵掉。膜电位一往上走,离 EK 更远,K+ 往外漏得更猛;离 ENa 更近,Na+ 往里漏得更弱。合起来是一股往外的电流,膜电位涨得越多它越大,等它正好抵掉注进来的 2 µA/cm²,电压就不再涨。
膜会漏(真实的样子)
注入 2 µA/cm²,膜电位涨几毫伏就停,往外漏的正好抵掉注进来的。
假如膜不漏
同样的电流,膜电位每毫秒涨 2 mV,一直涨下去。
差别在:膜电位一离开静息,几股离子电流就跟着变,往回拉。
自己推一遍:一股离子电流该怎么写,膜电位每一步怎么更新
一种离子的电流,在膜电位正好等于它的平衡电位时是多少?
想好了再看
零。第 2 章的平衡电位就是两股劲相等、净流动为零的电压。所以这股电流的式子里,得有一个在 V = E 时变成零的因子,最简单的是 (V − E)。从这里下手,是因为平衡电位是我们手上唯一确定「电流为零」的点。
膜电位比 E 高时,正离子净往哪边走?电流的正负号怎么定才顺手?
想好了再看
膜电位比 E 高,电压往外推正离子的劲赢了,净流动往外,是外向电流。约定外向电流为正,(V − E) 正好是正的;膜电位比 E 低时反过来,内向电流为负。注入的电流约定往里注为正。
孔开得多和开得少,电流差在哪?
想好了再看
开得越多,同样的 (V − E) 下流得越多。把「这种离子此刻有多容易过」写成一个数 g,电流就是 g·(V − E)。g 就是第 2 章的通透性换成电学的说法。
把注入电流和几股离子电流合起来,膜电位每一小步怎么更新?
想好了再看
充进电容的净电流,等于注进来的减去各股离子电流带走的,所以 C·ΔV/Δt = I注入 − Σg(V − E),Σ 是求和号,意思是把钠、钾、漏电这几种离子各自的 g(V − E) 加起来。每一小步先用当前的 V 算出各股电流,再算 ΔV,加到 V 上,然后走下一步。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| C | 膜电容,1 µF/cm² | 膜能存多少电荷 |
| ΔV、Δt | 一小步里膜电位的变化(mV)和这一步的时长(ms) | µA/cm² 除以 µF/cm² 正好是 mV/ms |
| I注入 | 往细胞里注的电流,µA/cm²,往里为正 | 手指推一把 |
| INa、IK、IL | 钠、钾电流和漏电流,外向为正 | 漏电流把其余各种小孔合成一股 |
静息时三股离子电流正好抵消。从某一刻起注入 10 µA/cm²,C = 1 µF/cm²。第一小步 Δt = 0.01 ms 里,膜电位涨多少?为什么只有第一步可以不管离子电流?
变式:同样的电流,如果 C 是 2 µF/cm²,第一步涨多少?膜电容大的细胞,被同样的电流推动时是更快还是更慢?
| 符号 | 是什么 | 直觉 |
|---|---|---|
| g | 电导,mS/cm² | 此刻这种离子有多容易过 |
| V − E | 驱动力,膜电位离平衡电位多远 | 离得越远推得越猛,符号定方向 |
电导(conductance):一种离子此刻过膜的容易程度,电学上的通透性,单位是西门子(S),本章用千分之一西门子,写作 mS,每平方厘米膜上的电导就写成 mS/cm²;它乘上以 mV 为单位的驱动力,正好得到 µA/cm²。驱动力(driving force):V − E,膜电位离这种离子的平衡电位有多远。
膜电位停下来的条件是 ΔV = 0,也就是注入电流正好等于各股 g(V − E) 之和。不注入电流时,停在哪个电压?
自己推一遍:不注入电流时,膜电位停在哪
不注入电流,停下来时三股离子电流加起来是多少?写成一个式子。
想好了再看
是零,因为式 3-1 里 ΔV = 0,注入又是零,只剩 gNa(V − ENa) + gK(V − EK) + gL(V − EL) = 0。式子里只有 V 一个没定的数,剩下的 g 和 E 都是已知的。
怎么把 V 从这个式子里解出来?
想好了再看
把括号拆开,含 V 的项并到左边,V·(gNa + gK + gL) = gNaENa + gKEK + gLEL,两边除以电导之和,V = (gNaENa + gKEK + gLEL) ÷ (gNa + gK + gL)。这正好是按电导给几个平衡电位做加权平均。
第 2 章「按通透性加权」的说法,在这里成了一个看得见的平均数,谁的电导大,膜电位就靠近谁的平衡电位。
某一刻 gNa = 0.01、gK = 0.37、gL = 0.3 mS/cm²(接近模型静息时的值),ENa = +50、EK = −77、EL = −54.4 mV。不注入电流,膜电位停在哪?
变式:把 gNa 一下子调到 30 mS/cm²,其余不变,膜电位停在哪?离 ENa 还差几毫伏?
打个比方
一颗小珠子被几根橡皮筋拴着,每根拴在不同的钉子上。钉子的位置是各离子的平衡电位,橡皮筋的粗细是电导。珠子停在几根橡皮筋拉力抵消的地方,粗的那根把它拉得最近。注入电流就像用手指推着珠子,推得动一点,松手又被拉回去。
类比失效处:真珠子有惯性,松手会冲过头来回晃;膜电位没有惯性,它像泡在蜂蜜里的珠子,净拉力为零就立刻停。放电时膜电位确实会冲过头,那是因为橡皮筋自己在变粗变细,这正是下面两节的事。
答辩:如果我是审稿人
把离子电流写成 g·(V − E),等于说电流和膜电位成一条直线。真实的通道有这么听话吗?
参考防守(先自己组织语言再看)
不一定,这是模型的选择。第 2 章的加权方程本身就说明,两侧浓度差很大时,电流随电压的变化会弯。霍奇金和赫胥黎手上是枪乌贼神经纤维上量到的电流,他们试着用直线去拟合(调模型里的数,让算出来的曲线贴住量到的数据),贴得够好,就留下了。遇到弯得厉害的通道,后来的模型会在 g·(V − E) 外面再乘一个随电压变化的修正因子,本站第 8 章用到的光开关开源模型就这么写。直线的好处是好算也好想:电流为零的点就是 E,离得越远推得越猛。
3.2 膜电位升过某一点就停不下来,它会冲到哪儿?
往神经元里注一个 1 毫秒的短电流脉冲。按本站的模型,脉冲是 6.84 µA/cm² 时,膜电位最高只到 −57.6 mV;脉冲只大 2%,到 6.98 µA/cm²,膜电位一冲就停不下来。它最高会冲到哪儿?
答完再看
第三个对,这一次峰值约 +34.9 mV,脉冲再大,峰值也只在 +40 mV 上下,到不了 +50 mV。第一个错在忘了每一股离子电流都有一个让它归零的电压。第二个错在把 0 mV 当成终点,0 mV 只对不挑离子的膜才特别(2.5 节)。第四个错在以为输出跟着输入走,可大 2% 的脉冲换来的是从 −57.6 mV 到 +34.9 mV 的天壤之别。
那 2% 撬动了什么?膜上有一种只放 Na+ 的孔,它的门对电压很敏感,膜电位越高,开着的门越多。门一开,Na+ 顺着浓度差、也顺着电压往里冲,带进正电荷,膜电位再升高,又打开更多的门。这是一个自己喂自己的圈。膜电位低的时候,往里冲的 Na+ 抵不过往外漏的 K+ 和漏电流,圈转不起来,电压被拉回去;一旦越过某一点,Na+ 往里冲的势头赢了,圈就自己转下去,不用再推。
1 ms 脉冲,6.84 µA/cm²
膜电位最高到 −57.6 mV,脉冲一停就回落。Na+ 的圈没转起来。
1 ms 脉冲,6.98 µA/cm²
膜电位冲到 +34.9 mV,脉冲早停了,它自己冲上去。Na+ 的圈转起来了。
差别在:有没有把膜电位推过那个「Na+ 往里冲赢过往外漏」的点。两个脉冲只差 2%。
转到哪儿为止?第 2 章给了答案,膜电位停在按电导加权的平均处。按本站的模型,放电到顶的那一刻 gNa 约 31 mS/cm²,gK 约 2.2 mS/cm²,漏电导 gL 还是 0.3,钠大了十几倍,代进 3.1 节的加权平均,得 +40.7 mV,正是峰值。再往上过不去:膜电位一到 ENa,Na+ 的驱动力 (V − ENa) 变成零,往里的电流就没了。峰值比 ENa 低的那十来毫伏,是 K+ 和漏电流还在往下拽。
钠激活门(sodium activation gate,记作 m):Na+ 孔上随膜电位升高而打开的那道门,m 是开着的比例,从 0 到 1。阈值(threshold):Na+ 往里冲刚好赢过往外电流的那一点,越过它,放电就自己完成。全或无(all-or-none):放电要么不发生,要么就是一次完整的放电,峰值几乎不随刺激大小变。
有人说:「注入的脉冲越大,放电的峰值越高,所以峰值能告诉下游刺激有多强。」用本节模型的数构造一个反例。
变式:模型里把 ENa 从 +50 mV 改成 +30 mV,其余不变,放电的峰值会不会超过 +30 mV?
这里的 +50 mV 和第 2 章算的 +71.5 mV 对不上,因为本站的神经元用的是霍奇金和赫胥黎 1952 年的模型。他们量的是枪乌贼的巨轴突,轴突是神经元伸出去传电信号的那根长纤维,巨轴突是其中特别粗的一种;再调模型里的数,让算出来的曲线贴住量到的曲线,这一步叫拟合。温度 6.3 °C,它和哺乳动物神经元在数值上不同,机制相同。
把枪乌贼轴突外面的 Na+ 浓度降到原来的十分之一,胞内不变。按本站的模型(6.3 °C,原来 ENa = +50 mV),ENa 变成多少?这时注入 10 µA/cm²,还能放出一次峰值在 +40 mV 上下的电吗?
变式:外面的 Na+ 只降到原来的一半,ENa 约多少?放电的峰值会往哪边变?
门开多少,怎么随时间变?对每一个膜电位,m 都有一个想去的目标值,膜电位越高,目标越接近 1。m 不会一下子跳过去,每一小步只走剩下差距的一小份,这就是第 0 章 0.6 的指数靠近,只不过目标值和时间常数都随膜电位变。m 很快,静息附近它的时间常数约 0.24 ms。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| x | 某道门开着的比例,现在是 m,3.3 节还有 h、n | 0 全关,1 全开 |
| x∞(V) | 在膜电位 V 下,这道门想去的目标值 | 膜电位一变,目标就变 |
| τx(V) | 朝目标靠拢的时间常数,ms,也随 V 变 | 越小越快,一个 τ 走完剩下差距的约 63% |
膜电位突然被推到 0 mV 并保持住。此时 m = 0.05,0 mV 下 m 的目标值是 0.97,时间常数 0.24 ms。走一步 Δt = 0.01 ms 后 m 是多少?过了 0.24 ms 大约是多少?
变式:同样从 0.05 出发、目标 0.97,如果时间常数是 5 ms,过 0.24 ms 时 m 大约是多少?这对放电意味着什么?
打个比方
划火柴。擦得太轻,火头热一下就凉了;擦到某个温度,火头自己烧起来,烧出的热又点着更多的药,用不着你再擦。火起来以后有多大,跟你擦得多用力几乎无关。
类比失效处:火柴烧完就废了,神经元放完电十几毫秒就能再来一次。火柴的能量来自烧掉它自己,放电的能量来自第 2 章那些早就存好的浓度差,一次放电只用掉其中极小的一份。火会一路烧到底,放电却会在 ENa 跟前自己刹住。
答辩:如果我是审稿人
阈值是不是一个刻在膜上的固定电压,能写成一个确定的毫伏数?
参考防守(先自己组织语言再看)
在这个模型里它不是一个固定数。用 1 ms 的脉冲,要约 6.9 µA/cm² 才行;改用 0.5 ms 的脉冲,要约 13.3 µA/cm²;用持续不停的电流,约 2.24 µA/cm² 就够了。能不能放电,看的是 Na+ 的圈能不能在往外的电流追上来之前转起来,这和推得多快、推多久都有关;刚放过一次电,这一点还会变高(3.4 节)。所以「阈值」最好当成「圈转得起来的那一点」来理解,一个具体的毫伏数只是某种推法下的近似。
3.3 钠门还开着,膜电位为什么会掉回来,还掉过了头?
膜电位冲到 +40 mV 附近时,Na+ 的激活门 m 几乎全开。可两毫秒出头,膜电位就从峰顶掉回 −65 mV 以下,最低到约 −76 mV。你觉得是什么把它拽下来的?
答完再看
第三个对。第一个错在忘了第 2 章 2.1 节的账:膜电位动一百多毫伏,需要跨过膜的离子只是贴着膜的薄薄一层,细胞里的 Na+ 浓度几乎不变。第二个错在泵太慢,它一轮只搬少数几个离子(第 0 章 0.3),这里的大电流是通道开出来的。最低的那 −76 mV 也是线索,它离 −77 mV 的 EK 只差一点,说明那时 K+ 的分量最大。
先说钠这边为什么会自己关。Na+ 的孔上除了 m 那道门,还有一道反着来的门,膜电位越高它越想关。它也按式 3-3 朝目标值走,只是比 m 慢得多。膜电位一冲上去,m 在零点几毫秒里就开了,这道门还没反应过来,Na+ 冲进来;再过一毫秒左右它关下去,Na+ 的孔要两道门都开着才通,gNa 跟着塌,不管 m 还开着多少。
再说钾这边。K+ 的孔也有一道随膜电位升高而打开的门,方向和 m 一样,只是慢一拍。放电冲上去时它才开始开,等它开大,钠这边已经关了,分量全倒向 K+,膜电位被拉向 EK。它关得也慢,膜电位回到 −65 mV 以后,它还多开着一截,于是膜电位掉过了头,到约 −76 mV,紧挨着 EK,再随着这道门慢慢关回去,回到 −65 mV。
钾门慢一拍(模型原样)
一次完整的放电,峰值约 +40 mV,回落时掉过头到约 −76 mV。
把钾门调快 10 倍
注入 10 µA/cm² 持续 100 ms,一次电也放不出来,膜电位最高只到约 −57 mV。
差别在:K+ 的门晚到的那一拍,正是 Na+ 冲上去的时间窗。钾来得太快,Na+ 的圈就转不起来。
钠失活门(sodium inactivation gate,记作 h):Na+ 孔上的第二道门,膜电位升高时慢慢关上,h 是开着的比例。钾激活门(potassium activation gate,记作 n):K+ 孔上的门,膜电位升高时慢慢打开,n 是开着的比例。
在实验室里先用一个能引起放电的短脉冲,看三道门的曲线是不是和图 3-1 一样。然后打开「冻住钠门失活 h」,让 h 停在静息时的值不再变,给同样的脉冲。先写下你的预测,再动手。按本站的模型算,膜电位照样冲上去,峰值反而略高,约 +44 mV,可再也落不回 −65 mV,停在零上十几毫伏的地方不走了。
冻住 h 以后,膜电位冲上去就停在零上十几毫伏不走了。n 明明还能开大,为什么拉不回 −65 mV?用 3.1 节的加权平均说理由。
变式:反过来不冻 h,改成冻住 n 在静息值不让它变,给同样的脉冲,你预测膜电位还能落回来吗?会掉过头吗?
把这一节的门写进 3.1 节的式子,三股电流就是这样。其中 m 的三次方、n 的四次方为什么要这样写,本节末尾的答辩讲:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| ḡNa | 钠的最大电导,120 mS/cm² | 所有钠孔都开着时有多容易过 |
| m3h | 钠孔开着的比例:三份 m 相乘,再乘 h | 激活门全开、失活门也开着才通 |
| ENa | 模型里钠的平衡电位,+50 mV | 放电的天花板 |
按本站的模型,静息时 m ≈ 0.053、h ≈ 0.60;放电到顶时 m ≈ 0.90、h ≈ 0.36。两个时刻的 gNa = ḡNa·m3h 各是多少?差多少倍?
变式:静息时 n ≈ 0.32,到顶时 n ≈ 0.50,gK = 36·n4 在这两个时刻各是多少?和钠比,谁变得更多?
| 符号 | 是什么 | 直觉 |
|---|---|---|
| ḡK | 钾的最大电导,36 mS/cm² | 所有钾孔都开着时 |
| n4 | 钾孔开着的比例:四份 n 相乘 | 四次方让起步更迟缓,钾就更「慢一拍」 |
| EK | 模型里钾的平衡电位,−77 mV | 掉过头时的地板 |
| 符号 | 是什么 | 直觉 |
|---|---|---|
| ḡL | 漏电导,0.3 mS/cm²,没有门,一直开着 | 其余小孔合成的一股 |
| EL | 漏电流的反转电位,−54.4 mV | 由模型配好,让静息落在 −65 mV |
三道门都按式 3-3 一步步更新,各自的目标值和快慢列在 3.4 节的表 3-1 里。
答辩:如果我是审稿人
式 3-4、3-5 里的 m3 和 n4 从哪来?是不是真有三个、四个小闸门?
参考防守(先自己组织语言再看)
先看它在模型里起什么作用。n 自己朝目标值走,是一条起步最快、越走越慢的指数曲线;取四次方以后,起步那一段被压得很平,曲线变成先慢后快的 S 形,钾电流就真的「慢一拍」,3.3 节的对比说明这一拍少不得。所以指数的作用是给电流的形状定型。把它想成「几个一样的小闸都开着孔才通」是一个好记的图像,模型只要求这个形状;这几个指数和真实分子结构的对应,要去通道结构的研究里找,本站材料里没有。
3.4 注入的电流加倍,放电次数也加倍吗?
按本站的模型,往神经元里持续注入 10 µA/cm²,100 毫秒里放 7 次电。电流加倍到 20 µA/cm²,100 毫秒里放几次?
答完再看
按本站的模型算是 9 次。第一个错在没看到每次放完电,神经元都有一段时间放不了或者很难放,这段时间给次数封了顶。第三个错在把「一次放电的大小全或无」当成了「放电的次数也不变」,全或无管的是一次放电的样子,次数会跟着电流变。
回到图 3-1 放电以后的那几毫秒。h 掉到 0.1 以下,要十来毫秒才爬回 0.6;n 冲到 0.77,也要十来毫秒才降回 0.32。这段时间里,就算 m 再全开,Na+ 的孔也有大半被 h 堵着,gNa 起不来;K+ 的孔却还大开着,一直往 EK 拉。想再放一次电,就得比第一次推得更狠。
用两个 1 ms 的脉冲试一试。第一个 20 µA/cm² 的脉冲引起一次放电。第二个脉冲和第一个同样大时,它的起点要比第一个的起点晚 10.6 ms 以上,才能再引起一次越过 0 mV 的放电;第二个加大到 4 倍,晚 6.5 ms 就行;加大到 8 倍,还得晚 5.7 ms。这里的间隔都是从第一个脉冲开始量到第二个脉冲开始。间隔越短,要的电流涨得越快。
有人说:「只要每个脉冲都够大,神经元想放多快就能放多快。」用上一段的数构造一个反例,并说明问题出在哪道门上。
变式:假如有一种药让 h 恢复得快一倍,其余不变,同样大的第二个脉冲最少要隔的时间会变长还是变短?
不应期(refractory period):一次放电之后,再放电变得很难或者不可能的那段时间。很难但推得狠还能放的那段叫相对不应期;钠门几乎全被 h 堵住、怎么推都引不出放电的那段叫绝对不应期。
| 膜电位 | m 目标 / τ | h 目标 / τ | n 目标 / τ |
|---|---|---|---|
| −65 mV | 0.05 / 0.24 | 0.60 / 8.5 | 0.32 / 5.5 |
| −40 mV | 0.50 / 0.50 | 0.05 / 2.5 | 0.68 / 3.5 |
| 0 mV | 0.97 / 0.24 | 0.00 / 1.0 | 0.91 / 1.6 |
| +40 mV | 1.00 / 0.12 | 0.00 / 1.0 | 0.97 / 1.0 |
表里能看出不应期为什么要好几毫秒。回到静息附近,h 的时间常数约 8.5 ms,n 约 5.5 ms,都比 m 的 0.24 ms 慢二三十倍。
按本站的模型,持续注入 20 µA/cm² 时,第一次放电在约 1.3 ms,之后每隔约 11.6 ms 放一次。不看图,估算 100 ms 里放几次;再用同样的办法估算 10 µA/cm²(第一次约 1.9 ms,间隔约 14.6 ms)。
变式:如果某种处理让不应期长到间隔再也缩不到 20 ms 以下,不管电流多大,100 ms 里最多能放几次?
间隔为什么只缩这么一点?持续注入电流时,每次放完电都要等门恢复到一定程度,下一次才放得出来。电流越大,要等的恢复程度越低,间隔就短一些;可间隔被不应期托着缩不到零,电流翻倍,间隔只从约 14.6 ms 缩到约 11.6 ms,次数也只从 7 涨到 9。后面几次放电还矮一截,10 µA/cm² 时第一次峰值约 +40.5 mV,之后各次约 +31 mV,因为每一次都在 h 还没恢复完的时候就开始了。
10 µA/cm²
100 ms 放 7 次,间隔约 14.6 ms,第一次之后的峰值约 +31 mV。
20 µA/cm²
100 ms 放 9 次,间隔约 11.6 ms,第一次之后的峰值约 +25.5 mV。
差别在:电流翻倍,间隔只缩短约五分之一,次数只多两次;推得越急,每次放电时 h 恢复得越少,峰值也越矮。
答辩:如果我是审稿人
照你的说法,电流再大,次数总还在涨,那这个「顶」到底在哪?
参考防守(先自己组织语言再看)
在这个模型里,次数一路涨得越来越慢:持续电流 30、40、50 µA/cm² 时,100 ms 里分别放 10、11、12 次。可电流再大,事情会反过来,100 µA/cm² 的持续电流只放出一次完整的电,之后膜电位在约 −60 到 −20 mV 之间来回晃,再也冲不过 0 mV:每次刚回到 −60 mV 附近,又被大电流推上去,h 来不及恢复,Na+ 的圈再也转不起来。所以顶不是一条整齐的线,它由门恢复的快慢定,推过了头还会掉下来。这些数都是 6.3 °C 的枪乌贼模型算的,换了温度和细胞,数会差很多,道理不变。
3.5 再给膜接上一股电流,怎么判断它让神经元放电还是更安静?
第 1 章那束蓝光,到了神经元身上,只是让膜上多开了一种孔,多了一股电流。往后的章节会一再碰到这件事,光开关、抑制工具、不同颜色的开关,全都是「多接一股电流」。所以要一条判断的规矩。第一步看这股电流的反转电位在静息电位的哪一边,上面就往上拉,下面就往下拉。第二步看它的电导有多大,电导小只挪一点,电导大就把膜电位拉到离反转电位很近。第三步只在往上拉时才问,挪到的地方够不够让 Na+ 的圈转起来。最怕的错,是只看第一步就下结论。
接一股反转电位 −89.1 mV 的电导,0.5 mS/cm²
我先看 −89.1 在 −65 的下面,所以往下拉,细胞更安静。再看拉到哪,按加权平均停在 −65 和 −89.1 之间,电导越大越靠近 −89.1。按本站的模型算,停在约 −76 mV。最后检查,答案落在两个数之间,方向和第一步一致,第三步不用问。
接一股反转电位 −65 mV 的电导,1 mS/cm²
反转电位正好等于静息电位,静息时这股电流是零,膜电位一动不动。这里我最怕说出「它没有作用」。再看第二步,电导不小,膜电位一被别的电流推离 −65,它就往回拉。模型里同时注入 10 µA/cm²,本来 100 ms 放 7 次,接上它只放 1 次。
差别在:一个改变了静息时的膜电位,一个只在膜电位被推动时才出手。判断时第一步和第二步都要走完。
第 1 章的光开关 ChR2 放在这条规矩里,就是第四股电流,反转电位约 0 mV(2.5 节):
| 符号 | 是什么 | 直觉 |
|---|---|---|
| gChR2 | 此刻开着的光开关的总电导,mS/cm² | 光照多少、开了多少,第 8 章会让它随光变 |
| 0 mV | ChR2 的反转电位 | 静息的 −65 mV 在它下面,所以它往上拉 |
把式 3-7 加进式 3-1 的括号里,神经元就有了四股电流。这一章到这里,你已经能自己预言光开关打开以后会怎样了,下面两道题就是这个预言。
给静息的神经元一直接着一股反转电位 0 mV 的电导,持续 100 ms。按三步规矩预言:电导很小(0.02 mS/cm²)、中等(0.05)、再大一些(0.2)时,神经元各会怎样?
变式:把这股电导的反转电位换成 −85 mV,电导同样是 0.2 mS/cm²,神经元会怎样?
接着上一题把电导继续加大。按本站的模型,0.5 mS/cm² 时 100 ms 放 9 次,1 时只放 2 次,5 时只放 1 次,之后膜电位一直停在约 −41 mV。光开关开得越多,放电反而越少,为什么?用本章三道门里的哪一道能解释?
变式:同样是电导 5 mS/cm²,如果它只开 2 ms 就关掉,再隔几十毫秒开一次,神经元每次都能放电吗?要看哪道门的恢复?
给实验台装上神经元:每 0.01 毫秒更新一次 V、m、h、n
为什么现在才加:第 2 级的膜电位是一个算出来就不动的数。光开关要接的是一个会随时间变、会放电、放完会累的神经元,所以先让膜电位走起来;第 2 级的函数在这里不直接用,它留在 ENa、EK 这些数背后。
难点:α、β 是 1952 年的写法,目标值 x∞ = α/(α+β),时间常数 τ = 1/(α+β),代进去和式 3-3 是同一件事,表 3-1 就是这样算的。容易出事的有三处。第一,αm 在 u = 25、αn 在 u = 10 时是 0 除以 0,要换成极限值 1 和 0.1,否则膜电位刚好走到 −40 mV 或 −55 mV 时程序出错。第二,符号:离子电流外向为正,要从注入电流里减掉;写成加号,漏电流就成了自己喂自己,膜电位一路跑飞。第三,步长不能贪大,本站试过,0.01 ms 和 0.001 ms 数出的次数一样、峰值差不到 0.3 mV;0.05 ms 次数还对,峰值偏高约 1 mV;0.1 ms 时数值直接爆掉。数放电要数「从 0 以下穿到 0 以上」的次数,数「高于 0 的步数」会把一次放电数成一百多次。
自己验:用本章参数、6.3 °C、dt = 0.01 ms,从 0 ms 起注入 10 µA/cm²、持续 100 ms,应该数到 7 次放电,第一次峰值约 +40.5 mV,之后各次约 +31 mV;改成 2 µA/cm²,应该一次也不放,膜电位升到约 −60 mV 后回落,停在约 −63.5 mV;改成 20 µA/cm²,应该数到 9 次。三个都对上,这一级就成了,再拿 3.3 节的实验室对一遍曲线的形状。
对你而言未知哺乳动物皮层神经元的放电,和这个枪乌贼模型差在哪?
本站的神经元是 1952 年为枪乌贼巨轴突拟合的,6.3 °C。哺乳动物的神经元在体温下工作,膜上的门也更多样,参数自然不同。已经有人把这些差别写成了另一组参数,比如 Gerstner 等人的在线教材给了一组用来模拟皮层锥体细胞的参数,钠、钾的最大电导和门的公式都和这里不一样。答案存在,只是不在本站。
先做这一步:打开《Neuronal Dynamics》第 2 章(neuronaldynamics.epfl.ch),找到那张参数表,把参数和门的公式一起换进你第 3 级的代码,用 10 µA/cm² 跑 100 ms 数放电次数,和本章的 7 次比一比;再看第一次放电的峰值和形状差在哪。
读的时候要小心:模型的出处和本站算出来的数
霍奇金和赫胥黎 1952 年的原文本站没有读到。本章的参数和门的公式来自几个彼此一致的二手来源(教材、公开的模型库和练习代码),再加本站自己的数值复算:静息时三股电流加起来接近零,恒定电流下的放电次数和别处的复算一致。本章所有「按本站的模型」的数,都是 6.3 °C、这一组参数、步长 0.01 ms 算出来的;换温度、换细胞、换参数,数就会变,道理不变。
留给你的问题
假如有一种药只让钠门的失活变慢,h 关下去要花原来好几倍的时间,其余都不变。一次放电的形状会怎么变?峰值、宽度、掉过头的深度各往哪边走?持续注入电流时,放电的最高频率又会怎样?先用本章的三道门预言,再去你第 3 级的代码里把 h 的速率改慢验一遍。
不看材料,写下这一章的三堵墙
第一堵:膜电位越过阈值以后不会一直升,Na+ 的门大开把膜电位拉向 ENa,到了跟前驱动力归零,就停在 +40 mV 上下。第二堵:钠门还开着膜电位也会掉回来,因为钠的失活门 h 自己关上,钾门 n 慢一拍打开,把膜电位拉向 EK,还会掉过头。第三堵:注入电流加倍,放电次数不加倍,不应期给频率封了顶,按本站的模型 10 µA/cm² 放 7 次,20 µA/cm² 只放 9 次。
第4章 想按住一个神经元,难在哪
选对了细胞,却开要好几秒、关也要好几秒
开篇故事第 4 集 · 电极叫醒了不该醒的细胞一束蓝光的十八天
电极室的台面上,四个细胞里有两个同时亮起了白点,其中一个是不该醒的,电极老炮的一天机时就这样没了。
系统提示电极通电,近处的细胞被去极化 +18 mV,远处的被去极化 +6 mV;放电的细胞有两个,一个属于 A 类,一个属于 B 类。
系统提示电极老炮预测放电的只会是 A 类,判定为错,按赌约扣除他一天的机时。
半个小时之前,光台在电极室里摆出了一块示意的组织:两个淡蓝色的 A 类细胞,两个淡橙色的 B 类细胞,每一类各有一个贴着电极的尖端,另一个离得远,都泡在一池看不见的盐水里。电极老炮把手里的电极转了一圈,说:“光和基因都是新玩意儿,老办法一根电极就够了。A 类的阈值是 −55 mV,B 类是 −50 mV,静息都在 −65 mV,我把电流调到刚好夹在中间,B 类一个都不会放,放的全是 A 类,我拿一天机时赌。”
许一舟在表格里把两个阈值各减了一遍,夹得进去,找不出毛病。蓝光过敏抱着胳膊说:“我也不知道哪里不对,可你说得太顺了,这个赌我接。”
电极老炮拧动旋钮,旋钮带着一点涩涩的阻尼,握柄凉凉地贴着手心,台面“滋”地响了一声,像热油里滴进了一滴水。他盯着那两个亮着的细胞,声音一下子高了:“我明明调在两个阈值中间,B 类怎么会放电,是不是光台算错了。”许一舟低头在表格上把四个细胞挨个算过去,近处是 −65 加 18,远处是 −65 加 6,他的表格里只有一个去极化的数,光台里的细胞却分到了两个。
岑老师走到墙角那台小取暖器旁边,灯丝红红的,正轻轻地噼啪作响。“你坐在它旁边,近处的人先出汗,远处的人还裹着外套。放不放电,要看它分到多少电流,还要看它自己的阈值。取暖器认得距离,认不得谁怕热。”
电极老炮把电极放回台面,台面上那个没有放电的 A 类细胞还黑着,离尖端最远。他小声说:“它本来是该放的。”许一舟想了一会儿,问:“那有没有一种办法,只认类型,又快,又能说停就停?”岑老师看了他一眼:“2002 年有人把三个基因交给一群混在一起的神经元,光一照,只有带基因的那几个放电,邻居纹丝不动。后来有人回头看,它开要好几秒,关也要好几秒,可一次放电只要几毫秒。”
那天晚上,营地论坛里最先贴出来的是许一舟的一串算式,后面的人接着往下吵。
一根电极能不能只叫醒阈值低的那一类细胞
1L许一舟我把四个细胞的算式贴在这里,静息 −65 mV,近处 +18,远处 +6,A 类阈值 −55,B 类阈值 −50,放电的是 A 类近处和 B 类近处,A 类远处没有放。
2L电极老炮我认输,旋钮只能调电流,调不了细胞站在哪里。可药物也认类型,老办法里总该有一条走得通吧,用药不行吗?
3L蓝光过敏赢了一天机时的人来说一句,我到现在也说不出自己赢在哪里,只记得 A 类远处那个细胞一直黑着,看着怪可怜的。
4L衣藻本藻2L 不对,药靠受体认类型,选类型这一格它过了,可药要先走到细胞旁边才起作用,撤药还要等它被清走,起和落都不由喊口令的那一刻定。
5L岑(带教认证)4L 说得对。电极快,分不出类型;药分得出类型,追不上毫秒。明天上午不进光台,每人带一个杯子到湖边去,看一个没有眼睛的东西怎么看见光。
许一舟把最后一条读了两遍,在明天的日程里写下杯子和湖边,一个没有眼睛的东西到底靠什么看见光,他的表格里还一个字都没有。
系统结算 · 本章考点
- 电极通电,电流从尖端向四面散开,离得越远每处分到的越少;放不放电要看分到的电流和自己的阈值,类型进不了算式
- 算例:静息 −65 mV,近处去极化 +18 mV、远处 +6 mV,A 类阈值 −55 mV、B 类 −50 mV,放电的是 A 近和 B 近(都到 −47 mV),A 远只到 −59 mV
- 药物靠受体选类型,可起要等扩散、落要等清除,由组织定,对不上毫秒
- 2002 年把三个基因交给混合的神经元,只有带基因的放电,可开和关各要好几秒,和一次放电的几毫秒差了一千倍
- 四把尺子:只碰一类、毫秒级、能开也能关、零件少;2003 年笼锁加受体那一行,摘要给的放电频率最高约 40 Hz
2002 年,纽约的一个实验室做出了一件当时很新的事:把三个基因交给一群混在一起的神经元,光一照,只有带着这三个基因的那几个放电,旁边的邻居纹丝不动。可是这些细胞对光的反应,开要好几秒,关也要好几秒,而一个神经元放一次电只要几毫秒,秒和毫秒之间隔着一千倍。已经知道神经元靠电压放电了,直接用电去推它不就行了吗,为什么还要绕这么大一圈?这一章先把用电推的路认真走完,再看另外三条路各在哪里停下来,最后得到一张评分表,后面的光开关要拿它来打分。
学完这一章你应该能做到
- 说清电极为什么选不了细胞类型,并用「近处的细胞分到更多电流」这一条解释
- 说出药物的起和落各在等什么,为什么都不由实验者说了算
- 用「传话链每多一站,就多一段等待」算出 2002 年那套办法离毫秒级差多远
- 用选类型、毫秒级、能开也能关、零件少四条,给一个办法打分
- 对给定的两类细胞,算出电极刺激和「光加基因」刺激各让谁放电
这一章给虚拟实验台加一个电极,当对照组。前面几级造的都是一个细胞的事,台上没有第二类细胞,也就没有「分错」这回事。现在台上要放两类阈值不同的细胞,让电极和「光加基因」各跑一遍,看谁分得出类型。伪代码和判据在章末的第 4 级台阶里。
4.1 神经元靠电压放电,直接用电去推它,为什么还不够?
第 3 章里,膜电位被推过阈值,神经元就放出一个电。现在一块脑组织里混着两类神经元,A 类的阈值比 B 类低一些,你想只让 A 类放电。你插进一根电极通电,再把电流一点点调小,调到 B 类不放电为止。这时候放电的细胞会是什么?
答完再看
第二个对。电流从电极尖端散向四面八方,离得越远,每个细胞分到的越少,所以放不放电要看两件事,它分到多少电流,和它自己的阈值是多少。第一个选项只看了阈值,把「阈值低」当成了「A 类」,忘了分到的电流因位置不同。第三个选项把「调到 B 类不放」读成了「调到什么都不放」,可是紧贴电极的细胞分到的电流大,A 类里只要有离得够近的,照样跨得过阈值。
电极这条路值得认真走一遍,因为它真的好用。神经元靠膜电位工作,一次放电就是膜电位被推过阈值之后自己跳上去的,所以最直接的办法,是用一根细金属丝或细玻璃管把电流送进组织,把附近细胞的膜电位推一把。通电的那一刻细胞就被推,断电的那一刻就不再推,速度和开关都挑不出毛病。
毛病在电流不认得谁是谁。组织里的细胞泡在盐水里(第 0 章),盐水里全是能导电的离子,电流从尖端出来以后向四面八方散开,离尖端越远,每一处分到的越少。一个细胞放不放电,要看它分到的去极化够不够把膜电位从静息推到它自己的阈值。分到多少由它站在哪里决定,阈值由它是什么样的细胞决定,两项混在一起,从放电的结果里分不回类型。
电极的「选」
按位置画圈:圈的大小由电流定,圈里有 A 类也有 B 类,类型进不了算式。
我们要的「选」
按类型挑人:A 类细胞散在一整片区域里,近的远的都该放电,B 类就算贴着电极也不该放。
差别在:一种按位置挑,一种按类型挑,两种挑法依据的东西不同。
电极通电,近处的细胞被去极化 +18 mV,远处的被去极化 +6 mV,细胞静息时都在 −65 mV。A 类阈值 −55 mV,B 类阈值 −50 mV。三个细胞:甲是 A 类、在近处,乙是 A 类、在远处,丙是 B 类、在近处。哪几个放电?放电的里面有没有不该放的,没放的里面有没有该放的?
变式:把电流调大,近处 +30 mV,远处 +12 mV,其余不变,哪几个放电?这样调,B 类被分开了吗?
电极在速度这一格上看起来是满分,通电几乎立刻起作用。可「毫秒级」这一条到底要什么,值得再想一下。它要的是跟得上神经元自己放电的节奏。电极能把电脉冲发得很密,神经元跟得上吗?
有人说,电极通电只需要一瞬间,所以只要每隔 1 ms 送一个足够大的电脉冲,就能让神经元每秒放 1000 次电。这个设想会在神经元自己身上撞到什么?
变式:这个频率上限是电极的缺点吗?把电极换成别的任何刺激办法,上限还在不在?
答辩:如果我是审稿人
把一根极细的玻璃电极贴在一个细胞上,电流只进这一个细胞,不就选得很准了吗?
参考防守(先自己组织语言再看)
在培养皿里这样做完全行得通,博伊登 2011 年回顾里的图 1E 上排,就是在体外的海马神经元里,用约 4 ms 的电流脉冲,以每秒 5 次的节奏,一个接一个地引出 20 次放电。准是准在一个细胞。第 1 章的尺子问的是「只碰一类」,这一类才是单位,它们散在整片组织里,数目不止一个,位置各不相同。一根电极一次只能对付一个,对付不了一整类。
4.2 药物能认细胞,为什么追不上一次放电?
第 1 章说过,药物靠细胞表面的受体认细胞,认得很准。现在有一种药,只作用于 A 类神经元。你想在喊「现在」的那一刻让 A 类放电,在喊「停」的那一刻让它们安静。你把药注射到这片组织里,最先卡住你的是哪一件事?
答完再看
第二个对。第一个选项丢掉了题目里的条件,这种药本来就只认 A 类,选类型这一格它是过的。第三个选项把神经元的频率上限安到了药头上,那是神经元自己的性质,对任何刺激办法都一样。卡住药物的是时间:你喊口令的时刻只决定注射的时刻,药什么时候到、什么时候走,你插不上手。
走药物这条路,要先承认它在选类型上赢了电极。受体是蛋白质,蛋白质由基因决定(第 0 章),只有一类细胞长着对应的受体,药就只在这一类身上起作用。
麻烦出在时间上。药要从注射的地方走到细胞旁边,走法是扩散,也就是靠分子自己乱撞,一点点从浓的地方挪向稀的地方。组织里的路又曲折,细胞挤得紧,药要在细胞之间窄窄的缝里穿行,到了受体旁边还要和它结合,才开始起作用。
撤药同样没有开关。药停在组织里,不会因为你想停就停,要等它被分解,或者被清除出去。起和落,两头都由组织决定。
起:药要走到受体旁边
路上的时间由扩散和组织里的路径定。你喊「现在」时,药还在路上。
落:药要被分解或被清除
等待的时间由组织定。你喊「停」时,药还在受体旁边继续起作用。
差别在:起和落等的都是药自己的搬运,不是你下命令的那一刻,所以和一次放电的时间对不上。
打个比方
把药想成滴进静水里的一滴墨水。滴下去的那一刻不是墨水起作用的那一刻,要等它洇到你关心的那个角落。想让它消失,也不能一挥手,只能等水流把它带走。
类比失效处:墨水只会越洇越淡,组织里的药除了散开,还会被分解、被清除,所以撤药有办法,只是这些办法由组织定快慢,不由你定。你要的是想停就停,药给不了。
一种药只作用于 A 类神经元。起作用之前,药要走哪一段路?撤药的时候,又要等什么?这两件事为什么都不由实验者决定?
变式:把药换成从一根紧贴细胞的细管口喷出来,起的那一段为什么能缩短?这样做又丢掉了什么?
答辩:如果我是审稿人
把药装进一根细管,管口贴着细胞喷,路几乎没有了,药物不就快了吗?
参考防守(先自己组织语言再看)
起的那一段确实缩短了,药不用再走远路。落的那一段仍然要等药被分解或被冲走,快慢由药自己的走法定,不由你定。更要紧的是范围:管口只照顾得了管口旁边的细胞,一类散在整片组织里的细胞,要一个个贴过去,又回到电极的老问题。在药物这里,快和广很难兼得。
4.3 基因选细胞,光来触发,2002 年的第一版为什么还是慢?
2002 年,一个实验室把三个果蝇的基因一起交给一群混合的神经元,它们是视紫红质(吸光的那个)、G 蛋白的一个亚基和 arrestin-2(后两个都是传话链上的蛋白质,名字不必记,要记的是链上有好几个蛋白质,一个接一个传话),合起来是果蝇眼睛里感光传话链的一段。结果只有带着这三个基因的神经元在光下放电,邻居不动。可这些细胞对光的反应,开要好几秒,关也要好几秒。拿三把尺子给它打分(只碰一类、毫秒级、能开也能关,最后一把问的是撤掉光以后能不能说停就停),它过了几把?
答完再看
第二个对。邻居不放电,说明选类型过了。「毫秒级」问起效有多快,开要好几秒,没过。「能开也能关」问撤掉光以后能不能说停就停,关也要好几秒,等于没有停下来,也没过。第一个选项把没过的两格当成了全盘皆输,选类型这一把它是过的,而且这一步是新的:2002 年的摘要特别指出,以前那些泡在整片组织里的光刺激剂,或被锁住的神经递质,光照到的地方所有细胞都起作用,这套基因办法把光响应限制在了带基因的细胞里。第三个选项只看见「关得掉」,没看见「要几秒」。
这个结果值得停一下。电极缺一把尺子,药物缺一把尺子,这一条路把选类型补上了,补的办法是第 1 章已经推出来的:让基因决定谁对光有反应。2002 年的实验是在一群混着的神经元里照光,只有被交了基因的那几个放电,「基因选细胞,光来触发」这个架子就这样用实验立住了。
架子立住了,速度却不对。博伊登 2011 年的回顾里写,这套系统引出的光电流开和关都要好几秒,他猜原因在多个蛋白质组成的传话链上。黑格曼和纳格尔 2013 年回看这一批更早的系统,评价是要么太复杂,要么电反应太慢。
好几秒对毫秒,差了一千倍。再看零件,三个基因要同时交给同一个细胞,每多一个,就多一份要准备的东西,多一个出岔子的地方。速度和零件,两件事出在同一个设计上:光要经过一串站,才碰得到细胞的电。
过了的一格
只碰一类:基因决定谁对光有反应,邻居不动。
没过的三格
毫秒级:开要好几秒。能开也能关:关也要好几秒。零件:三个果蝇基因,同时交给同一个细胞。
差别在:过的一格靠「基因选细胞」,没过的三格都出在「传话链太长」。
自己推一遍:把一条传话链压到毫秒,该动哪里
设 2002 年那套系统的开关要 3 s,光到细胞的电之间有 3 站,每站用时差不多。每站要多久?(3 s 和 3 站是这里假设的数,只用来推理。)
想好了再看
三站是先后发生的,总时间是各站相加,所以每站约 1 s。
要把总时间压到 3 ms,链仍然是 3 站,每站要快多少倍?
想好了再看
3 s 是 3000 ms,要变成 3 ms,总共快 1000 倍,每站就要从 1 s 变成 1 ms,每一站都快 1000 倍。分子之间一站一站传话,要每一站都快一千倍,这不是调一调就能得到的。
改成只拿掉两站,剩下一站仍是 1 s,总时间是多少?光靠减站,能不能到毫秒?
想好了再看
总时间是 1 s,只缩成了三分之一,仍然是秒。减站有用,可要到毫秒,剩下的那一站也得快到毫秒才行。
有没有办法让最后这一站也不用传话?要满足什么条件,站数才能是零?
想好了再看
吸光的部分和让离子通过的孔,要在同一个蛋白质里。吸光以后孔直接打开,中间没有站,总时间就只剩吸光后蛋白质自己变形的那一小段。自然界有没有这样的蛋白质?第 5 章去找。
把下面四句话各归到「只碰一类、毫秒级、能开也能关、零件少」里的一格。甲:光一照,只有带基因的细胞放电,邻居不动。乙:光一亮,要等好几秒细胞才有反应。丙:光一撤,细胞还要好几秒才恢复。丁:要同时交给细胞三个基因。
变式:「药撤走了,可它还留在组织里继续起作用」这句话,该归在哪一格?说出你的依据。
答辩:如果我是审稿人
博伊登自己写的是「可能是因为」多个蛋白质组成的传话链,你凭什么断定慢是因为站多?
参考防守(先自己组织语言再看)
断定不了,这是一个推断。2002 年的系统慢,后来用单个蛋白质做的光开关快,两者都有实验支持,但它们是不同的蛋白质、不同的细胞,没有一个只改站数、别的不动的对照实验。能说的是,站数和等待时间的关系是合理的,而且和后面章节里的结果相符,它是一条解释,不是一个被单独证明的结论。
4.4 把开关换成一个被锁住的小分子,光来解锁,能不能又快又选得准?
还有一条路:不让神经元去做一整条传话链,只交给它一个通道基因。这个通道平时由一种小分子打开,比如辣椒素能打开一种叫 TRPV1 的通道。再把这个小分子先「锁」进一个对光敏感的化学笼子,笼子里的它碰不到通道,光一照笼子裂开,它被放出来,去开通道。2003 年同一个实验室做了这件事。这条路比 ChARGe 少了哪一样麻烦,又多了哪一样?
答完再看
第一个对。通道基因只要一个,传话链整条省掉了,可被锁住的小分子要事先送到细胞旁边,它是细胞里原来没有的东西。第二个选项忘了这一点,光只管把笼子打开,不管小分子从哪里来。第三个选项倒过来了,笼锁这条路的基因比 ChARGe 少。
这条路有一个现成的起点。博伊登回忆说,用紫外激光脉冲光解笼锁神经递质来激活神经元,当时已经是又快又准的强力办法,只是还没有按神经元类型选的版本。2003 年这一篇给的正是按类型选的版本,同时把 ChARGe 那条长长的传话链整个拿掉了。神经元只要交一个通道基因,通道本来就能被一种小分子打开,辣椒素开 TRPV1,薄荷醇开 TRPM8,ATP(细胞里供能的分子,P2X₂ 这种通道认得它)开 P2X₂。
笼锁化合物(caged compound):把一个有活性的小分子用对光敏感的化学基团暂时盖住,盖着时它不起作用,光照之后盖子脱落,小分子被放出来。
Zemelman 等人 2003 年的摘要报告了结果:把这几种受体装进海马神经元,细胞对能打开受体的小分子有一串规整的反应,先去极化(膜电位变得不那么负),再放电,再复极化(放完电回落到负值),只有受体和它对应的小分子配成对才有反应。反应起得快、停得快,也不衰减,放电的频率最高约 40 Hz。TRPV1 和 P2X₂ 这两种,小分子既可以直接给,也可以用光,从笼锁的前体里放出来。
传话链(2002 年)
光到细胞的电,隔着好几站。零件都在细胞里:三个果蝇基因。开和关各要好几秒。
笼锁加受体(2003 年)
光到小分子,小分子到通道,两步。一个受体基因,加一份笼锁化合物。摘要说起落都快。
差别在:一个把零件全放在细胞里,要三份基因,另一个把一部分零件放到了细胞外,成了要另外备的化合物。
在「笼锁加受体」这条路里,光负责哪一步?哪些东西光管不着,必须事先就位?如果闪光的时候,被锁住的小分子还没走到细胞旁边,会发生什么?
变式:这条路里,「药物到达要等扩散」这件事消失了吗,还是被挪到了别处?
答辩:如果我是审稿人
笼锁的小分子放出来以后,照亮的整片组织里都有,邻居细胞不也会被它作用吗?选类型是不是落空了?
参考防守(先自己组织语言再看)
摘要里写的是,只有受体和它对应的小分子配成对才有反应。邻居细胞没有这个受体,小分子漫天都是也不起作用。选类型靠的是邻居身上没有同样的受体,所以选的受体越是邻居身上没有的,这一格越干净。这也是这条路要求受体基因必须交到对的细胞里的原因。
4.5 手里有四条路,怎么给它们打分?
走了四条路,每一条都在某一格上掉下来。第 1 章给过三把尺子:只碰一类细胞、毫秒级、能开也能关。走到 ChARGe 和笼锁这里,又碰到了第四条:零件越少越好。零件指要交给细胞的东西,和要另外送进组织的东西,基因算一个,化合物算一个。
这一条为什么也算尺子,博伊登的回忆里有一个现成的例子。2000 年春天,他和当时还是研究生的戴塞洛斯在深夜里讨论怎么控制特定神经元,他们想到的办法之一是磁珠:把对拉伸敏感的通道送进特定神经元,再把磁珠系在通道上,加一个磁场,珠子一动就拉开通道。他当时算过,觉得可能行得通。可办法一摊开,要两样分子试剂,通道的基因,加上要灌进脑里去和通道结合的磁珠,磁珠可能还得反复灌,另外还要一台能产生很强磁场梯度的发生器。
电极:我这样打分
先问选类型:电流按位置画圈,不过。再问毫秒级:通电即起作用,过。能开也能关:断电即停,过。最后数零件:一根电极,不用基因,最少。除了一格,其余都满,空的偏偏是研究者最想要的那一格。
ChARGe:同一套问法
选类型:基因决定谁对光有反应,过。毫秒级:开要好几秒,不过。能开也能关:关也要好几秒,不过。零件:三个果蝇基因,多。
差别在:问的顺序和问法不变,每一格的答案由这个办法自己的设计决定,和它出现得早晚、名气大小无关。
评分表:把候选的办法排成行,把选类型、毫秒级、能开也能关、零件少排成列,每个格子填过或不过,再注明这一格的依据。填不出依据的格子,宁可空着。第三列问的是撤掉以后能不能说停就停。
| 办法 | 只碰一类细胞 | 毫秒级 | 能开也能关(说停就停) | 零件 | 出处 |
|---|---|---|---|---|---|
| 电极 | 不过:电流按位置散开 | 过:通电即起作用 | 过:断电即停 | 一根电极,不用基因 | Aravanis 等 2007 摘要;速度与停止是电学道理 |
| 药物 | 过:靠细胞自带的受体 | 不过:要等药走到、等药清走 | 不过:撤药要等清除 | 一种药,细胞要带对应的受体 | 定性道理(4.2) |
| ChARGe(2002) | 过:基因决定谁对光有反应 | 不过:开和关各要好几秒 | 不过:关也要好几秒 | 三个果蝇基因 | Zemelman 等 2002 摘要;博伊登 2011 |
| 笼锁加受体(2003) | 过:基因决定谁带受体 | 摘要说起落都快,放电最高约 40 Hz | 摘要说起落都快 | 一个受体基因,加一份笼锁化合物 | Zemelman 等 2003 摘要 |
| 要找的东西 | 要 | 要 | 要 | 越少越好 | 第 6 章回来填 |
有人说,只要选类型和速度两把尺子过了,零件有几个无所谓。请用本章里的一个具体办法,说明零件的个数会决定它能不能用起来。
变式:如果有人把磁珠做成灌一次就够用,这个办法在哪一格上改善了,哪一格上还是缺?
你要在一块混着 A、B 两类神经元的组织里,用 20 Hz 的节奏、每个脉冲 5 ms,只驱动 A 类。对电极、ChARGe、笼锁加受体三条路,各写出它最先掉在哪一格;再说,如果只许选一条继续改进,你选哪条,依据是哪一格里的哪个事实。
变式:把节奏改成 100 Hz,笼锁加受体还能满足吗?哪一格的哪个事实会先出问题?
对你而言未知笼锁那一行里的 40 Hz,是神经元自己的上限,还是这套办法的上限?
2003 年的摘要只说放电频率最高约 40 Hz,没有交代这个封顶是哪来的。神经元自己有一个频率上限(第 3 章),如果同样的细胞用电流直接推也只能放这么快,封顶的就是神经元,不是笼锁这条路;如果电流能推得更快,就是这条路的限制。答案在原文的图里,不在这一章里。
先做这一步:到 Europe PMC(europepmc.org)搜 Zemelman 2003 PNAS「Photochemical gating of heterologous ion channels」,找出放电频率随浓度变化的那幅图。再回到第 3 章的霍奇金–赫胥黎神经元实验室,把注入电流调到最大,数一数一段时间里放电的个数,换算成频率,和 40 Hz 比。要留意,那个实验室里的神经元是 6.3 °C 的枪乌贼模型,和 2003 年用的哺乳动物海马神经元差得远,这样比只能当个参照,不能当结论。
给实验台加一个电极,当对照组
为什么现在才加:前面几级造的都是一个细胞的事,没有第二类细胞,电极的毛病没有地方显现。台上放两类阈值不同的细胞,每类各有一个近处的和一个远处的,电极和「光加基因」就各有各的分法。
难点:算术只有一步加法,要看清的是两次「选」的依据不一样。电极那一行,push 由位置决定,类型根本进不了函数,参数里连它的位置都没有。光加基因那一行,类型通过 target 进来,位置却被抹平了,因为这一级先假设光处处一样亮,第 11 章让光随深度变暗,位置才会重新进来。两个阈值和 +20、+8 mV 都是这一级自己设的数,不是测量值。还要定下一件事:恰好等于阈值算不算放电,这里约定算。
自己验:输入电极(+20, +8),应该得到 [A近, B近],B 类被多碰了,A远被漏掉了。输入光加基因(target = A, push = +20),应该得到 [A近, A远];把 target 改成 B,应该得到 [B近, B远]。再试电极(+10, +10),A 类刚好 −55 等于阈值,应该得到 [A近, A远],B 类放不了,可这只在近处和远处分到的电一样多时才成立。四个都对上,这一级就成了。
读的时候要小心:这一章里哪些数是回顾,哪些是定性的话
ChARGe 的开关「好几秒」,来自博伊登 2011 年的回顾,是当事人对一篇别人论文的描述,2002 年的摘要里没有给出这个数。笼锁那一行里的「起落都快」,也只是 2003 年摘要里的一句定性话,没有毫秒数,所以本章没有拿它和后面的光开关比速度。药物那一行是定性的道理,没有对应的论文数据。表 4-1 的最后一行是空的,是故意的。
留给你的问题
把第 1 章那次唤醒小鼠的实验里,用来光照的开关换成 2002 年那样、开和关各要好几秒的 ChARGe。「5 到 30 Hz 的光脉冲有效、1 Hz 无效」这个结论,还能得到吗?
不看材料,写下这一章的三堵墙
第一堵:电极又快又能停,可电流按位置散开,放电圈里什么类型的细胞都有,圈外同类型的细胞还会被漏掉。第二堵:药物按受体选类型,可起要等扩散,落要等清除,对不上毫秒。第三堵:2002 年的办法选对了类型,可要三个基因,开和关各要好几秒;换成被锁住的小分子,又多出一份要另外准备的化合物。
第5章 一个绿藻怎么看见光
光一亮电就来,中间没有时间留给一串传话
开篇故事第 5 集 · 一杯绿水自己朝灯游过去一束蓝光的十八天
湖边石桌上的终端亮了一下,淡蓝色的判定字比水面的反光还要刺眼。
系统提示光台复现 1984 年的盲突变衣藻:补入三种视黄醛类似物以后,趋光全部恢复,最敏感的颜色分别挪到了三个不同的位置。
系统提示许一舟预测最敏感的颜色不会挪动,感光的是叶绿素,判定为错,按赌约,他要连洗两个晚上的暗室。
半个小时之前,他们还蹲在湖边的石阶上。十月的早晨,湖面浮着一层细细的白气,石阶湿得发滑,空气里有一股水草和淤泥混在一起的甜腥味。岑老师给每人发了一只杯子,蓝光过敏的鞋陷进岸边的淤泥里,拔出来的时候“啵”地响了一声,许一舟把杯子浸下去,水凉得指节发麻,舀上来的是淡淡的绿色,像兑得很稀的绿墨水。
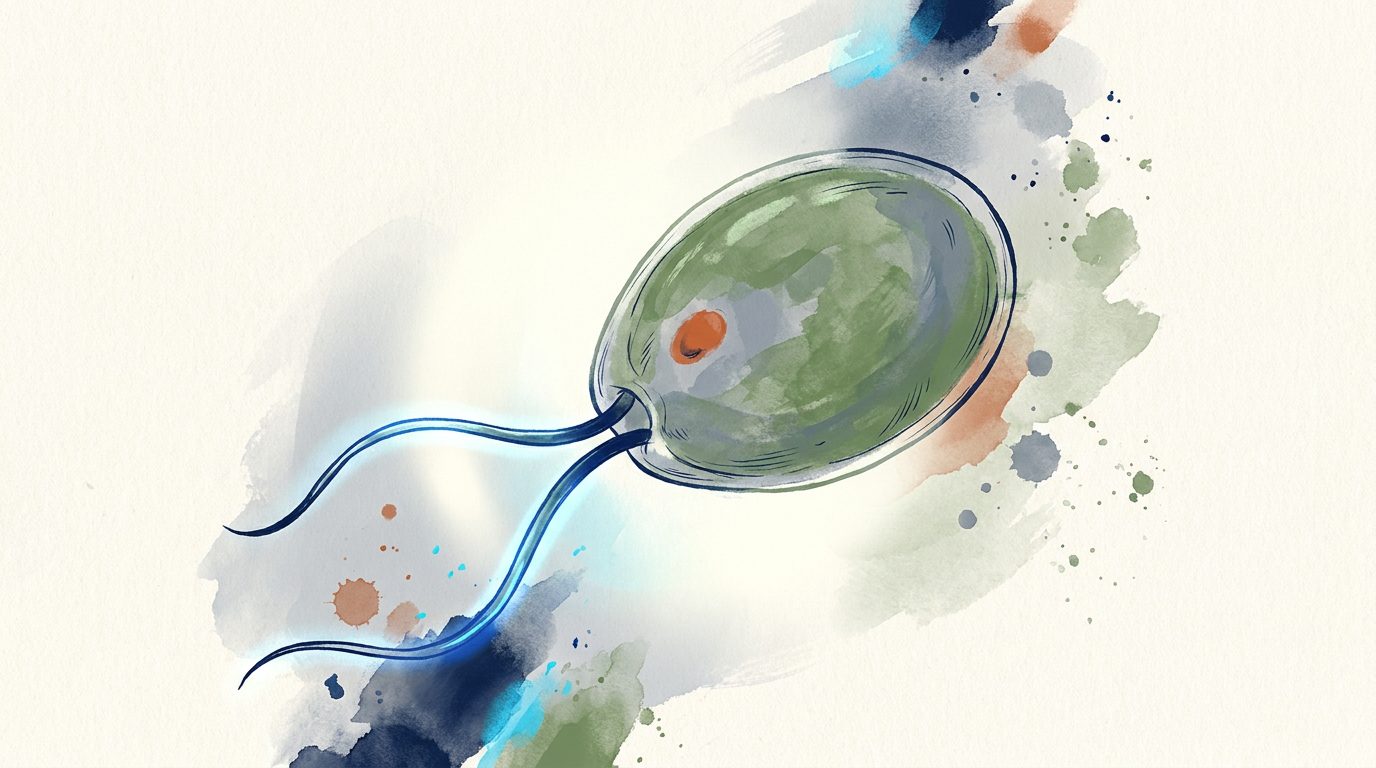
回到石桌上,岑老师把一杯水放在折叠显微镜旁边,又从包里拿出一盏充电的小夹灯,让灯光从杯子的侧面照过去。过了一会儿,杯子靠灯的那一侧慢慢变得更绿,对面却淡了下去。许一舟把眼睛凑到目镜上,冰凉的镜圈贴着眉骨,视野里一粒一粒绿色的小东西正在游,每一粒里面都有一个橙色的小点。“这是衣藻,只有一个细胞,没有神经,也没有眼睛,那个橙色的小点叫眼点,”岑老师说,“灯一开,它就朝灯的方向游。”
蓝光过敏直起腰:“没有眼睛,它怎么知道灯在哪一边?”许一舟盯着杯子里那团翠绿,几乎没有想:“这么绿,细胞里装满了叶绿素,叶绿素最会吸光,光子被谁吸走了,谁就是接收器,别的分子的量根本没法比,这笔账一眼就看得出来。我拿两晚暗室值日来赌,感光的是叶绿素。”衣藻本藻把一直抱着的论文放到石桌上,说:“我接。”
岑老师在杯沿上轻轻敲了一下:“1984 年有人手里有一株不会趋光的盲藻,他们给它补了三种结构略有不同的视黄醛类似物,视黄醛是维生素 A 一类的小分子,补完以后趋光都回来了。你们猜,最敏感的颜色会不会跟着类似物挪?”许一舟答得很快:“不会,类似物只是让细胞恢复了健康,叶绿素没变,颜色就留在原处。”
终端上的判定还亮着,许一舟把那一行读了第二遍,字还是那几个字。岑老师没有看他,看的是那杯慢慢聚到灯边的绿水:“换一块零件,颜色跟着变,这块零件就在吸光的那台机器里。叶绿素里没有视黄醛,你补什么,它的颜色都不会动。”
“那台机器是什么?”蓝光过敏问。“一种蛋白质,里面嵌着视黄醛,视黄醛吸光,蛋白质跟着变形,叫视紫红质,你们的眼睛里也有一种。”岑老师顿了一下,“1996 年有人在眼点上直接测过,光一亮,不到 50 微秒就有电流,一串分子来不及传话,所以接收器离通道一定很近。再后来,有人从衣藻里找出了它的基因,它疏水的核心部分,和一个光驱动的质子泵同源。”
那天晚上,营地论坛里先吵起来的是叶绿素。
求问:绿色的藻满是叶绿素,为什么看光的不是它
1L蓝光过敏我还是觉得叶绿素就是感光的,它那么绿,满细胞都是,光开大一点,它肯定就认得出灯在哪一边。
2L衣藻本藻不对,福斯特 1984 年的摘要写得很清楚,补入类似物以后,最敏感的颜色按所补类似物的性质移动,叶绿素里没有视黄醛。
3L电极老炮对照组呢?万一补视黄醛只是让整个细胞恢复了健康,趋光回来了,和感光根本没有关系,这一步你们是怎么排除的?
4L许一舟3L 的担心有道理,可细胞恢复健康,不会让最敏感的颜色按类似物的化学性质挪位置,所以我输得服气,暗室我去洗。
5L岑(带教认证)3L 问到了点子上,4L 也答对了。洗暗室从今晚开始,明天一早暗室里的光子计数器,是用来数那个像泵的东西到底是不是泵的。
洗暗室的第一个晚上,许一舟拎着水桶推开门,排风扇嗡嗡地转着,墙边那台新装的光子计数器还黑着屏幕,记事板上钉着岑老师留下的一张便签,只有一行字:明天一早,数一数这个骨架像泵的东西,它到底是泵,还是通道。
系统结算 · 本章考点
- 1984 年福斯特等给不会趋光的盲突变衣藻补三种视黄醛类似物,趋光恢复,最敏感的颜色分别挪到三个不同的位置,感光的是视紫红质,不是叶绿素
- 视紫红质是嵌着一个视黄醛分子的蛋白质,视黄醛吸光,蛋白质随之变形;叶绿素里没有视黄醛
- 1991 年黑格曼等发现起作用的是全反式视黄醛,顺式的要多等至少 50 倍的时间,衣藻的视紫红质在视黄醛这一块上更像细菌视紫红质
- 1996 年霍兰德等在眼点上测到光电流的延迟小于 50 微秒,即 1/20000 秒;传话的站越多延迟越长,5 站总共不到 50 微秒,每站最多 10 微秒
- 衣藻的光感受器量少、不稳、不纯,提纯不出来,改从基因序列库里找;2002 年 Nagel 等的摘要说,找到的蛋白质疏水的核心部分和光驱动的质子泵细菌视紫红质同源
窗台上的向日葵会慢慢朝窗外弯,那是一天里一点一点长出来的差别。衣藻是一个只有一个细胞的绿藻,没有神经,也没有眼睛,只有细胞里一个橙色的小斑点,叫眼点。把它放进一杯水里,侧面开一盏灯,光不太强时,它会掉过头,朝灯的方向游。这里没有什么可以慢慢长的东西,靠的是细胞自己看见光,然后改变游动。它是怎么看见的?这个问题后来成了一个开关的来历:神经元不会看见光,要给它装一个接收器,先得知道衣藻的接收器是什么、怎么工作。这一章沿着 1984 年到 2003 年的几次追问往前走,一路上有三堵墙,每一堵都要靠一个实验去推。
学完这一章你应该能做到
- 说出福斯特 1984 年的实验里什么变了、什么没变,为什么它推翻了「感光的是叶绿素」
- 用「站越多,延迟越长」解释,小于 50 微秒的光电流延迟为什么指向感光分子和通道紧挨着
- 把 50 微秒放到毫秒的尺子上,说出它是一毫秒的几分之一
- 说清只靠速度分不开「紧耦合」和「同一个分子」,以及要用什么办法把它们分开
- 给光开关加上延迟参数,比较「光直接开通道」和「光先经过几站」两种接线
这一章给实验台的光开关加一个延迟参数。前面的光一亮就起作用,光和电之间没有时间。现在要把这段时间写成一个能改的数,并比较两种接线:光直接开通道,和光先经过几站再开通道。伪代码和判据在章末的第 5 级台阶里。
5.1 绿色的藻,感光的不就是叶绿素吗?
衣藻是绿色的,细胞里装满叶绿素,叶绿素当然会吸光,所以最顺手的想法是它靠叶绿素感光。1984 年,福斯特(Kenneth Foster)等人手里有一株不会趋光的盲突变衣藻。他们知道,动物眼睛里的感光蛋白质靠视黄醛(维生素 A 一类的小分子)吸光,换一种结构略有不同的视黄醛类似物,吸收的颜色就会跟着挪动。他们把几种类似物补给盲株。你预测会看到什么?
答完再看
第二个对。1984 年的摘要写的就是这个结果:补入类似物后,正常的光行为恢复,最敏感的颜色按所补类似物的性质移动。第一个选项只对了一半,趋光是恢复了,可颜色会跟着类似物挪,叶绿素里没有视黄醛,换视黄醛挪不动它。第三个选项和结果相反。
福斯特的实验在逻辑上很干净。它把视黄醛当成一块可以换的零件:零件一换,最敏感的颜色跟着挪,说明这块零件就在感光的那台机器里。这类盲株缺的是自己合成视黄醛的本事(Govorunova 等 2001 年摘要的说法),补上去,机器就能工作。
机器有了功能的描述,才可以贴名字。一种蛋白质,里面嵌着一个视黄醛分子,视黄醛吸光,蛋白质随之变形,这样的组合叫视紫红质。动物眼睛里让我们看见东西的,是一种视紫红质,福斯特 1984 年的论文说,衣藻也在用视紫红质,这是第一次在藻类这样的单细胞真核生物里证明它。
视紫红质(rhodopsin):一类蛋白质,里面嵌着一个视黄醛分子,视黄醛吸光,蛋白质随之变形。
福斯特把三种不同的视黄醛类似物分别补给盲株,趋光都恢复了,最敏感的颜色分别挪到了三个不同的位置。如果感光的是叶绿素,这个结果应该是什么样?它为什么指向视紫红质?
变式:如果补了类似物以后趋光恢复了,可最敏感的颜色一点没挪,这个结果还能同样有力地说明是视紫红质吗?
名字贴上去以后还有一处细节。视黄醛是一条碳链,链上双键两侧的原子可以在同一边,叫顺式,也可以在相对的两边,叫反式。「11-顺式」是说从环那一头数起第 11 位的双键是顺式,「全反式」是所有双键都是反式。福斯特当时推测,衣藻的视黄醛是 11-顺式,和动物眼睛里的一样。1991 年,黑格曼和同事用同样补视黄醛的办法反复试,发现起作用的是全反式,顺式的要多等至少 50 倍的时间才起作用。他们还试了两种改动过的类似物,都恢复不了功能,据此推测激活的时候发生的是反式到 13-顺式的变化,结论是衣藻的视紫红质,在视黄醛这一块上更像细菌视紫红质,不像高等动物视觉里的那一种。细菌视紫红质是 1971 年报告的蛋白质,1973 年有人提出它靠光把质子泵出细胞,第 6 章会回到它。
人眼里的视紫红质
视黄醛平时是 11-顺式,吸光后变成全反式。吸光以后,要经过一串分子一站一站传话(G 蛋白这一类),最后才改变通道的开合。
衣藻的视紫红质
起作用的是全反式视黄醛,激活时发生的是反式到 13-顺式的变化,在视黄醛这一块上更像细菌视紫红质。传话是不是也一站一站,下一节才看。
差别在:两种视紫红质,嵌着的视黄醛不一样,变化的方向也相反,名字相同,接线不一定相同。
答辩:如果我是审稿人
补了视黄醛,盲株就恢复趋光,会不会只是视黄醛让细胞整体恢复了健康,和感光没关系?
参考防守(先自己组织语言再看)
靠「最敏感的颜色跟着类似物移动」这一条分开。细胞整体恢复健康,不会让最敏感的颜色按所补类似物的化学性质挪位置,只有视黄醛本身就在吸光的那台机器里,才会这样。1991 年的实验又看到,全反式视黄醛一分钟内就能让盲株恢复光反应,顺式要多等至少 50 倍的时间,说明这台机器上装视黄醛的位置,对视黄醛的形状挑得很严。
5.2 在衣藻身上测到的光电流是什么,从哪里来?
一个衣藻比针尖小得多,要测它的电,得用一根管口很细的玻璃管把细胞吸住,从管子里把细胞膜上的电流引出来。这个办法早就有人用了:西涅什切科夫(Oleg Sineshchekov)用它记录过另一种藻(雨生红球藻 Haematococcus pluvialis)对光的电反应。1991 年,黑格曼的学生哈尔茨(Hartmann Harz)把它用到了一株没有细胞壁的衣藻突变株上(黑格曼与纳格尔 2013 年的回顾)。
哈尔茨和黑格曼 1991 年报告:光一照,细胞上出现两股受光控制的内向电流,一股在眼点(细胞里那个橙色的感光斑点),一股在鞭毛区(鞭毛是细胞前端两根划水的细丝)。不同颜色的光引起电流的大小,画成曲线叫作用光谱,这两股电流的作用光谱和视紫红质的对得上。两股电流都依赖 Ca²⁺,也会被 verapamil 和 pimozide 这两种常用来阻断钙通道的药物压住,所以研究者推测它们由 Ca²⁺ 携带。内向电流是正电荷进入细胞(第 0 章),所以光一照,细胞里的电压往正的方向走,也就是去极化。
眼点处光一亮,出现一股内向电流,由 Ca²⁺ 携带。正电荷进了细胞,还是出了细胞?细胞里的电压会升高还是降低?
变式:如果这股电流是外向的,细胞里的电压会往哪个方向走?
光电流(photocurrent):光照引起的、穿过细胞膜的电流。衣藻眼点处的那一股,叫光感受器电流(P 电流)。
1996 年霍兰德等人的摘要把这条链接起来了:强光下,眼点处的光感受器电流先触发鞭毛上一股快的和一股慢的电流,最后细胞向后游,这叫停止反应。链有好几段,本章只盯着第一段,光怎么变成眼点处的这股电流。
5.3 光电流的延迟小于 50 微秒,能推出什么?
人眼里的视紫红质吸光之后,不会直接去开一个通道。它推动一个分子,那个再推动下一个,经过一串传话,最后才改变一个通道的开合,每一站都要时间。如果衣藻的视紫红质也这样,眼点处的光电流在光亮之后,应该隔一段不短的时间才出现。1996 年,霍兰德(Holland)等人直接在眼点上测,光电流在光亮之后不到 50 微秒就出现了,50 微秒是 1/20000 秒。你会从这个延迟推出什么?
答完再看
第二个对。第一个选项不是不可能,却要每一站都快得几乎不可思议:假设链上有 5 站,总共不到 50 微秒,每站最多 10 微秒,站数再多,每站还要更快。一个站数少的解释,比一个站数多又要求每站飞快的解释省事得多。第三个选项被别的结果挡住了:这股电流的作用光谱和视紫红质对得上(1991 年),它依赖 Ca²⁺,也被 verapamil 和 pimozide 这两种药压住,杂波不会有这样的规律。
先把 50 微秒放到尺子上看。一毫秒是 1000 微秒,50 微秒就是一毫秒的二十分之一,也就是 1/20000 秒。
眼睛里的传话为什么慢?一个分子要碰到下一个分子,才能推动它,碰上要时间,推完还要等下一个准备好,每一站都这样,站数一多,时间就一站站地加上去。眼点上的总延迟不到 50 微秒,站数只能很少,每一站还得更快。站数最少是零:感光的蛋白质吸光以后,自己就是那个孔,或者紧紧贴着那个孔(这叫紧耦合),推一下就开。
接线一:光、视紫红质、几站、通道
总延迟是各站延迟之和。每站要 1 ms(这里假设的数),3 站就是 3 ms,至少是 50 微秒的 60 倍。
接线二:光、通道(紧耦合或同一个分子)
中间没有传话的站,延迟只剩吸光后蛋白质自己动作的那一小段,可以小于 50 微秒。
差别在:延迟随站数一站站相加,一条小于 50 微秒的延迟,把站数压到了接近零。
假设眼点上光到电流之间有一条传话链,共 5 站,每站用时一样。已知总延迟小于 50 微秒,每一站最多只能用多久?如果实际每站是 1 ms(这里假设的数),总延迟是 50 微秒的多少倍?
变式:站数减到 2 站,每一站最多能用多久?
到 1990 年代后期,黑格曼的组越来越相信,衣藻里感光的接收器和通道是同一个分子,那股电流是蛋白质自己的孔放出来的。可是 1996 年摘要里作者自己写的是,视紫红质和通道紧密耦合,或者构成同一个通道复合体。这两种说法,只看速度分不开。
衣藻眼点处的光电流在光亮之后不到 50 微秒就出现了。有人据此说:把这样的光开关装进一个神经元,光一亮,不到 50 微秒神经元就会放电。请指出这句话漏掉了神经元自己的哪一步。
变式:如果光电流更大,从光亮到放电的时间会变短还是变长?为什么?
答辩:如果我是审稿人
一个小于 50 微秒的电信号,凭什么说是离子流过了一个通道,而不是视紫红质自己分子里的电荷挪了位置?后者也可以很快,也不需要任何传话。
参考防守(先自己组织语言再看)
这是一个真问题,摘要里有两条证据挡它。其一,这股电流能被不同的离子携带:除了 Ca²⁺,Sr²⁺ 和 Ba²⁺ 也行,Mg²⁺ 导通得差,高浓度时还会堵住通道,一价的 K⁺、NH₄⁺、Na⁺ 在驱动力够大时也能携带,顺序是 K⁺ 最大。分子内部电荷的挪动和溶液里放的是什么离子无关,电流却随离子变,说明有离子在流。其二,1996 年的第二篇摘要说,双闪光实验排除了视紫红质内部电荷移动对光感受器电流信号的贡献。至于「紧耦合还是同一个分子」,速度分不开,下面换一种实验。
自己推一遍:把「同一个分子」变成一个会失败的实验
如果感光的蛋白质和通道真是同一个分子,把这个蛋白质单独放进一个本来对光没有反应的细胞里,光一照,应该看到什么?
想好了再看
光控的电流。孔就在这个蛋白质里,不需要别的分子来帮忙。
如果它们只是两个紧挨着的不同分子,同样的实验会看到什么?
想好了再看
没有电流,除非连通道的基因也一起放进去。感光的蛋白质吸了光,旁边没有通道可推。两种说法对同一个实验的预言相反,所以这个实验能把它们分开。
这个本来对光没有反应的细胞,要满足什么条件,结果才说明问题?
想好了再看
它自己不能带感光的蛋白质,也不能带衣藻那一套传话的东西,否则测到电流,分不清是谁的功劳。它最好还大一点,方便把电极扎进去测电。
做这个实验,手里先要有什么?
想好了再看
这个蛋白质的基因。衣藻里的光感受器量少又不稳定,直接提纯有多难,下一节看。
5.4 想把那个分子单独拿出来看,直接提纯行不行?
假设你就是 1990 年代的黑格曼组,手里有一个越来越有道理的猜测:感光的蛋白质和通道是同一个分子。猜测要变成事实,得把这个分子单独拿出来,放在一个别的东西都没有的环境里,看光一照它自己会不会让离子流过。我先问自己,这一步怎么做。
第一个办法是提纯:从衣藻里把这种蛋白质分离出来,放进人造的膜里测电。人造膜是用脂质铺成的一层薄膜,当细胞膜的替身,里面只放你想测的那一种蛋白质。这条路有先例。细菌视紫红质 1970 年代就是这样研究的。它来自一种生活在很咸的环境里的微生物,细胞膜上有一块紫色的区域,叫紫膜,里面只有这一种蛋白质(Oesterhelt 与 Stoeckenius 1973 年的摘要)。它量多,又出奇地稳定,1970 年代中期已经有人在人造膜里测它的泵电流(黑格曼与纳格尔 2013 年的回顾)。
细菌视紫红质
紫膜里只有这一种蛋白质,量多,室温下很稳定。提纯顺利,1970 年代中期就能在人造膜里测它。
衣藻的光感受器
量少,不稳定,同一类里还有好几种互相混着。黑格曼组做了很多年,没能把它们提纯出来(黑格曼与纳格尔 2013 年的回顾)。
差别在:提纯行不行,先看目标蛋白质多不多、稳不稳、纯不纯,细菌那个三样齐全,衣藻这个三样都缺。
提纯走不通,选项就剩下第二个:先不管蛋白质,去找它的基因。基因是写在 DNA 上的一段序列(第 0 章),只要找到,就可以交给别的细胞,让那个细胞照着配方做出这个蛋白质,不管衣藻里它有多少、多不稳。放进别的细胞还有一个附带的好处:别的细胞里没有衣藻那一整套东西,光一照有没有电流,就只能是这个蛋白质的功劳。第 1 章里把这个办法叫异源表达。
把一个蛋白质的基因交给别的细胞去表达,光一照,别的细胞里有了光控电流。这个结果为什么比直接在衣藻细胞上测到光控电流更能说明问题?
变式:如果换用的细胞自己就带着一种感光的蛋白质,这个实验的结论会受到什么影响?
转向的条件正好在那几年出现了:衣藻的基因序列库建起来了。库里存的是 cDNA,即把细胞里正在用的基因抄成的 DNA 片段,按序列存着,可以查。黑格曼回忆,2001 年他组里的卡特里亚(Suneel Kateriya)在衣藻的一个 cDNA 库里找到了大型微生物型视紫红质的序列(当事人回顾)。大型,指这类蛋白质的链很长,七根跨膜螺旋之后还接着一大段(Sineshchekov 等 2002 年的摘要里,这一段约 400 个氨基酸)。另外两个组同时期也各自找到,Boyden 等人 2005 年论文的引言数作三个独立的组。西涅什切科夫等人 2002 年压低基因表达,证明从 cDNA 里认出的两种视紫红质是趋光的受体,名字是衣藻感觉视紫红质 A 和 B(CSRA、CSRB)。铃木(Suzuki)等人 2003 年依据日本一个 DNA 研究所的序列库,确认了两种古菌型视紫红质,其中一种在眼点附近。古菌是和细菌并列的另一类单细胞生物,古菌型指结合视黄醛的口袋和古菌的视紫红质同源。
你要检验「感光的蛋白质和通道是同一个分子」,1990 年代末手里只有衣藻细胞和一个越来越有道理的猜测。请写出:这个猜测预言了哪个可以失败的实验结果;结果相反时,哪种别的说法会成立;做这个实验为什么先要找到基因,不能直接提纯。
变式:干净的细胞里放进了基因,光一照没有电流,是不是就推翻了「同一个分子」?还要先排除哪些情形?
5.5 这几步,按年份怎么排?
把本章的几步按年份摆在一起。先是衣藻怎么感光,四步。
| 年份 | 谁 | 做了什么 | 推倒的墙 |
|---|---|---|---|
| 1984 | 福斯特等 | 给盲株补视黄醛类似物,趋光恢复,最敏感的颜色随类似物移动 | 感光的不是叶绿素,是视紫红质 |
| 1991 | 哈尔茨与黑格曼 | 在眼点和鞭毛区测到光控的内向电流,作用光谱符合视紫红质 | 光先变成了电 |
| 1991 | 黑格曼、Gärtner、Uhl | 起作用的视黄醛是全反式,更像细菌视紫红质 | 衣藻的视紫红质不同于人眼的 |
| 1996 | 霍兰德等 | 眼点光感受器电流大于 50 pA,延迟小于 50 微秒 | 光到电没有时间给一串传话 |
把下面三件事按发生的先后排序。甲:测到眼点光电流的延迟小于 50 微秒。乙:给盲株补视黄醛类似物,恢复趋光。丙:在衣藻的序列库里找到视紫红质的序列。
变式:「到 1990 年代后期,黑格曼的组越来越相信接收器和通道是同一个分子」,这一步在甲和丙之间,还是在乙和甲之间?
然后是找基因,几步都在 2000 年代初。表里的吸收峰,是分子吸收得最多的那种光的波长,470 nm 是蓝光,510 nm 偏绿。电流在某个光强下饱和,是说光再强,电流也不再变大了。
| 年份 | 谁 | 做了什么 |
|---|---|---|
| 1990 年代后期 | 黑格曼的组 | 越来越相信接收器和通道是同一个分子 |
| 2001 | 卡特里亚(黑格曼组) | 在衣藻 cDNA 库里找到大型微生物型视紫红质的序列(黑格曼回忆) |
| 2002 | 西涅什切科夫、Jung、Spudich | 证明 CSRA(吸收峰约 510 nm,电流快,强光下才饱和)和 CSRB(吸收峰约 470 nm,电流慢,弱光下就饱和)是趋光受体 |
| 2003 | 铃木等 | 在序列库里确认两种古菌型视紫红质,一种靠近眼点 |
按表 5-2,CSRA 和 CSRB 哪一个在弱光下就饱和?两个受体合在一起,衣藻能适应的光强范围变宽了还是变窄了?
变式:只留下 CSRA、去掉 CSRB,衣藻在很暗的环境里还能看到光吗?
最后一步是下一章的事。先记一件事:Nagel 等人 2002 年的摘要说,他们找到的这个蛋白质,疏水的核心部分和光驱动的质子泵细菌视紫红质同源。骨架看着像一个泵,做起来是一个通道?泵和通道,差的不是一点点,第 6 章来算。
对你而言未知衣藻里的 CSRA、CSRB,和 ChR1、ChR2 是不是同一批分子,在趋光里各管什么?
按吸收峰推,CSRA 约 510 nm,CSRB 约 470 nm,ChR2 在第 7 章里的吸收峰是 470 nm,三者看着能对上。可是「CSRA 就是 ChR1、CSRB 就是 ChR2」这句话,本章用到的材料里没有一处明文写着,只是按数字猜的。答案有,但不在本章。
先做这一步:把 Sineshchekov 等 2002 年的摘要和 Nagel 等 2003 年的摘要并排放着,各写出它们说到的吸收峰、电流快慢、在什么光强下起作用,自己先猜一个对应,再到 Europe PMC(europepmc.org)上搜 channelrhodopsin、Chlamydomonas、phototaxis,找一篇明确写出这个对应关系的论文,核对你的猜测。
给光开关加一个延迟参数,比较两种接线
为什么现在才加:前面的光一亮就起作用,光和电之间没有时间。这一级把「光到电」之间的时间写成一个能改的数,两种接线各有各的算法,读者才能自己看到传话为什么拖慢。
难点:一是单位。50 微秒是 0.05 ms,写成 50 就差了一千倍,比值会变成 0.06,一眼看上去像是传话链比直连还快。二是 0.05 是上限而不是测得值,直连的真实延迟只会更短,所以算出的「60 倍」是至少 60 倍。三是站与站之间要用相加,而不是取最大,因为一站要等上一站做完才开始。每站 1 ms 和站数是这一级自己假设的数,不是测量值。
自己验:光在 100 ms 亮起。输入直连,应该得到电流起点 100.05 ms。输入传话链、各站用时 [1, 1, 1],应该得到 103 ms,两种接线延迟的比值 3 ÷ 0.05 = 60。再加一站,各站用时 [1, 1, 1, 1],应该得到 104 ms,比值变成 80。把直连的 0.05 误写成 50,比值会变成 0.06,这是单位错了的信号。四个都对上,这一级就成了。
读的时候要小心:「受体就是通道」是谁在哪一年提出的,各处说法不一样
本章写「到 1990 年代后期,黑格曼的组越来越相信……」,写得宽,是有原因的。1991 年哈尔茨与黑格曼那篇 Nature 论文的摘要里没有这句话。1996 年霍兰德等人的摘要写的是「紧密耦合,或者构成同一个通道复合体」。黑格曼与纳格尔 2013 年的回顾,把「感光分子和通道形成单一蛋白复合体」的说法引到 1999 年的一篇关于团藻的论文,拉斯克基金会的介绍则说是 1991 年之后。几处各说各的,所以本章没有写具体年份。另外,「延迟小于 50 微秒」是一个上限,不是一个测得的数。
留给你的问题
假设有人在另一种藻里测到,光电流的延迟是 5 ms,而不是小于 50 微秒。5 ms 能推翻「感光分子和通道是同一个分子」吗?它至少说明什么,又说明不了什么?
不看材料,写下这一章的三堵墙
第一堵:「感光的是叶绿素」,被福斯特的换零件实验推倒,补视黄醛类似物,最敏感的颜色跟着类似物挪,感光的是视紫红质。第二堵:「像人眼那样,经过一串传话再开通道」,被小于 50 微秒的延迟推倒,光到电之间没有时间容得下一串站。第三堵:「快就是同一个分子」,速度只能说紧挨着,分不开紧耦合和同一个分子,要把基因单独放进一个干净的细胞去看;可衣藻的光感受器提纯不出来,只能先从序列库里找基因。
第6章 泵和通道,差的不是一点点
同样一个光子,泵最多送一个电荷,通道开一次门放过去上百个
开篇故事第 6 集 · 六亿个光子推不动一个神经元一束蓝光的十八天
暗室里的光子计数器已经跳到了六亿,红色的数字还在往上滚,光台里那个虚拟神经元的膜电位却一格一格地往下掉。
系统提示当前光开关:细菌视紫红质,一种光驱动的质子泵,每秒吸收的光子数已经超过 6.2 亿个。
系统提示神经元的膜电位离放电阈值越来越远,判定结果是这一次实验没有让它放电,蓝光过敏的赌约判负。
半个小时之前,蓝光过敏在暗室门口拦住许一舟,伸出一根手指说:“我拿一天机时跟你赌,这个泵早在 1973 年就有人说清楚了,光一照它就往膜外推质子,现成、稳定、量还多。我把它装进神经元,光开大一点,神经元一定放电。”许一舟算了一下,一个光子推一个质子,光够强,电流就够大,他想不出哪里不对,于是没有接这个赌,只是站在旁边看。衣藻本藻抱着一摞打印出来的论文进来,看了一眼计数器,什么都没说。
计数器停下来的时候,暗室里只剩下排风扇嗡嗡的声音。蓝光过敏盯着那条往下走的曲线,把手里的遥控器捏得咔咔响:“光子明明够多,它往外推了这么多质子,膜电位怎么反而越来越低?”
岑老师从门口走进来,把暗室的灯拧亮了一点。“你把正电荷往外送,细胞里头剩下的正电荷就少了,电压只会往下走。它给你的是一个让神经元更安静的开关,你要的是让它放电的那一个。”
许一舟这时候才反应过来,方向错了,光子再多也是白搭。可他还有一个问题没想通:“那换一个方向对的泵呢?比如有一个泵专门把正电荷往里送,光开大一点总能把神经元推过阈值吧?”
岑老师从墙上的记事板上撕下一张便签,在背面写了一行算式,贴在计数器的玻璃上。“先算账。一股 100 pA 的电流,每秒要有六亿多个电荷过膜。泵每吸收一个光子,最多只搬一个离子,所以它每秒至少要吃掉六亿多个光子,这还是一个都不浪费的最好情况。”她顿了一下,又说:“通道不一样,一个光子只负责把门打开一次,门开着的那十来毫秒里,离子顺着浓度差和电压自己往里涌。”
衣藻本藻翻到其中一篇论文,念出了上面的年份:2002 年和 2003 年,纳格尔和黑格曼他们把绿藻里找到的两个分子放进青蛙的卵母细胞里,光一照就有电流,而且电流在某个电压上会反过来,这正是通道才有的样子。第二个分子让各种阳离子都能过,反转电位在 0 mV 附近,放在静息的神经元上,它只会往里放正电荷。
那天晚上,营地论坛上的帖子很快就吵起来了,吵的却不是那一天机时。
求问:一个光子换来上千个电荷,能量是从哪里来的
1L电极老炮一个光子的能量就那么一点,凭什么换来一百多到近一万个电荷?我觉得这笔账肯定是算错了。
2L许一舟没有算错,按单通道电导的两头去算,开一次门放过去的电荷就是 1.6×10² 到 9.7×10³ 个,区间这么宽,是因为文献里的电导本来就差得很多。
3L蓝光过敏那就是光子把离子推进去的嘛,一个光子推得动这么多个,说明光子劲大。
4L衣藻本藻不对,离子用的是细胞里外本来就存着的浓度差和电压,光子只是把门打开了,没有亲手推任何一个离子。
5L岑(带教认证)4L 说对了。门后面的那池水早就蓄好了,光子只负责拔掉塞子。1L 的账没有算错,蓝光过敏的一天机时照扣。
熄灯之前,光台给每个人推送了一条还没点开的通知,标题只有一句话:明天上午,在投影室里,转一个蛋白质看看那扇门长什么样。
系统结算 · 本章考点
- 1973 年有人提出细菌视紫红质是光驱动的泵;它把质子送出细胞,是外向电流,让神经元离阈值更远
- 泵每吸收一个光子,最多搬一个离子:一股 100 pA 的电流,泵每秒至少要吸收约 6.2×10⁸ 个光子
- 通道吸收一个光子只开一次门,门开着的约 10 ms 里离子顺着浓度差和电压自己流过去
- 按单通道电导的文献区间、驱动电压 65 mV 估算,开一次门放过约 1.6×10² 到 9.7×10³ 个电荷,比泵多两到四个数量级
- 2002 年 ChR1、2003 年 ChR2 在爪蟾卵母细胞里被证明是被光直接打开的通道;ChR2 让阳离子通过,反转电位约 0 mV,在静息神经元上产生内向电流
手边正好有一个现成的光控分子。1973 年有人提出它是光驱动的泵,它量多,出奇地稳,后来被说成研究得最透的膜蛋白之一。要做一个光控的神经元开关,第一个念头就是拿它来用。可是后来真正用上的,是第 5 章里从绿藻身上翻出来的另一个分子,一个当时还很陌生的通道。这一章用一笔账回答,泵为什么不够用,再看 2002 年和 2003 年的两篇报告,怎么从电流记录里看出那个陌生的蛋白质是通道,不是又一个泵。
学完这一章你应该能做到
- 把一股电流换算成每秒过膜的电荷个数,算出光驱动的泵至少要吸收多少光子
- 用 N = γ·ΔV·t/e 算出通道开一次门放过去多少个电荷,并说出为什么答案是一个区间
- 说出泵和通道差几个数量级,以及三个量里任何一个缩小,倍数怎么跟着缩小
- 拿到一份电流记录,说出哪两条能把通道和泵分开
- 用 I = g·(V − E) 给光开关接上它的电流,说出 −65 mV 和 0 mV 时电流的方向与大小
这一章给实验台的光开关接上它自己的电流。第 3 级的神经元里有三股电流,光开关是第四股,它的反转电位在 0 mV。现在把它写成一个函数 I = g·(V − E),接进第 3 级的更新里。伪代码和判据在章末的第 6 级台阶里。
6.1 现成的光驱动泵,为什么没有被直接拿来点亮神经元?
1971 年,厄斯特黑尔特(Dieter Oesterhelt)和施特克纽斯(Walther Stoeckenius)报告了盐杆菌(名字里的盐,是说它生活在很咸的环境里)细胞膜上一块紫色区域,叫紫膜,里面的细菌视紫红质。1973 年他们提出,它是一个光驱动的泵:光一照,它把质子从膜的一侧送到另一侧。本站的账把这类泵取成每吸收一个光子推动一轮动作,一轮最多送一个离子。现在要用它在一个神经元上得到一股 100 pA 的电流。100 pA 是每秒有 10−10 C 的电荷过膜(1 pA = 10−12 C/s),一个单位电荷是 1.602×10⁻¹⁹ C。泵每秒至少要吸收多少个光子?
答完再看
第二个对。100 pA 是 10−10 C 每秒,除以 1.602×10⁻¹⁹ C,约 6.2×10⁸ 个电荷每秒。每个光子最多送一个,所以每秒至少要吸收 6.2×10⁸ 个光子,这还是每个光子都不浪费的最好情况。第一个选项少算了约六万倍,把一股 100 pA 的电流当成了一万个电荷的事。第三个选项多算了,单位电荷的量级在 10−19,换算时除对了,得到的是 108 的量级,到不了 1017。
1973 年那篇摘要里还写着,紫膜里只有这一种蛋白质,闪光使它的吸收峰从 560 nm 瞬时移到 415 nm,同时释放和摄取质子(Oesterhelt 与 Stoeckenius 1973 年的摘要)。吸收峰是分子吸光最多的那种光的波长,560 nm 是黄绿光,415 nm 是紫光。它量多,又出奇地稳,1970 年代中期就有人在人造膜(脂质铺成的薄膜,当细胞膜的替身)上测它的电流(黑格曼与纳格尔 2013 年的回顾)。拿一个这样现成的光控分子去装神经元,是最顺手的念头,可这条路要过两关。
第一关是方向。已知的光驱动泵里,细菌视紫红质把质子送出细胞,盐视紫红质把 Cl− 送进细胞(1977 年前后发现,1982 年的论文给出的数据强烈提示它是向内的氯离子泵)。质子是正电荷,出去;Cl− 是负电荷,进来。按第 0 章的约定,两样都是外向电流,都让细胞里的电压往低处走,离阈值更远。
细菌视紫红质
质子(正电荷)被送出细胞,是外向电流,细胞里的电压降低。
盐视紫红质
Cl−(负电荷)被送进细胞,负电荷进来等于正电荷出去,同样是外向电流,电压同样降低。
差别在:一个送正电荷出去,一个送负电荷进来,两条路走到同一个结果,膜电位离阈值更远。
2007 年,Han 与 Boyden 把来自一种古菌(和细菌并列的另一类单细胞生物,Natronomonas pharaonis)的盐视紫红质(简称 NpHR)装进培养的海马神经元,黄光一照,膜电位最多被压低了平均约 33 mV(32.9 ± 14.4 mV,n = 19,± 后面是标准差,n 是测了几个神经元)。想让神经元放电的人,拿到手的是一个按住它的开关。
设想一个反过来装的光驱动泵:光一照,把 Cl− 从细胞里送到细胞外。这股电流按电生理的约定是内向还是外向?细胞里的电压会往哪个方向走?
变式:换成一个把 K+ 从细胞外送进细胞里的泵,电流方向和电压变化是什么?
第二关是账。泵的账最好算:每吸收一个光子,一轮动作最多搬一个离子,电流多大,光子数就至少是多少。真实里光子不会个个有效,要的只会更多。100 pA 要 6.2×10⁸ 个光子每秒,这个数单看不吓人,要放到通道的账旁边才看得出差在哪里,下一节就算。
一个光驱动泵,光照下得到 50 pA 的电流,每个光子最多让 1 个单位电荷过膜。每秒至少要吸收多少个光子?(单位电荷 1.602×10⁻¹⁹ C,1 pA = 10−12 C/s)
变式:电流变成 500 pA,每秒至少要吸收的光子数怎么变?
答辩:如果我是审稿人
泵一个光子只搬一个电荷,那就多装一些泵,再把光调亮,补回来不就行了?为什么还要换一个分子?
参考防守(先自己组织语言再看)
补得了一部分,补不了全部。两个旋钮都有顶。光越亮,要送进脑里的光就越多,而光在组织里越走越弱,第 11 章会算。泵装得越多,膜上要塞的蛋白质越多,膜的面积就那么大。更关键的是差多少倍:下一节算出来,同样一个光子,通道推过去的电荷是泵的一百多倍到近一万倍,调亮两三倍的光补不上。方向那一关也没有因此消失,泵再多,推的方向还是往低处走。
6.2 通道呢?一个光子能让多少个电荷过去?
通道不搬离子。光子被吸收以后,通道的门打开,离子顺着膜两侧本来就有的电压差自己流过去,门开着多久就流多久。撤光之后,ChR2 的电流以约 10 毫秒的时间常数消退(关闭时间常数,第 8 章细讲),这里把 10 毫秒当作门每次开着的平均时间。ChR2 的反转电位约 0 mV,静息的神经元在 −65 mV。即使只有一个通道开着,也有一股很小的电流在流。一个光子开一次门,大约有多少个单位电荷过去?
答完再看
第三个对。下面一步步推,结果约在 1.6×10² 到 9.7×10³ 个之间,取决于单个通道的电导。第一个选项把通道也想成了一次一个,忘了门开着时离子一直在流,光子只管开门,不管流多少,「一个光子开一次门」出自 2003 年摘要里的一句话,6.4 会引到。第二个选项方向对了,电流虽小,10 毫秒却是一段不短的时间,十几个少了十倍以上。
打个比方
浴缸里的水要放掉,可以用勺子一勺一勺舀出去,也可以拔掉塞子。舀水的人每动一次手只搬走一勺,拔塞子的人只动一次手,塞子开着多久,水就从高处往低处流多久。泵像舀水的人,通道像塞子,光子是动一次手。
类比失效处:浴缸的水位几乎不因放水而变,水流一直取决于水位差。细胞的膜电位一动,驱动力就跟着变:膜电位被拉向 0 mV 的路上,通道的驱动力越来越小,电流也越来越小。通道的门也不是拔了就一直开着,每次开多久是随机的,书里的 10 毫秒是撤光后电流消退的时间常数,拿来当平均开着的时间用。
自己推一遍:一个光子换来多少个电荷
一个通道开着,通过它的电流有多大?单通道电导 γ 是它开着时让电流通过的本事,单位西门子,1 fS = 10−15 S。取文献区间的小端 40 fS,驱动电压取 65 mV。
想好了再看
电流 = 电导 × 驱动力,驱动力是膜电位减反转电位:−65 − 0 = −65 mV,大小 65 mV。40×10−15 S × 0.065 V = 2.6×10⁻¹⁵ A,也就是 2.6 fA,负号表示内向。
门开着 10 ms,通过的电荷量是多少?
想好了再看
电流乘时间:2.6×10−15 A × 0.010 s = 2.6×10⁻¹⁷ C。
一个单位电荷是 1.602×10⁻¹⁹ C,这是多少个电荷?
想好了再看
2.6×10⁻¹⁷ ÷ 1.602×10⁻¹⁹ ≈ 162,约 1.6×10² 个。
γ 取区间的大端 2.4 pS(1 pS = 10−12 S)呢?为什么要把两端都算一遍?
想好了再看
大端是小端的 60 倍,结果也是 60 倍:约 9.7×10³ 个。文献里单通道电导就是跨这么宽,哪一个都不能当作唯一的值,所以给区间。
四步合起来是一个式子:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| N | 一次开门放过去的单位电荷个数 | 光子只开一次门,这个数就是通道对一个光子的回报 |
| γ | 单通道电导,代入时换成 S(1 fS = 10−15 S) | 开着时这个孔有多容易过 |
| ΔV | 驱动电压,膜电位与反转电位之差的大小,代入时换成 V | 推离子的劲,65 mV 是静息 −65 mV 与 0 mV 之差 |
| t | 门开着的时间,代入时换成 s | 开得越久,流得越多 |
| e | 单位电荷,1.602×10−19 C | 把总电荷量换成个数 |
一个 ChR2 通道开着,电导 1 pS,反转电位约 0 mV。膜电位在 −65 mV 时,通过它的电流多大、什么方向?膜电位被拉到 +20 mV 时呢?
变式:反转电位换成 −85 mV,膜电位在 −65 mV 时,电流多大、什么方向?
于是同样吸收一个光子,泵最多让 1 个电荷过膜,通道让约 1.6×10² 到 9.7×10³ 个,差一百多倍到近一万倍。换成每秒的账,同样要得到 100 pA:
泵
每秒要有 6.2×10⁸ 个电荷过膜,每个光子最多搬一个,所以至少要吸收 6.2×10⁸ 个光子。
通道
每个光子开一次门,放过去约 1.6×10² 到 9.7×10³ 个电荷,所以只要约 3.8×10⁶ 到 6.4×10⁴ 个光子。
差别在:泵的电荷数被光子数卡住,通道的电荷数由门开着的那一段时间决定,光子只管开门。
数量级(order of magnitude):按十倍十倍数的档位。差一个数量级是差 10 倍,差两个是差 100 倍,四个是一万倍。通道对泵,差的是两到四个数量级。
下面的账本替你做这套乘法。先拖单通道电导,看倍数怎么变,再勾上两个开关:门只开 1 毫秒,或者驱动电压降到 10 mV,看通道的倍数缩到多少。
拖过就会发现,三个量缩小多少倍,倍数就缩小多少倍,这是三个量连乘的直接结果。账本没有算光有多亮,也没有算分子吸光的本事,所以不能换算成多少 mW/mm²。光在组织里怎么走,第 11 章才碰。
答辩:如果我是审稿人
一个 470 nm 的光子只有约 2.6 eV 的能量(eV 是电子伏,一个电荷落过 1 V 电压得到的能量,1 eV = 1.602×10⁻¹⁹ J,光子的 4.23×10⁻¹⁹ J 就是 2.6 eV),可通道在一个光子之后放过去的电荷,顺着 65 mV 流下去,释放的能量远大于这个数。多出来的能量从哪里来?这不是凭空造能量吗?
参考防守(先自己组织语言再看)
多出来的能量不是光给的。膜两侧的浓度差和电压差是细胞早先花能量存下来的,第 2 章里泵撑着的就是它,像水库里存好的水,光子只负责拔塞子。算一下:每个电荷顺着 65 mV 流过去释放 0.065 eV,162 个是约 10.5 eV,是光子能量的约 4 倍;9738 个是约 630 eV,约 240 倍。泵的情形反过来,它要把离子逆着梯度推上去,这份功要由光子出。光子的能量按电压算,够把几十个电荷逆着 65 mV 推上去,泵每个光子最多搬一个,是本站这笔账取的前提,不是算出来的。
有人说:通道的优势全靠门每次开着 10 ms,门只开 1 ms,通道就和泵没差别了。用式 6-1 判断这句话。再把驱动电压从 65 mV 降到 10 mV,倍数是多少?(γ 取 40 fS 和 2.4 pS 两端)
变式:γ 取 40 fS,驱动电压 65 mV,门开的时间长到 100 ms,N 是多少?
6.3 这笔账算出来了,怎么知道它靠不靠得住?
算出一个倍数,别急着信。我先把账里每个数分一分:哪些是测出来的,哪些是文献给了区间的,哪些是本站设的。表 6-1 就是这份分类。
| 数 | 取值 | 从哪来 | 牢靠吗 |
|---|---|---|---|
| γ | 40 fS 到 2.4 pS | 文献区间。小端来自噪声分析(从总电流的抖动幅度反推单个通道的电导),用 200 mM 氯化钠、−60 mV,不是生理条件(Feldbauer 2009 摘要);大端是 Williams 2013 引用的文献值 | 最不牢靠,给区间 |
| ΔV | 65 mV | 静息 −65 mV 减反转电位约 0 mV;文献里的反转电位在 −5 到 +10 mV 之间(Williams 2013) | 较牢靠 |
| t | 10 ms | 用关闭时间常数 9.5 ± 2.8 ms(Mager 2018,测了 3 个细胞)代替平均开着的时间 | 代用的,中等 |
| 光子成功率 | 两边都取 1 | 本站设的。真实的光循环里不是每个光子都能成功 | 不知道 |
| e | 1.602×10⁻¹⁹ C | 常数 | 牢靠 |
我怎么查这笔账
先挑最不牢靠的数,是 γ,上下差 60 倍,所以不挑一个值,两端各算一遍。再看 t 和 ΔV,一个是代用的,一个是约定的,各自最多差几倍。最后把最坏的情况叠在一起:t 缩到 1 ms,ΔV 缩到 10 mV,倍数还剩约 2.5 到 150。「通道比泵多得多」在最坏情况下还站得住。
只看最后那个数
看到 1.6×10² 到 9.7×10³,就说「通道正好比泵强一万倍」。这个区间的两端差 60 倍,里面没有一个数是精确的,说「一百多倍到近一万倍」站得住,说「正好一万倍」站不住。
差别在:账的结论只能和账里最不牢靠的那个数一样牢靠,所以结论要写成区间。
文献里有一个相近的数。Kim 等 2018 年论文的引言转引说,氯离子通道 GtACR 的光敏度比光驱动的泵高约 102 到 104 倍(被转引的原文本站没有读到)。本章算出的 1.6×10² 到 9.7×10³ 落在同一段。可是它们量的不是同一样东西:一个是要多亮的光才够用,一个是每个光子推过去多少电荷,而且说的是氯通道,不是 ChR2。数量级对得上,只能说互相没有矛盾,不能说互相验证了。
跨实验相除
Han 与 Boyden 2007 的氯泵 NpHR,约 10 mW/mm² 黄光,电流 88.7 ± 32.8 pA;Boyden 等 2005 的 ChR2,8–12 mW/mm² 蓝光,峰值光电流 496 ± 336 pA。496 ÷ 88.7 ≈ 5.6,「通道只比泵强 5.6 倍」。
每个光子的问法
电流的大小取决于细胞里装了多少分子、光的颜色、每个分子吸光的本事。两个实验的光强都在约 10 mW/mm²,可分子个数没有数,黄光和蓝光不同,两种分子吸光的本事也不同。5.6 倍说的是这两个实验的结果,说不出每个光子推过去多少。
差别在:电流大小是实验的结果,每个光子推过去的电荷是分子的性质,两个实验里的电流不能相除去比分子的性质。
要公平地比较一个光驱动泵和一个光门控通道每个光子推过去的电荷,请写出:两边必须保持一样的至少三样条件;最后要测什么、再除以什么;为什么 88.7 pA 和 496 pA 直接相除做不到。
变式:两边装的分子个数不一样,但你各自数出了个数,还能比吗?怎么比?
6.4 骨架像泵,做起来却是通道,电流记录里哪两条能看出来?
第 5 章末尾留了一件怪事:Nagel 等人 2002 年的摘要说,那个蛋白质嵌在膜里的核心部分,和光驱动的质子泵细菌视紫红质同源,也就是氨基酸序列相似,有共同的祖先。按亲缘猜,它多半又是一个泵。可摘要接着写,把它放进爪蟾卵母细胞,产生的光门控电导表现出选择性通透质子的通道的特征。
测它的办法,班贝格和纳格尔的实验室手里已经有了。1995 年,他们为了搞清细菌视紫红质泵质子的电压依赖,把它放进爪蟾卵母细胞里测,这样能在很宽的电压范围里测(Nagel 等 1995,据黑格曼与纳格尔 2013 年的回顾)。后来盐视紫红质也这样测过。基因找到之后,用的是同一套。为什么放进这种细胞,第 1 章 1.5 节讲过。
我拿到一份新记录,先看方向有没有反过来
把电流按膜电位画成一条线,我先看它有没有在某个电压处过零、两边符号相反。通道让离子顺着梯度流,电流在反转电位处过零,两侧方向相反(第 2 章)。泵靠光的能量逆着梯度推,在细胞里常见的电压范围里,它的方向不跟着电压换,线不过零。再看大小:通道的电流跟 V − E 成正比,随电压一路变。
只看光一照有没有电流
光一照有电流,不足以说它是通道,泵一照光同样有电流。要看电流随电压怎么变,换掉膜两侧的离子以后怎么变。
差别在:有没有电流两种都有,电流随电压和离子怎么变,才分得开。
电流–电压关系(I–V relation):在不同膜电位下测同一个蛋白质的电流,把电流对膜电位画成一条线。通道的线在反转电位处过零,图 6-2 就是它的示意。
第一条在上面:电流随电压变,在反转电位处过零。第二条是换离子。通道只放某几种离子过,换掉膜两侧的离子,反转电位会跟着挪,第 2 章的能斯特方程能算它挪多少。ChR1 的摘要写它选择性通透质子,ChR2 的摘要写它让一价和二价阳离子都能过。后来的文献把 ChR2 的反转电位放在 0 mV 附近(Williams 2013 汇总),这正是通道会有的样子。这两条是按第 2 章的道理推出来的判据,两篇摘要只写了「表现出通道的特征」,具体用了哪几条,要读全文才知道。
三份电流记录(本题自设的数,不是论文数据),各在 −60 mV、0 mV、+40 mV 下测,单位 pA。甲:+25、+25、+22。乙:−80、0、+50。丙:+25、+85、+125。哪一份最像泵?哪一份是反转电位约 0 mV 的通道?丙一直外向,能不能由此判断它是泵?
变式:乙在 +40 mV 测到的是 −50 pA,其余不变,它还能说是通道吗?
ChR2 这一份,2003 年的摘要写的是:它是直接受光开关的阳离子选择性通道,吸收一个光子后迅速打开,对一价和二价阳离子产生很大的通透性。「吸收一个光子后迅速打开」,和 6.2 的账是同一件事:一个光子,一次开门。摘要最后一句说,只靠光照就能让或大或小的细胞去极化。后来的测量把它的反转电位放在 0 mV 附近,这就是第 3 章里第四股电流的来历。
6.5 表 4-1 最后一行空着的那一格,现在填什么?
第 4 章的表 4-1 最后一行是「要找的东西」,后面空着。现在有两个候选,放进同一套问法,再加上本章新问的两列。
光驱动的泵(light-driven pump):吸收光子,用光的能量把离子逆着梯度搬过膜,本站的账按一轮光循环最多搬一个算。光门控通道(light-gated channel):吸收光子,打开一个孔,离子顺着梯度自己流过膜。
| 办法 | 四把老尺子 | 零件 | 每个光子 | 把细胞往哪推 |
|---|---|---|---|---|
| 光驱动的泵(NpHR) | 基因选细胞;电流起落约 10–15 ms;撤光即停 | 一个基因 | 最多 1 个电荷 | 电压降低,只能关 |
| 光门控通道(ChR2) | 基因选细胞;关闭时间常数约 9.5 ms;光亮后约 8.0 ms 出第一个动作电位 | 一个基因 | 约 1.6×10² 到 9.7×10³ 个 | 往 0 mV 拉,能开 |
按表 6-2,光驱动的泵在新加的两列里哪几处不理想?为什么这两处对「让神经元放电」是问题,对「让神经元安静」却不是?
变式:表里 ChR2 这一行的「把细胞往哪推」,依据的是哪一个反转电位?
两行在四把老尺子上都过了,都是一个基因,都是毫秒级,撤光都停,分开它们的是新加的两列。要「开」用通道,要「关」泵正合适,那是第 12 章的事。
对你而言未知同样是七段螺旋、同样嵌着视黄醛,一个当泵,一个当通道,差在哪些位置?
Nagel 等 2002 年的摘要说 ChR1 的疏水核心与细菌视紫红质同源,2003 年的摘要又说,预测出的七段跨膜螺旋是 G 蛋白偶联受体(人眼里的视紫红质就属于这一类)常见的样子,在这里却对应一种不同的阳离子通道样式。Feldbauer 等 2009 年的摘要还把 ChR2 说成也是一个「漏的」质子泵(本站只读到摘要层面的转述)。泵和通道的界线,比本章的账画得软。第 7 章看真实结构,完整的故事在文献里。
先做这一步:把 Nagel 2002 和 2003 两篇摘要并排放着,各找一句讲它和细菌视紫红质哪里像、哪里不像的话;再到 Europe PMC(europepmc.org)搜 Feldbauer channelrhodopsin proton pump,想一想「漏的质子泵」对 6.2 里「泵每个光子最多搬一个电荷」的账有什么影响。
给光开关接上它的电流:I = g·(V − E)
为什么现在才加:第 3 级的神经元有了钠、钾、漏三股电流,光开关还没有电流。前面几章让你知道光开关是第四股,反转电位在 0 mV,本章又算清了一次开门放过多少电荷。现在把它写成函数,接进第 3 级的更新里。
难点:一是符号。第 3 级里离子电流外向为正、要从注入电流里减掉,I_光 同样外向为正,也要减。写成加号,光一亮,膜电位反而被越拉越低,数值很快大到程序出错。二是 E 要和 V 用同一套约定:第 3 级的 V 是绝对膜电位,静息 −65 mV,所以 E = 0;换成相对静息电位的写法,E 就得写成 +65。三是 g 不是单通道电导 γ,它是此刻所有开着的通道的总电导,式 6-1 里的 γ·ΔV 只是一个通道的 g·(V − E)。
自己验:先单独检查函数。I_光(−65, 0.05, 0) 应该得到 −3.25 µA/cm²,负号是内向;I_光(+20, 0.05, 0) 应该得到 +1.0;I_光(0, 0.05, 0) 应该得到 0.0;I_光(−65, 0.05, −85) 应该得到 +1.0,外向,因为反转电位在静息电位下面,往下拉。再接进第 3 级:不注入电流,g = 0.2 mS/cm²、E = 0、持续 100 ms,应该数到 7 次放电,和 3.5 节的数一致;E 换成 −85 mV,应该一次也不放,膜电位最后停在约 −69 mV。六个都对上,这一级就成了。
读的时候要小心:这笔账给的是区间和数量级,不是 ChR2 的一项性质
三处要记着。其一,单通道电导的小端 40 fS 来自非生理的盐浓度,所以 1.6×10² 到 9.7×10³ 是区间,不能写成一个数。其二,账里两边的光循环成功率都取 1,真实的 ChR2 里不是每个光子都能开门,这一项本站没有算;泵每个光子最多搬一个电荷,也是账的前提,不是算出来的。其三,Kim 等 2018 年引言里「约 102 到 104 倍」是转引的数,说的是氯离子通道 GtACR 对泵的光敏度,量的是「要多亮的光才够用」,和本章「每个光子推过去多少电荷」只能比数量级,不能互相验证。
留给你的问题
本章的账只在光弱、通道大多还关着的时候成立。如果光强到把一个细胞膜上的通道几乎全部打开,再多的光子还能多推过去电荷吗?这时通道对泵的优势会怎样?账里哪一项先不够用了?
不看材料,写下这一章的三堵墙
第一堵:「现成的泵拿来用就行」。已知的光驱动泵都把膜电位往低处推,方向反了;账也吃亏,每个光子最多推一个电荷,100 pA 要每秒吸收至少 6.2×10⁸ 个光子。第二堵:「通道也只会一次一个」。一个光子只负责开一次门,门开着时离子顺着梯度一直流,N = γ·ΔV·t/e,约 1.6×10² 到 9.7×10³ 个,能量不是光给的,是细胞早先存好的。第三堵:「骨架像泵,它就是泵」。同源的骨架可以做成通道,要看电流随电压会不会过零、换离子反转电位会不会跟着挪,才分得开泵和通道。
第7章 光开关长什么样
一个光子的力气只够四十一个离子,门却是它开的
开篇故事第 7 集 · 拧紧的弹簧付不起这笔账一束蓝光的十八天
系统提示许一舟的赌约判负:一次开门通过的电荷,带着的总能量是一个光子的 4.0 倍到 240 倍,远远超出他预测的上限。
系统提示按赌约,许一舟要在第二周的晨间讲题里站上讲台,蓝光过敏赢下的这一局已经记入光台的名单。
半个小时之前,投影室里只有风扇在嗡嗡地转,投影灯烤出一股淡淡的焦味,半空中悬着 6EID 放大了许多倍的样子:七根彩色的螺旋围成一圈,圈中央亮着一条橙色的细链,经一个化学键拴在第七根螺旋的 K257 上。许一舟绕着它走了两圈,想找昨晚通知里说的那扇门,结果只在第三根和第四根螺旋之间看到一个水分子牵着两个氨基酸,岑老师说那一处就叫 DC 门。
许一舟在白板上写下两行数。“光子被视黄醛整个吃下去,把 C13 和 C14 之间的双键拧过去,拧弯的视黄醛就是一根上紧的发条,”他指着第一行 4.23×10⁻¹⁹ J,又指着第二行 1.04×10⁻²⁰ J,“前一个是光子的能量,后一个是一个电荷走完 65 mV 的电压落下的能量,两个数一除,发条里的能量最多推 41 个电荷。能量守恒,出的不能比进的多,所以一次开门过去的电荷不会超过 41 个。”蓝光过敏听完笑出了声,说昨晚论坛上明明写着一百多个起步,他愿意拿第二周的晨间讲题来赌。许一舟把算式从头看到尾,找不出哪一步有错,于是答应了。
光台把开门的账摊在半空,少的一端是 162 个电荷,多的一端是 9.7×10³ 个,许一舟盯着那一串数,嘴里还在念着能量守恒。岑老师拧松了保温杯的盖子,一股热气冲了出来。“你没有用错能量守恒,你只记了一边。一个光子的能量只抵 41 个电荷走完这段电压,它付不起这笔账。付账的是细胞自己,膜两侧的浓度差和电压就是杯子里那壶早就烧好的水,泵一直在续。光子只是拧开杯盖的那只手。”
投影室里的弹簧模型被当场算垮了,一个光子到底付得起几个电荷
1L衣藻本藻我把 2017 年结构论文的摘要又读了一遍,空腔之间由含水分子的氢键网络连着,视黄醛拴着的那一端控制着三个门,投影里能看到的门就是这个样子。
2L蓝光过敏我赢了,一次开门最少放过去 162 个电荷,昨晚写得明明白白,许一舟的发条连这个数的四分之一都装不下,晨间讲题的题目我替他想好了。
3L许一舟能量守恒我没有用错,光子给了多少,发条就只能放出多少,我到现在还想不通,多出来的那么多能量是从哪里冒出来的。
4L电极老炮3L 不对,你只记了光子这一边。我拆过的收音机,喇叭里的声音不是旋钮给的,旋钮只管让电池里的电放出来,膜两侧的浓度差和电压就是那节电池。
5L岑(带教认证)4L 说得对。晨间讲题的题目我替许一舟定了,就叫「一个光子付不起的账」,讲稿他自己写。
岑老师收拾投影的时候只留下一句话,明天光台里的那盏蓝灯一直不关。许一舟走出投影室才反应过来,拔掉插销的那只手如果一直不松开,水会不会一直那样流出去,电流难道真的会是一条平线?
系统结算 · 本章考点
- 光子被视黄醛整个吸收,不切开,也不撞门;它把 C13=C14 双键从全反式拧成 13-顺式,孔道是蛋白质跟着变形才打开的
- 6EID 是 2017 年发表的野生型 ChR2 晶体结构,分辨率 2.39 Å,数得出七根跨膜螺旋,视黄醛经席夫碱拴在第七根螺旋的 K257 上
- DC 门是 C128 与 D156 之间由一个水分子牵起来的连接,两个位置分别在第三根和第四根螺旋上
- 一个 470 nm 光子的能量是 4.23×10⁻¹⁹ J,一个电荷走完 65 mV 的电压落下 1.04×10⁻²⁰ J,所以一个光子只抵 41 个离子走完这段电压
- 一次开门通过约 162 到 9.7×10³ 个电荷,总能量是一个光子的 4 倍到 240 倍;多出来的能量是细胞事先存好的浓度差和电压,光子只管开门,不管推离子
第 6 章留下一笔看着对不上的账:一个光子开一次门,门一开,就有一百多到近一万个电荷涌过去。一个蓝光光子的能量只有 4.23×10⁻¹⁹ J,用它去推一扇门都嫌小,哪来的力气让这么多离子冲过去?这一章把光开关拆开,先看光子在里面只做了一件什么事,再算一笔能量账,看离子的力气从哪里来。
学完这一章你应该能做到
- 说出光子对视黄醛做了哪一件事,以及它没有做的两件事:直接推门,直接推离子
- 在 6EID 的真实结构里数出七根跨膜螺旋,指出视黄醛和拴住它的 K257
- 用一个光子的能量和一次开门流过的离子的能量,说明离子的力气不来自光
- 把光开关写成「视黄醛是反式还是顺式,决定电导」的小程序,算出一次开门通过的电荷数
这一章给虚拟实验台的光开关装上内部状态。前六级里光开关只是 I = g·(V − 0),g 是我们手填的一个数,光怎样变成电导还是空白。这一级让 g 由视黄醛是反式还是顺式来决定:一个光子把反式翻成顺式,门就开,过一阵自己翻回去。
7.1 一个光子的能量那么小,它怎么把一扇门推开?
一个蓝光光子的能量是 4.23×10⁻¹⁹ J。通道视紫红质吸到这样一个光子,你觉得接下来最可能发生什么?
答完再看
第二个对。通道视紫红质里接住光子的是一个叫视黄醛的小分子,它吸光后链上的一处化学键拧了过去,形状变了,周围的蛋白质被它带着挪动,孔道才通。第一个错在把光子当成能撞开东西的实体,光子被吸收就是整个交给一个分子,没有「撞」这回事。第三个错在能量的去向,吸收光子的只有视黄醛这一个分子,这份能量先用在改变它的形状上。
最顺手的想法,是把光子当成一颗小弹珠,朝着门飞过去,撞开它。这条路走不远。光子被吸收时是整个交给一个分子,光是一份一份到达的,每一份叫一个光子(第 0 章),一份不会切开。光子被吸收时是整个交给一个分子,一个光子只落在一处,不可能同时去推一片蛋白质的好几个地方。所以先要问,通道里哪个部件负责接住光子?第 5 章已经给过线索:盲的衣藻突变株补上视黄醛一类的小分子就恢复了趋光,1991 年又查明起作用的是全反式视黄醛。通道视紫红质里接住光子的,就是它。
视黄醛(retinal):维生素 A 的衍生物,一条碳链,链上单键和双键相间排列,一头连着一个小环,另一头经一个化学键拴在蛋白质链上的一个赖氨酸(氨基酸的一种)上。它是蛋白质里吸光的那一小部分。
一个蓝光光子到达通道视紫红质,被里面的视黄醛吸收。这个光子的能量,会不会一半给视黄醛、一半给旁边的另一个分子?这个结论和「光子像弹珠一样去撞门」的想法相比,改变了什么?
变式:把一束光换成光子数多一百倍的光,每一个光子被吸收时的情形会不会变?这一百倍的光子,对通道总共能做的事有什么影响?
接住光子之后,视黄醛多出一份能量。这份能量不用来推谁,用来改变它自己的形状。链上的单键像轴承,两头可以转;双键锁得更紧,转不动,它两侧的原子要么在同一边,叫顺式,要么在相对的两边,叫反式,想从一种变成另一种,得把双键拧过去。从环那一头数起,第 13 和第 14 个碳原子记作 C13 和 C14(图 7-1 里橙色的一段)。吸收一个蓝光光子之后,它们之间的双键被拧过去,视黄醛从全反式变成 13-顺式,名字里的数字就是被拧的那处双键在链上的位置。
人眼里的视紫红质
视黄醛出发时是 11-顺式,光把它拧成全反式。后面接着一串信号分子一站一站传话,最后才影响细胞的电。
通道视紫红质
视黄醛出发时是全反式,光把它拧成 13-顺式。后面没有站,同一块蛋白质自己把孔打开。
差别在:拧的是哪一处双键,从哪一边拧到哪一边,以及拧完之后是传话还是直接开孔。
这一拧为什么就能开门?视黄醛不是飘在水里的,它被七根螺旋围在中间(7.2 里一根一根数),一头还拴在蛋白质上。可以这样想:暗中它是一条直链,蛋白质围着它形成了合适的口袋;链在 C13=C14 处一拐弯,口袋里就多出一个放不下的拐角,周围的螺旋被顶着、拽着,只好挪位置。2017 年的结构论文在摘要里写得更具体:结构里有两个朝细胞内、两个朝细胞外的空腔,由含水分子的氢键网络连着;视黄醛拴在蛋白质上的那一端(化学上叫席夫碱,7.2 里细讲)控制并同步着三个门。
视黄醛被光子拧成 13-顺式之后,蛋白质不是一步变到开着,要先后经过几个中间状态。你觉得孔道在这个过程里是怎样通和关的?
答完再看
第二个对。Becker-Baldus 等 2021 年按每个中间态吸光的颜色,给它们起了名字。视黄醛刚拧完的叫 P1,吸收峰在 500 nm(吸收峰就是它吸光最多的那个波长)。接着席夫碱末端的氮上挂着的一个氢离子(质子)掉了下来,叫 P2,吸收峰 390 nm,通道在这一段里打开。氢离子再接回去,叫 P3,吸收峰 520 nm,通道仍开着;之后孔道先关上,蛋白质才慢慢回到没有光时的出发状态,叫暗态,吸收峰 470 nm。两位发现者 2013 年的回顾说,闭合走的路径和开门时不同,暗态的恢复要慢许多个数量级。第一个错在把门关上等同于视黄醛复原,两件事不同时发生。第三个错在漏掉了中间态。还有一个不导电的中间态 P4,吸收峰 480 nm,和去敏化有关,它在循环里排第几,研究者还没有一致的看法,第 8 章会回到它。
打个比方
一根直尺插在两排紧挨的梳齿之间,大小刚好。把尺子在中间掰弯一处,弯出来的那一段把两排梳齿顶开,缝隙就连成一条路。光子的作用是掰那一下,路是梳齿让出来的。
类比失效处:尺子和梳齿都是硬的,一掰就开。蛋白质是软的,视黄醛拧过去之后,要经过几个先后出现的中间态,孔道才通。而且弯了的尺子不会自己变直,视黄醛却会回到出发的形状:孔道先关上,这个回复在后面慢慢完成,比开门、关门都慢得多。
用一句话说出人眼视紫红质和通道视紫红质在「光子对视黄醛做了什么」上的相同点和不同点。
变式:假想一个视黄醛,链上所有双键都被固定、拧不动,它吸收了光子,通道还能开吗?光子的这份能量会去哪里?
一个光子到达了通道视紫红质,门却没有开。请构造两种不同的情形,说明各自为什么,再说怎样把它们区分开。
变式:门开着的那一段时间里,连着来了三个光子,一共开了几次门?为什么?
答辩:如果我是审稿人
视黄醛拧一下,蛋白质变形,孔打开,光到孔之间隔着好几步。第 1 章说传话式慢、一体式快,这几步为什么不算传话?
参考防守(先自己组织语言再看)
传话指的是一个分子把信号交给另一个分子,每一次交接,都要等一个分子走到下一个分子旁边,总时间是各次等待的累加。通道视紫红质的这几步全在同一个分子里发生,原子之间靠化学键和氢键直接牵着,没有谁需要走路。时间上也对得上:衣藻眼点的光电流延迟小于 50 µs(第 5 章),神经元里的 ChR2 在光照后 2.3 ± 1.1 ms 就达到最大的上升速率(Boyden 等 2005,8–12 mW/mm²),都比 ChARGe 那样要好几秒的传话链快得多。这里的「步」是同一个分子的几个先后动作,不是几个分子轮流接力。
7.2 6EID 这份真实结构里,能数出什么?
要知道一个蛋白质长什么样,得知道它每个原子在哪。2017 年,Volkov 等人在 Science 上发表了野生型 ChR2 的晶体结构,条目号 6EID:用 X 射线照一块由大量蛋白质整齐排列成的晶体,从衍射图样反推原子的位置,分辨率 2.39 Å。Å 读作埃,1 Å 是 10−10 m,一个原子的直径在一两个 Å 到三个 Å 之间,所以 2.39 Å 的意思是,隔着一两个原子远的细节还能分开。
跨膜螺旋(transmembrane helix):氨基酸链卷成的一根螺旋管,穿过细胞膜一次。通道视紫红质有七根,围成一圈,视黄醛就在这一圈的中间。
席夫碱(Schiff base):视黄醛末端的碳和赖氨酸末端的氮之间的 C=N 键,视黄醛靠它拴在蛋白质上。
文件里的 A 链和 B 链
一条链就是一个通道蛋白分子。文件里存了两条,叫 A 和 B,它们在晶体里头尾相反,不在同一个二聚体里。场景下拉里选「文件里的 B 链」,看到的就是这个样子。
膜里的一对:A 链和它的对称拷贝 A′
通道视紫红质在膜里成对工作,一对叫二聚体。二聚体是一条链加上它绕一根轴转半圈得到的拷贝(文件的 REMARK 350 给出了转法),记作 A′。场景默认画的第二条链就是 A′。
差别在:第二条链是文件里另一条独立的链,还是同一条链的对称拷贝;膜里成对工作的是后者。
蛋白质是一条氨基酸链,链上每一节叫一个残基,从链头起编号,第 257 位就是第 257 节。氨基酸有单字母缩写:K 是赖氨酸,E 是谷氨酸,C 是半胱氨酸,D 是天冬氨酸,H 是组氨酸,所以「K257」读作「第 257 位的赖氨酸」。按序列从头数,七根螺旋依次叫第一到第七根,K257 落在第七根上,视黄醛经席夫碱拴在它上面。下面这个场景里画的是文件里真实的坐标,每根螺旋一种颜色,视黄醛是那个发光的小分子,请自己拖着转一转。
三件事请自己做一遍。先数一数七种颜色的螺旋,点一下第七根,看它的残基范围。再点 K257 的小球,看视黄醛挂在哪里。最后去掉「显示第二条链」,数一数一条链里有几根螺旋、几个视黄醛。
| 项目 | 内容 |
|---|---|
| 条目与方法 | PDB 6EID,野生型 ChR2,X 射线衍射,分辨率 2.39 Å |
| 链 | 文件里存了 A、B 两条链,每条序列 315 个残基,头尾相反,不是一对;膜里的二聚体是一条链加它的对称拷贝 |
| 看得见的残基 | A 链 33–279(247 个),B 链 31–281(251 个),两端在晶体里晃动,坐标没有定下来 |
| 七根跨膜螺旋(残基范围) | 第一根 45–77,第二根 80–101,第三根 117–137,第四根 146–169,第五根 172–203,第六根 206–233,第七根 241–279 |
| 视黄醛 | 每条链各一个,经席夫碱拴在 K257 上,在第七根螺旋里 |
表 7-1 里 A 链的序列有 315 个残基,看得见的有 247 个。没有被看见的有几个?它们在链的哪些位置?
变式:B 链看得见 251 个,没看见的有几个,在哪些位置?
整条通道视紫红质比这 315 个残基长得多,七根螺旋之后还拖着一长段功能不明的尾巴,做光遗传学时通常略去(黑格曼与纳格尔 2013 年的回顾)。第 9 章的 2005 年实验用的是 ChR2 的前 315 个氨基酸,这份晶体的序列同样是 315 个残基。场景里可以标出六个位置:K257、E90、E123、C128、H134 和 D156,表 7-2 列了它们各在哪根螺旋上。其中 C128 和 D156 之间由一个水分子牵起来,合起来叫 DC 门。
DC 门(DC gate):C128 和 D156 之间由一个水分子牵起来的一处连接,名字取自这两个位置的缩写。结构论文的摘要说它和席夫碱直接相互作用;两位发现者 2013 年的回顾说,这两个位置只要换掉一个氨基酸,开放态的寿命就大幅变长。
用表 7-1 里的残基范围判断:C128 和 D156 分别落在第几根螺旋上?它们是在同一根上吗?
变式:H134 和 C128 在同一根螺旋上吗?E90 又在哪一根?
| 位置 | 在哪根螺旋(残基范围) | 这一章用到的信息 |
|---|---|---|
| K257 | 第七根(241–279) | 视黄醛经席夫碱拴在它上面 |
| E90 | 第二根(80–101) | 一个残基位置,这一章只用它标出位置 |
| E123 | 第三根(117–137) | 把它换成苏氨酸(E123T)的突变,就是第 13 章的 ChETA |
| C128 | 第三根(117–137) | DC 门的一端;C128S 加 D156A(半胱氨酸换成丝氨酸,天冬氨酸换成丙氨酸)的双突变体叫 SSFO(Yizhar 等 2011,第 13 章) |
| H134 | 第三根(117–137) | 一个残基位置,这一章只用它标出位置 |
| D156 | 第四根(146–169) | DC 门的另一端,和 C128 之间隔着水分子相连 |
7.3 门开了,流过去的离子是被光推过去的吗?
通道视紫红质的门开着,膜两侧有 −65 mV 的电压,阳离子顺着孔道往细胞里流。你觉得这些离子是靠什么力气走过去的?
答完再看
第三个对。一个光子的能量只够 41 个离子走完 65 mV 的电压,而一次开门通过的离子有一百多到近一万个,光子付不起这笔账,下面马上算。第一个错在把光子当成发动机,光子的任务在 7.1 里已经结束。第二个错在把孔壁当成推手,孔壁只是一条路,路本身不出能量。
先把第一个想法认真走一遍。第 6 章里的细菌视紫红质是光驱动的泵:一个光子挪一个离子,光子的能量用来把离子推上坡。如果通道也靠光子推离子,一次开门过去上千个离子,就得有上千个光子,可第 6 章说的是一个光子开一次门。账对不对,得拿能量算一算,算之前先备好一把尺:把一次开门通过的离子,换成它们带着的总能量,再除以一个光子的能量,得到一个倍数 R。
| 符号 | 是什么 | 直觉 |
|---|---|---|
| N | 一次开门通过的电荷个数 | 门开着的这段时间里涌过去的离子数 |
| e | 一个电荷的电量,1.602×10−19 C | 电荷的最小单位 |
| |V − Erev| | 膜电位与反转电位之差的大小。这里膜电位取 −65 mV,反转电位按 0 算,差的大小是 65 mV | 离子走完全程落下的电压 |
| hc/λ | 一个光子的能量,470 nm 时 4.23×10⁻¹⁹ J | 第 0 章的老朋友 |
自己推一遍:从一个光子到一次开门的能量账
一个 470 nm 的光子有多少能量?一个电荷顺着 65 mV 的电压走完全程,电场给它多少能量?电压的意思是每个电荷落下来得到的能量,1 V 就是每库仑 1 J。
想好了再看
光子是 4.23×10⁻¹⁹ J。一个电荷是 1.602×10⁻¹⁹ C,乘上 0.065 V,得到 1.04×10⁻²⁰ J。两个数一除,一个光子的能量只抵 41 个离子走完这段电压。
一次开门通过多少个电荷?用第 6 级的 I = g·(V − 0),门开着 10 ms(第 6 章用关闭时间常数 9.5 ms 取整当作门每次开着的时间),单通道电导取文献区间的两端,40 fS 和约 2.4 pS。
想好了再看
电荷等于电流乘时间,得到的是总电量,再除以一个电荷的电量 e,才是电荷的个数。40 fS 时电流是 2.6 fA,10 ms 通过 2.6×10⁻¹⁷ C,约 162 个电荷。2.4 pS 时电流是 156 fA,通过 1.56×10⁻¹⁵ C,约 9.7×10³ 个。这和第 6 章说的「一百多到近一万个」一致。
这些电荷带着的总能量,是一个光子的几倍?
想好了再看
每个电荷 1.04×10⁻²⁰ J,162 个共 1.69×10⁻¹⁸ J,是光子的 4.0 倍;9.7×10³ 个共 1.01×10⁻¹⁶ J,是光子的 240 倍。倍数大于 1,就是这些电荷带的总能量比一个光子带的还多;区间两端的倍数都大于 1,光子付不起。
光子既然付不起,这笔能量是谁出的?
想好了再看
出在细胞自己身上。膜两侧的浓度差靠泵一直维持着,电压也由它们撑着(第 2 章),门一开,这笔本钱就放了出来。光子只做一件事:把门打开。
泵(细菌视紫红质)
光子的能量用来把一个离子推上坡,一个光子对应一个离子。光子没做的事,没有别人替它做,离子自己不会走。
通道(通道视紫红质)
光子的能量只用来开门,离子顺着坡自己走,能量来自细胞事先存好的浓度差和电压。一个光子开一次门,过去一百多到近一万个。
差别在:光子的能量花在推离子上,还是只花在开门上。
打个比方
水库的闸门,拉开插销只要很小的力气,冲出去的水却有很大的力气。水的力气是水库蓄好的水位差,不是拉插销的人给的。光子是拉插销的手,膜两侧的浓度差和电压是水库里的水。
类比失效处:闸门放水,水位会一路下降,水库越放越空。细胞里外的浓度差由泵不停地补着(第 2 章)。水也只往低处流,通道里的离子往哪个方向走,由 V − 0 的正负来定,电压高过 0 mV 时电流反过来。
单通道电导取 1 pS,开 10 ms,膜电位在 −65 mV 时一次开门通过约 4057 个电荷,总能量是一个光子的约 100 倍。把膜电位改成 −30 mV,这两个数各变成多少?
变式:电压不变,还是 −65 mV,把开着的时间从 10 ms 缩成 4.4 ms,电荷数和总能量各变成原来的多少?
电压钳(voltage clamp):用电极把细胞膜两侧的电压固定在实验者指定的值,再测流过的电流。「钳在 −65 mV」就是把膜电位固定在 −65 mV。
甲说:光子推着离子过孔。乙说:离子是被膜电位与浓度推过去的,光只管开门。请设计一个测量,说出甲、乙各预测什么,使一次测量就能把两种说法分开。
变式:保持电压不变,只把光强加倍,甲和乙对「一个开着的通道里的电流大小」各预测什么?
门开着,膜电位恰好被钳在 0 mV,测到的净电流是零。这时孔道里还有离子在穿过吗?为什么净电流是零?
变式:换成只让 K+ 通过的通道,膜电位钳在 −89 mV 附近(37 °C 下按 5 mM 和 140 mM 算出的 K+ 平衡电位),开着时净电流会怎样?
有人想用更少的光子让通道多过些离子。方案甲:把光强加倍。方案乙:设法让每次开门多开一倍时间。就「一次开门通过的电荷数 N」和「总能量是一个光子的几倍 R」这两个量,各方案会怎样?哪个方案让「一个光子换来的电荷」变多?
变式:方案丙:换一种单通道电导大一倍的通道,保持开着的时间不变。N 和 R 怎样变?
答辩:如果我是审稿人
你算的 4 倍到 240 倍,用的单通道电导是文献区间的两端,开 10 ms 是个粗数。如果真实的单通道电导比 40 fS 还小,或者开得比 10 ms 短很多,「光子付不起」这个结论还成立吗?
参考防守(先自己组织语言再看)
结论依赖倍数是否大于 1,所以要看它离 1 有多远。倍数正比于单通道电导和开着的时间的乘积,从 40 fS、10 ms 这一端算起,这个乘积再缩到四分之一,倍数才会掉到 1。这条算术说明通道多半不靠光子推离子,要把它钉死,得去量单通道的电流和开放时间,文献区间的两端差 60 倍,接近两个数量级,正说明单通道电导难量准。
给光开关装上内部状态:视黄醛是反式还是顺式
为什么现在才加它:第 6 级的 I = g·(V − 0) 里,g 是手填的,想开就开,看不出光到底做了什么。现在把「一个光子翻一次视黄醛」写进去,g 由视黄醛的形状决定:反式是关,顺式是开。这是个简化:7.1 里说过,真实的通道门先关上,视黄醛回到全反式要慢得多,这一级先把两件事并成一个计时器,第 8 章再把「门关上了、还没恢复」的那一段单独拆出来。
难点:看着只有几行,错误藏在三处。其一,顺式时再来光子,不能重新计时,否则门会被一串光子一直续命,这和小程序的规则「只有反式才翻得动」矛盾。其二,单位:g 用西门子、V 用伏特,−65 mV 要写成 −0.065,电流才是安培,读数用 fA(10−15 A)才顺手。其三,同一时刻先更新状态再算电流,否则关门的那一步会多算一个时间步。这里的 HOLD 是写死的,第 8 级会让它变成「每一步有一定概率自己翻回去」。
自己验:V = −65 mV,0 ms 来一个光子,应该得到 0 ≤ t < 10 ms 内 I = −65 fA(负号是内向),t = 10 ms 起 I = 0;这 10 ms 通过的电荷 6.5×10⁻¹⁶ C,除以 1.602×10⁻¹⁹ C,应该得到约 4.1×10³ 个电荷。再在 5 ms 加一个光子,关门时刻应该还是 10 ms;在 12 ms 再加一个,12 到 22 ms 应该再开一次,总开放时间 20 ms。把 V 改成 +20 mV,开着时应该得到 +20 fA(向外)。四个都对上,这一级就成了。
对你而言未知六个标出的位置里,哪一个离视黄醛最近?
答案就在 6EID 的坐标文件里,只是这一章没有算。文件里每个原子一行,有三个坐标,单位是 Å,K257 那一行(残基名 LYR)后面连着视黄醛的原子。两点之间的距离,用勾股定理就能算出来。文件里 LYR 257 的原子名不是视黄醛的标准编号:和 NZ 相连的 C1 是视黄醛的末端碳 C15,往里依次是 C2(C14)、C3(C13),这是本站按原子间距离重新认出来的。LYR 257 还有 A、B 两套位置,A 套占 70%。
先做这一步:打开 RCSB 蛋白质数据库的 6EID 页面(rcsb.org/structure/6EID),下载 PDB 格式的文件,只看 A 链,读出 LYR 257 的 A 套位置里文件名为 C3 的那个碳(视黄醛的 C13)的坐标,和 E123、C128、D156、H134 各自的 Cα 坐标算距离,按远近排序,再回到场景里看看,这个排序和你眼睛看到的远近对不对得上。
读的时候要小心:晶体是一张静态照片,一次开门的账是本站的算术
6EID 是一个时刻的样子,视黄醛的拧动和蛋白质的几个中间态没有在这张照片里一一给出,Becker-Baldus 等 2021 年的论文写到,2017 年的 X 射线结构没有定出暗态里视黄醛的具体形状。坐标文件里还有占 30% 的另一个视黄醛构象,那是整理坐标时的建模选择,场景里没有画它,也不要把它当成光循环的中间态。七根螺旋的编号是按序列顺序数的,文件里只有螺旋的序号。7.3 里的 4 倍到 240 倍是本站用文献区间两端算出来的,开着 10 ms 是用关闭时间常数 9.5 ms 取的整数,单通道电导的两端差 60 倍,所以它说明的是数量级,不是某个通道的实测值。小程序里的 10 ms 计时器把门关上和视黄醛复原并成了一件事,真实的通道里这两件事不同时。
留给你的问题
同一个神经元里,把光强加倍,总的光电流一定加倍吗?把膜电位从 −65 mV 拉到 −30 mV 呢?分别用本章的哪一条道理回答,各自改变的是「开着的门有多少」,还是「一扇开着的门里的电流有多大」?
不看材料,写下这一章的三堵墙
第一堵:光子不是弹珠,它被视黄醛这一个分子整个吸收,用来把 C13=C14 双键从反式拧成顺式,门是蛋白质跟着视黄醛的新形状变形才开的。第二堵:光子的能量付不起离子过孔的账,一次开门通过的离子带着的总能量,是一个光子的 4 倍到 240 倍,这笔能量是细胞事先存好的浓度差和电压。第三堵:既然离子是被 (V − 0) 和浓度推过去的,光唯一能动的就是开着的门有多少,电流的方向和单个门里的大小不归光管。
第8章 开、关、累:光开关的节奏
灯一直亮着,电流为什么先冲高,再自己掉下来
开篇故事第 8 集 · 灯一直亮着,电流却往下掉一束蓝光的十八天
“一条平线,我拿一天半机时来赌它。”衣藻本藻把一摞打印出来的论文放在光台边上,指着台面正中那盏一直亮着的蓝灯,蓝光落在白纸上,字迹泛着淡淡的青色,“灯不灭,电流就不会往下掉。”
半个小时之前,他在光台上把昨天的结论又推了一遍:光子把视黄醛翻成顺式,门就开,顺式撑一阵又翻回反式,灯一直亮着,翻回去的马上又被翻开,所以通道只有关和开两种姿势。他算得很认真,Ga 取 0.40,Gd 取 0.104,开着的占比等于 0.40 除以 0.40 与 0.104 的和,约 0.79,爬到这个高度就停住,不会冲过头,是一条漂亮的平线。蓝光过敏想不出哪里有毛病,电极老炮只问了一句灯会不会越用越暗,最后是岑老师把这个赌接了下来。
系统提示持续光照 1000 毫秒,开着的通道占比在约 4.7 毫秒时冲到峰值 0.63,之后一路下滑,停在 0.22 的平台上,稳态只有峰值的 0.35。
系统提示衣藻本藻预测的平线是 0.79,这一局判负,扣除一天半机时。
衣藻本藻盯着那条下滑的曲线,把论文翻到第三页又翻回来,找不出哪一行写着该有一条平线。“灯没有变暗,光强从头到尾是一个数,”他的声音有点发干,“通道一个也没有少,凭什么往下掉?”岑老师拿起桌上吃完的饭盒晃了晃。“开过的通道关上以后,要先落进一个累了的状态,在暗中等几秒才能回来。用过的饭盒要先洗,洗好了才能再装饭,洗得慢,能用的饭盒就越来越少。”
她按下开关,光台里的灯灭了,倒计时一声一声地咔嗒响。隔 5 秒再亮,第二次的峰只回到第一次的 0.69,隔 15 秒才回到 0.96,要是隔得很短,第二次的峰只有第一次的 0.35。衣藻本藻看着数字一个一个跳出来,把论文上写着“光一亮就是平的”那一页折了一个角,认了这笔账。
灯一直亮着,电流却自己往下掉,一天半机时就输给了一条下坡路
1L许一舟我把一千毫秒的曲线整理成了一张表,两态模型是 0.79 的平线,三态模型是先冲到 0.63 再落到 0.22,两条线叠在一起看得最清楚。
2L电极老炮我先问一句,灯会不会用着用着变暗了,光强有没有人拿去量一量,对照组呢?
3L蓝光过敏我觉得是通道被强光烧坏了,光开得太大,通道一批一批报废,所以电流越来越小。
4L衣藻本藻3L 不对,光台里的光强从头到尾是恒定的,电流掉下来只能从通道一侧找原因,毁掉的通道也不会自己回来,可 Boyden 量到暗中等几秒电流就恢复了,时间常数是 5.1 ± 1.4 s。
5L岑(带教认证)4L 说对了。愿赌服输的人一天半机时照扣,下次再抠字眼,先抠一抠自己的模型。
熄灯之前,岑老师在光台边缘写下了一道题:明天光台里要复现 2005 年的那篇论文,每隔 50 毫秒闪 10 毫秒的蓝光,连闪 20 次,第 20 次的峰会比第 1 次高、一样,还是低?
系统结算 · 本章考点
- 持续光照下,电流先冲到一个高点再落到较低的平台;Boyden 等 2005 的峰值光电流是 496 ± 336 pA,稳态是 193 ± 177 pA,稳态约为峰值的 0.39
- 只有关 C、开 O 两个状态的模型,光一直亮时开着的占比爬到平台就停住,峰和平台是同一个数,画不出先高后低;要加第三个状态 D(累了),开过的通道关上后先落进去等一阵
- 本站三态模型在 10 mW/mm² 蓝光下:峰值 0.63,约 4.7 ms 到峰,稳态 0.22,稳态 / 峰值 0.35
- 灭灯后电流指数衰减,关闭时间常数约 10 ms(实验 9.5 ± 2.8 ms,三态里 1/Gd = 9.6 ms)
- D 回到 C 的暗中恢复时钟约 5 s(实验 5.1 ± 1.4 s,1/Gr0 = 5.0 s),比关门的时钟慢约 500 倍;两次 500 ms 光照隔 5 s,第二峰回到第一峰的 0.69,隔 15 s 回到 0.96
第 7 章把光开关写成视黄醛的一次翻转:反式是关,顺式是开,顺式撑一阵就翻回反式。照这个写法,灯一直亮着,光子源源不断,翻回反式的马上又被翻成顺式,门就该一直开着,电流是一条平线。可是把蓝光对准一个表达了 ChR2 的神经元,持续照一阵,记下来的电流先冲到一个高点,随后自己往下掉,停在一个低得多的平台上。灯一关,电流也不会一下归零,隔不久再照一次,第二下比第一下小。这一章拆开光开关的节奏,三个状态、三个速率就够用了。
学完这一章你应该能做到
- 说出持续光照下光电流先冲高、再落到较低平台的样子,并说明只有开、关两个状态为什么画不出它
- 用关、开、累三个状态和三个速率,描述一次光照和随后的暗中恢复
- 从关灯后电流的指数衰减读出时间常数约 10 ms,从两次闪光的间隔读出暗中恢复约 5 s
- 写出三态模型每一小步的更新规矩,让 g 由开着的通道占比决定
这一章给虚拟实验台的光开关加上节奏。第 7 级里一个光子翻一次视黄醛,顺式撑 10 ms 就按写死的时间翻回去,讲的是一个通道。一个细胞里有成千上万个通道,各开各的、各关各的。这一级把它们分成关、开、累三堆,每一小步按速率把一部分从一堆搬到另一堆,开着的那一堆乘上全部通道同时开着时的电导 G_MAX,就是 g。
8.1 光一直亮着,电流为什么先冲高,再自己掉下来?
用电极把一个表达了 ChR2 的神经元的膜电位钉在一个固定的值(第 7 章的电压钳,只记电流),持续照 1 秒蓝光,从头到尾记录向内的电流。你觉得电流曲线长什么样?
答完再看
第二个对。Boyden 等 2005 在培养的大鼠海马神经元里,把膜电位钳在 −65 mV,用 8–12 mW/mm² 的蓝光,记到的峰值光电流是 496 ± 336 pA,稳态光电流(落到平台上的电流)是 193 ± 177 pA,± 后面是标准差,表示细胞之间差多少。第一个错在把门想成一旦打开就一直开着,通道开了一阵之后会换一种状态。第三个错在只看打开、不看关上,被打开的通道不会只增不减,下面会看到进和出相抵的那个平台。
最顺手的想法,是光开关只有两种姿势。通道关着,记作 C,开着,记作 O。光子一到,关着的通道以速率 Ga 变成开着的;开着的通道自己以速率 Gd 变回关着的,第 7 级的小程序里顺式撑 10 ms 就翻回反式,就是这个意思。速率的单位是每毫秒(ms−1),0.1 ms−1 的意思是每过一毫秒,约有一成的通道换一次姿势,数越大换得越快。光一直亮着,每个通道开了又关、关了又开,任何一刻都有一部分是开着的。
这个想法认真算一遍,结果很干净。灯一亮,通道全关着,只有进没有出,开着的占比往上升;占比越大,关上的越多,直到每毫秒打开的和关上的一样多,占比就停在一个平台上。它是从下面一路逼近平台的,不会冲过头。所以不管 Ga 和 Gd 取多少,两态模型的曲线都是爬上去、停住,不会出现比平台更高的峰。
两态模型里,Ga = 0.40 ms−1,Gd = 0.104 ms−1(它们是本章后面的三态模型在 10 mW/mm² 蓝光下的两个速率)。光一直亮着,平台上开着的通道占几成?平台上每毫秒打开的和关上的一样多。
变式:光变暗,Ga 降到 0.10 ms−1,Gd 不变,平台变成几成?光变暗,平台是升高还是降低?
实验怎么说?Boyden 等 2005 给培养的大鼠海马神经元持续照 8–12 mW/mm² 的蓝光,记到的峰值光电流是 496 ± 336 pA,稳态是 193 ± 177 pA。两个平均数相除约 0.39,这个比值是本站用两个平均数相除算的。± 后面的数和平均数差不多大,细胞之间差得很远,所以只能说稳态是峰值的四成上下。峰比平台高这么多,两态模型取什么速率都画不出来。
实验里稳态只有峰值的四成上下,两态模型怎么调都画不出来。你觉得光开关里至少还缺什么?
答完再看
第三个对。第一个错在光强:实验里的光是恒定的,电流掉下来,只能从通道一侧找原因。第二个错在通道被毁掉就回不来,而 Boyden 等量到的恢复时间常数是 5.1 ± 1.4 s,暗中等几秒,电流就回来了,毁掉的通道不会这样。第三个选项接上了第 7 章的结论:孔道关上以后,蛋白质回到出发状态要慢得多,那段「关上了、还没恢复」的时间,就是下面 D 这一堆要装的东西。
缺的东西可以倒推出来。要让平台比峰低,开过的通道关上之后,就不能全都马上回到准备好的那一堆。那就给它们两条去路。一部分回到 C,另一部分走进一堆暂时打不开的 D,在里面等一阵才回 C。峰和平台就都有了解释。灯亮的一刻,通道全在 C 里,个个准备好,一批批被打开,占比冲得很高;开了又关的通道一批批落进 D,能被打开的越来越少,占比往下掉,直到 O 往 D 里送的和 D 往 C 里回的一样多,才停在平台上。
去敏化(desensitization,口语里叫「累了」,记作 D):通道被光打开、关上之后,进入的一个暂时不再响应光的状态,要在暗中等一阵才回到能被打开的状态。Nagel 等 2003 年的摘要说的就是 ChR2 在持续光照下去敏化,降到较小的稳态电导。它和第 3 章钠门的失活很像,都是开过之后要等一阵才能再开,只是这里等得久得多。
三件事请自己做一遍。先把光照时长拨到 1000 ms,读「峰值」「稳态」「稳态 / 峰值」三个数,看冲高再回落有没有出现。这里的峰值和稳态是相对值,电流正比于开着的通道占比,不是 pA。再勾上「去掉累了这一态」,看峰有没有了,「稳态 / 峰值」变成多少。最后取消勾选,把双脉冲间隔拨到 5 s,读「第二峰 / 第一峰」,再拨到 15 s。
图 8-1 里每个箭头一个速率。C 到 O 的 Ga 由光子带来,光越亮越大。O 到 D 的 Gd,决定灯灭后门关上的快慢。D 回到 C 的 Gr,在暗中很小,要等几秒。三个状态、三个速率合起来,叫三态模型。
两态模型(C、O)
关上的通道马上又能被光打开,C 和 O 之间来回倒。光一直亮着,开着的占比爬到平台就停住,平台就是最高点,峰和平台是同一个数。
三态模型(C、O、D)
关上的通道先落进 D 等一阵,才回到 C。灯一亮,C 里满满的通道先被打开,冲到峰;之后 D 越积越多,开着的占比落到平台,平台比峰低。
差别在:开过的通道关上之后,是马上又能被光打开,还是要先在 D 里等一阵。
图 8-2 把两种模型在 10 mW/mm² 蓝光下的曲线画在一起,虚线爬到平台就停,实线冲到峰再落到平台。
打个比方
一家餐馆开门营业,所有桌子都空着,对应 C。客人一拥而入,坐着客人的桌子数,对应 O,很快冲到最高。客人吃完离席,桌子要先收拾才能再坐人,待收拾的桌子对应 D。收拾得慢,能坐人的空桌越来越少,有客人的桌子数从最高处往下掉,直到每分钟新坐下的和每分钟离席的一样多,才稳在一个较低的数上。
类比失效处:餐馆里客人坐下的快慢由客人决定,通道里由光强决定,光越强开得越快,本章这组模型参数里,光还会加快 D 回到 C。桌子由服务员收拾,通道在 D 里怎么回来,实验室里还在争论,D 对应光循环里的哪一个中间态,并没有定论。
有人说:不用加新状态,把两态模型的 Ga 调大、Gd 调小,也许就能让稳态降到峰值的四成。这个办法行不行?为什么?
变式:假想灯亮之前,两态模型里就已经有九成的通道开着,比平台还高。这时灯亮,曲线会不会从高处往下掉?这和实验里的掉落是同一回事吗?
请设计一次测量,只凭它就能把两态模型和三态模型分开,并说出两个模型各预测什么。
变式:不允许改暗间隔,只能改光的强度,再用一次长时间的持续光照,还能把两个模型分开吗?该读哪个数?
答辩:如果我是审稿人
电流从峰往下掉,也可能是表达的蛋白被强光漂白了、细胞状态变差了。凭什么说通道是进了一个可逆的第三状态?
参考防守(先自己组织语言再看)
漂白和变差都不会在暗中几秒内自己好起来。Boyden 等量到的暗中恢复时间常数是 5.1 ± 1.4 s,也就是等几秒,电流就恢复了。Nagel 等 2003 的摘要还写到,胞外 H+ 和负膜电位会加快从去敏化中恢复,毁掉的蛋白不会因为环境条件变一变就回来。这些证据说明有一个可逆的状态就够用了,说明不了这个状态在分子里具体是什么样,它在光循环里的位置,实验室里至今还有争论。
8.2 关灯之后,电流多快消失,通道要多久才能再用?
灯一关,电流不会像拉掉电闸那样一下归零。开着的通道什么时候翻回关闭,各有各的时刻,每个开着的通道在每一小段时间里关上的机会都一样,不管它已经开了多久,所以每一小段时间里,总有固定的一小部分翻回去。翻回去的比例不变,剩下的越来越少,翻回去的个数也越来越少。这就是第 0 章讲过的指数衰减,每过一个时间常数,电流剩下约 37%,过三个,剩下约 5%。
三态模型里,O 只有 Gd 这一个出口,每毫秒走掉 Gd 这么大的一份。对照第 0 章 e−t/τ 的写法,时间常数就是 Gd 的倒数,1/0.104 ms−1 = 9.6 ms,约 29 ms 后电流只剩 5%。这个数拿去和实验比一比。
实验里量到的关闭时间常数
9.5 ± 2.8 ms,出自 Mager 等 2018 的表 1:一种培养的细胞 NG108-15,膜电位 −60 mV,473 nm 的饱和光 23 mW/mm²,n = 3,也就是测了三个细胞。
三态模型里的 1/Gd
9.6 ms。Gd = 0.104 ms−1 来自一组来源没有文档的拟合,拟合就是调模型的参数,让算出的曲线贴上一组实验曲线。
差别在:一个是三个细胞里量到的,一个是调参数拟合出来的。两个数很近,只能说数量级对得上,算不上验证。
PyRhO 里还有一个四态模型,参考文献里归在 Nikolic 等 2009 名下,它把开着的状态分成快慢两种,默认参数下两种的关闭时间常数分别约 9.5 ms 和 72 ms(本站按 1/Gd 算的),所以关灯后的衰减会拖一个更慢的尾巴,实验室里可以切成四态看看。
开着的通道里,每过一小段时间,就有固定的一小部分关上。灭灯一刻电流是 100 pA,10 ms 后降到约 37 pA。再过 10 ms 还剩多少?总共过多久,电流会降到 5 pA 上下?
变式:时间常数换成 20 ms,灭灯后 20 ms 电流还剩多少?
关闭时间常数(τoff):灯灭后,电流衰减到灭灯一刻的 e−1,约 37%,所用的时间。
再看灭灯之后的第二个时钟。关上的通道落在 D 里,D 回到 C 的速率在暗中只有 Gr0 = 2×10⁻⁴ ms−1,倒数是 5.0 s。Boyden 等 2005 量到的暗中恢复时间常数是 5.1 ± 1.4 s(n = 9)。关门的时钟约 10 ms,恢复的时钟约 5 s,相差约 500 倍。Boyden 等量这个时钟,用的是成对的 500 ms 光脉冲,中间隔 1 到 10 s 的暗,比较两次的峰。实验室里的双脉冲和图 8-3,照的是同一种做法。
暗中恢复的时间常数按 5 s 算。只用这个数估一估:两次光照之间至少隔多久,第二次的峰才恢复到第一次的 95% 左右?
变式:要恢复到 99% 呢?取 e−4.6 ≈ 0.01。
间隔很短时,第二次的峰只有第一次的 0.35,正好是平台的高度,因为通道几乎都还留在 D 里。隔 5 s 回到 0.69,隔 15 s 回到 0.96。下一章里,一串间隔只有几十毫秒的光脉冲,会一个接一个地撞上这个 5 s 的时钟。
| 量 | 实验里测到的 | 三态模型里的对应值(本站按 10 mW/mm² 蓝光算) |
|---|---|---|
| 峰值光电流 | 496 ± 336 pA(Boyden 等 2005,大鼠海马神经元,8–12 mW/mm²) | 开着的通道占比 0.63,约 4.7 ms 出现 |
| 稳态光电流 | 193 ± 177 pA(同上) | 0.22 |
| 稳态 / 峰值 | 约 0.39(本站用两个平均数相除) | 0.35 |
| 关闭时间常数 | 9.5 ± 2.8 ms(Mager 等 2018,NG108-15 细胞,473 nm、23 mW/mm²,n = 3) | 1/Gd = 9.6 ms |
| 暗中恢复时间常数 | 5.1 ± 1.4 s(Boyden 等 2005,n = 9) | 1/Gr0 = 5.0 s |
8.3 三态模型每一小步怎么更新,才不会多出或少掉通道?
想知道灯亮后第 3 毫秒有多少通道开着,没法一眼看出来,只能从灯亮的那一刻起,一小步一小步往前推。每一小步要把三堆通道各挪一点,规矩只有三句,错一句,通道的总数就会变。第一句,先看灯亮着还是灭着,定下速率。灯亮着,Ga 和 Gr 由光强算出来;灯灭着,Ga 是 0,Gr 退到暗中的 Gr0。第二句,三股搬运量,从 C 到 O、从 O 到 D、从 D 到 C,各等于速率乘这一步开头那一堆的量,再乘步长 Δt。第三句,三股都算好之后,再一起加减,C 减去出去的、加上回来的,O 和 D 同理。算完还要查两件事,三堆之和是不是 1,有没有哪一堆小于 0。
边算边更新
我先看到灯刚亮的第一步,只有 C 到 O 一股在动,想着先把 C 减下去,再拿减过的 C 去算 O 多了多少。C = 1 − 0.0401 = 0.9599,O 增加 0.401 × 0.9599 × 0.1 = 0.0385,三堆加起来 0.9984,少了 0.0016。每走一步都有一点通道凭空消失,步数一多,三堆之和就偏离 1 了。
用开头的值一起算
我先看到三股搬运量,决定都用这一步开头的 C、O、D 算:C 到 O 是 0.401 × 1 × 0.1 = 0.0401,O 和 D 开头是 0,另两股是 0。再一起加减,C = 0.9599,O = 0.0401,D = 0,加起来正好是 1。我最怕把先算出的新值带进后面的式子,所以三股都先写在纸上,再改三堆。
差别在:每一股搬运量用的是这一步开头的值,还是已经改过的值。
把这条规矩写成式子:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| ΔNX→Y | 这一步从 X 搬到 Y 的通道占比 | 三股搬运量,各算一次 |
| GXY | X 到 Y 的速率,单位 ms−1 | 本章有 Ga、Gd、Gr 三个 |
| NX | 这一步开头 X 里的占比 | 用开头的值,不用改到一半的值 |
| Δt | 步长,单位 ms,本章取 0.1 | Ga·Δt 要远小于 1 |
某一步开头 C = 0.5、O = 0.3、D = 0.2,Ga = 0.4 ms−1,Gd = 0.1 ms−1,Gr = 0.03 ms−1,Δt = 0.1 ms。这一步之后 C、O、D 各是多少?
变式:灯灭了,Ga = 0,Gr 退到 0.0002 ms−1,开头不变,Gd 和 Δt 也不变,一步之后各是多少?
速率里要填数。本章借用开源模拟包 PyRhO(Evans 等 2016)里 ChR2 三态模型的默认参数。这是一组拟合出来的参数,来源没有文档,数据取自哪种细胞、什么温度、什么波长,包里和论文里都没写,所以只用来让模型走起来,不当作 ChR2 的性质。光强对 Ga 和 Gr 的影响,用一个会饱和的函数写(光强大到一定程度,速率就不再增加):
| 符号 | 是什么 | 直觉 |
|---|---|---|
| Hn(φ) | 光强对速率的影响,在 0 到 1 之间 | 光越强越接近 1,不会无限长大 |
| φ | 光子通量,单位光子 mm−2 s−1 | 10 mW/mm² 的 470 nm 光约 2.37×10¹⁶ |
| φm | H 等于 1/2 时的光子通量,取 5×10¹⁷ | 一组拟合出来的数 |
| ka、kr、p、q、Gr0 | 依次取 5 ms−1、0.1 ms−1、0.8、0.25、2×10⁻⁴ ms−1 | 灯灭时 H = 0,Ga = 0,Gr = Gr0 |
灯亮着:第 100 ms 的一步
我先看到灯亮着,10 mW/mm² 的 470 nm 光,每秒每平方毫米 0.01 J,除以一个光子的 4.23×10⁻¹⁹ J,得 φ = 2.37×10¹⁶。代入式 8-2:φ/φm = 2.37×10¹⁶ ÷ 5×1017 = 0.0474,Hp = 0.0803,Ga = 5 × 0.0803 = 0.401;Hq = 0.318,Gr = 2×10⁻⁴ + 0.1 × 0.318 = 0.0320。Gd 与光无关,仍是 0.104,不能用暗中的 Gr0。这时 C = 0.0575,O = 0.2218,D = 0.7206。C 到 O 是 0.401 × 0.0575 × 0.1 = 0.00231,O 到 D 是 0.104 × 0.2218 × 0.1 = 0.00231,D 到 C 是 0.0320 × 0.7206 × 0.1 = 0.00231。三股一样大,进出相抵,三堆不再变,这就是平台。最怕把 Gr 写成 Gr0,D 到 C 一下少了一百六十倍。
灯灭着:灭灯后的第一步
我先看到灯灭了,Ga = 0,Gr 退到 Gr0 = 2×10⁻⁴。起点取平台上的 C = 0.0575,O = 0.2218,D = 0.7206。C 到 O 是 0,O 到 D 是 0.104 × 0.2218 × 0.1 = 0.00231,D 到 C 是 2×10−4 × 0.7206 × 0.1 = 0.0000144。O 一步少了 1.04%,正好是 Gd × Δt,D 回到 C 的那一股小到几乎看不出,这就是关门快、恢复慢。
差别在:灯亮着时 Ga 和 Gr 由光定,三股搬运量能相抵;灯灭着时 Ga 为 0,O 只出不进,Gr 只剩暗中的一点点。
自己推一遍:平台是怎么定下来的
灯在 0 ms 亮起,C = 1、O = 0、D = 0,Δt = 0.1 ms,Ga = 0.401 ms−1。三股搬运量各是多少?一步之后三堆各是多少?
想好了再看
C 到 O 是 0.401 × 1 × 0.1 = 0.0401。O 和 D 开头都是 0,所以 O 到 D、D 到 C 都是 0。C = 1 − 0.0401 = 0.9599,O = 0.0401,D = 0,加起来是 1。
灯一直亮着,过一阵三堆都不再变。这时三股搬运量之间有什么关系?
想好了再看
C 不变,说明回来的 (D 到 C) 等于出去的 (C 到 O)。O 不变,说明进来的 (C 到 O) 等于出去的 (O 到 D)。三股一样大:Ga·C = Gd·O = Gr·D,两边的 Δt 约掉了。
由这个关系,写出 C : O : D。
想好了再看
把这个共同的值记作 J,那么 C = J/Ga,O = J/Gd,D = J/Gr,所以 C : O : D = 1/Ga : 1/Gd : 1/Gr。每一堆的大小和它出口的速率成反比,出口越窄,堵在里面的通道越多。
代入 Ga = 0.401、Gd = 0.104、Gr = 0.0320,求平台上 O 的占比。D 为什么占了大半?
想好了再看
三个倒数是 2.49、9.62、31.2,加起来 43.3。O = 9.62/43.3 = 0.222,C = 0.058,D = 0.721。Gr 最小,D 的出口最窄,所以堵的通道最多。0.222 是峰值 0.63 的 0.35 倍,和实验室里的「稳态 / 峰值」读数一致。
有人为了省时间,把步长从 0.1 ms 改成 5 ms,其余照旧,Ga = 0.401 ms−1,灯亮的第一步从 C = 1、O = 0、D = 0 起。会算出什么?这违反了规矩里的哪一条检查?
变式:灯很弱时 Ga 只有 0.01 ms−1,步长 5 ms 会不会也算出负数?这样取步长在别的方面还有问题吗?
假想一个变体,关门速率 Gd 加倍成 0.208 ms−1,Ga = 0.401、Gr = 0.0320 不变。就平台上开着的占比、关灯后的时间常数这两个量,各怎样变?这个变体换来了什么,付出了什么?
变式:反过来,Gd 减半成 0.052 ms−1,平台上开着的占比和关灯后的时间常数各变成多少?
给光开关装上节奏:关、开、累三堆通道
为什么现在才加它:第 7 级的光开关是一个通道,翻成顺式就开 10 ms,时间是写死的。一个细胞里有成千上万个通道,各自随机地开、关,有的还累着。这一级不跟踪每个通道,只记三堆通道各占多少,用式 8-1 一步步更新,g 由开着的那一堆给出。
难点:错误藏在三处。其一,更新顺序,三股搬运量要先算好再一起加减,否则三堆之和会偏离 1。其二,单位,速率是 ms−1,dt 是 ms,phi 的单位要和 PHI_M 一致;10 mW/mm² 的 470 nm 光,每秒每平方毫米约 2.37×10¹⁶ 个光子,用 1 mW/mm² 约 2.4×10¹⁵ 个乘 10 也行,差一两个百分点。其三,Gr 里有光依赖的项,灯灭时 phi = 0,Gr 退回 G_R0,别把灯亮时的 Gr 带进暗中。第 7 级里写死的 HOLD,在这里变成了每一步有 Gd·dt 的比例自己翻回去。第 9 章会把这一级的 I 接到神经元上,当作第四股电流。
自己验:phi = 2.37×10¹⁶,dt = 0.1 ms,从 C = 1 起连续亮 1000 步(100 ms)。第 1 步后应该得到 C = 0.9599、O = 0.0401;第 2 步后 C = 0.9214、O = 0.0782、D = 0.0004,每一步三堆之和都是 1。O 在 4 到 5 ms 之间到最高,约 0.63,之后往下落,100 ms 时 C、O、D 约 0.058、0.222、0.721。G_MAX = 10 nS、V = −65 mV 时,峰处 I 约 −410 pA,100 ms 处约 −144 pA。再把 phi 改成 0 走 100 步(10 ms),O 应该降到约 0.078,是灭灯时的 0.35 倍。这些都对上,这一级就成了。
对你而言未知步长要多小,峰值才不再变?
这一级的 dt 取 0.1 ms,是我们挑的,没有告诉你它小得够不够。答案哪里也没写,要自己跑:dt 依次取 2 ms、1 ms、0.5 ms、0.1 ms、0.01 ms,每次记下 O 的最大值和它出现的时间,看从哪一个 dt 起,这两个数不再变。
先做这一步:用 2 ms 和 0.5 ms 各跑一次,看第一步里 Ga·dt 是多少、有没有哪一堆变成负数,再想想这和 q8-7 的检查是不是同一回事。
读的时候要小心:三态里的数是一组来源没有文档的拟合,D 在分子里是什么还没有定论
PyRhO 的默认参数没有写明数据是野生型还是 H134R、什么细胞、什么温度、什么波长,所以实验室和图 8-2 里的 0.63、0.22、9.6 ms、5.0 s,只能说明模型的形状和数量级,和实验数的接近算不上验证。稳态占峰值的比例在不同实验里差得不小:Boyden 等的两个平均数给出约 0.39,本站模型给 0.35,另一篇用 HEK293 细胞(一种培养的人肾细胞)的论文(Lin 等 2009)的摘要写失活 77%,折成稳态约为峰值的 0.23。真实的光循环里有好几个中间态,Becker-Baldus 等 2021 命名了 P1 到 P4(第 7 章),其中与去敏化相关的 P4 在循环里的位置,实验室里还有两种说法,三态模型里的 D 只是把这件事包成了一个箱子。
留给你的问题
一个表达了 ChR2 的神经元,每 50 ms 被 10 ms 的蓝光照一次,连续照 20 次。按这一章的模型,第 20 次光照里开着的通道的峰值,会比第 1 次高、一样,还是低?为什么?这对「每一次光脉冲都让神经元放一个电」意味着什么?
不看材料,写下这一章的三堵墙
第一堵:持续照光,电流先冲高再落到平台,稳态只有峰值的四成上下,只有关、开两个状态的模型无论取什么速率都画不出来,所以要有第三个状态 D,通道开过之后先落进去等一阵。第二堵:灭灯后门是慢慢关上的,每一小段时间里关掉固定的一小部分,电流指数衰减,时间常数 1/Gd 约 10 ms。第三堵:落进 D 的通道在暗中回到 C 的时钟是 1/Gr0 约 5 s,比关门的时钟慢约 500 倍,所以第二次光照的峰要等几秒才恢复。
第9章 2005:光开关第一次装进神经元
二十个脉冲,闪得太快就只放一次电
开篇故事第 9 集 · 二十个脉冲只放出一个电一束蓝光的十八天
光台里的 20 个蓝色脉冲一个接一个亮起来,每亮一次就咔嗒响一声,二十声咔嗒里,只有第一声后面跟着一个红色的放电标记,其余十九个脉冲,膜电位都只抬了几毫伏。
半个小时之前,岑老师把 2005 年那篇论文铺在光台上,说今天要在光台里复现它:一皿虚拟的大鼠海马神经元,带荧光的在显微镜下发黄绿色的光,蓝光是 8 到 12 mW/mm²。论文里写的是,持续照 1 秒,峰值光电流平均 496 ± 336 pA,稳态 193 ± 177 pA,第一个动作电位出现在光亮后 8.0 ± 1.9 ms,同一个神经元重复照,抖动只有 0.5 ± 0.3 ms。光台里的一切都是虚拟的,岑老师只要求一件事,报告交上去之前,每个人先把预测写下来。
许一舟写得干脆。“能拦住放电的只有神经元自己的不应期,”他把第 3 章的数念了一遍,“同样大的第二个脉冲,晚 10.6 毫秒以上就能再引起放电,40 Hz 的间隔是 25 毫秒,比它长得多,每个脉冲的光又一样亮,二十个脉冲就该放二十个电。”电极老炮咧了咧嘴,说他不信光开关会这么听话,愿意拿复现报告的署名位置来赌,谁输谁的名字排在最后一位。许一舟找不出算式里的毛病,于是答应了。
系统提示表达量取默认值,10 mW/mm² 的蓝光,5 Hz 的 20 个脉冲引出了 20 个动作电位,40 Hz 的 20 个脉冲只引出了 1 个。
系统提示许一舟的赌约判负,复现报告上许一舟的署名排到了最后一位。
许一舟把曲线放大了看,第一个脉冲之后,每一个脉冲都把膜电位抬了几毫伏,却没有哪一个越过阈值,他喃喃地说不应期早就过去了。岑老师把一杯凉了的茶放在光台边上。“你算对了不应期,它拦不住 40 Hz。放电变稀是两件事相乘,另一件是光开关累了,第 2 个以后的脉冲,推力只剩第 1 个的 0.3 倍左右。5 Hz 时神经元恢复得很彻底,这点推力够用,40 Hz 时脉冲之间只隔 15 毫秒,神经元没缓过来,同样弱的推力就推不过去。”
光台复现 2005 年的脉冲实验,40 Hz 的二十个脉冲只放出一个电,许一舟的算盘少算了什么
1L蓝光过敏我觉得就是不应期的事,神经元放完一个电要歇一歇,脉冲排得太密,它歇不过来,当然放得少。
2L电极老炮1L 不对,不应期只有十来毫秒,40 Hz 两个脉冲隔 25 毫秒,早就歇过来了,只靠它,30 Hz 乃至 40 Hz 都不该跟不上,一定还有别的东西在拖后腿。
3L衣藻本藻我翻了原文,Boyden 他们测的是 5 到 30 Hz,从原文图上读出来大约是 19、16、7、4,40 Hz 原文没有测,光台里的悬崖比原文陡,只能拿趋势,不能拿数。
4L许一舟我只算了神经元的那一半,光开关累了这一半根本没写进预测,下次先问清楚它一共有几个状态。
5L岑(带教认证)4L 的账补全了,署名栏已经排好,许一舟在最后一位。
岑老师在署名栏旁边贴了一张便签,明天光台里会悬着一小块组织,橙、青、灰三种细胞挤在一起,光斑落下去,亮起来的会是哪一种?
系统结算 · 本章考点
- 2005 年 8 月 14 日在线发表的论文:培养的大鼠海马神经元,蓝光 8–12 mW/mm²,持续照 1 s,峰值光电流 496 ± 336 pA,稳态 193 ± 177 pA
- 第一个动作电位的潜伏期 8.0 ± 1.9 ms,同一个神经元重复照的抖动 0.5 ± 0.3 ms;时刻的误差约等于噪声除以坡度,光一亮的陡坡让它又快又准
- 只靠不应期解释不了放电变稀:第二个脉冲晚 10.6 ms 以上就能再引起放电,而 40 Hz 的脉冲间隔是 25 ms
- 放电变稀是两件事相乘:光开关累了,第 2 个以后的脉冲 O 峰值只有 0.17 到 0.19,第 1 个是 0.63,推力只剩约 0.3 倍;高频下神经元又没恢复完
- 论文测了 5 到 30 Hz,频率越高放电越少;从原文图上读出来大约是,20 个脉冲里放电的个数 5 Hz 约 19,10 Hz 约 16,20 Hz 约 7,30 Hz 约 4,这是读图估计
- 本站实验室里 5 / 10 / 20 / 30 / 40 Hz 下 20 个脉冲放电 20 / 20 / 20 / 10 / 1,趋势和论文一致,形状更陡,只当趋势用
到第 8 章为止,光开关待过的地方有三类,藻的细胞,爪蟾卵母细胞这样的容器,还有我们自己的模型。神经元和它们都不一样。它有钠门和钾门,放完一次电要等一阵才能再放,是一个活的细胞,装进一个外来的膜蛋白之后能不能照常工作,没有人能替它回答。博伊登 2011 年回忆,2004 年 8 月 4 日凌晨约 1 点,他把一皿表达了 ChR2 的神经元放到显微镜下,对着一个发荧光的神经元打开了蓝灯。2005 年 8 月 14 日,写着这件事的论文在线发表。这一章跟着这篇论文,走过它的几个问题:光能不能让神经元放电,放得有多准,装了光开关的神经元还健不健康,脉冲排得一密,为什么就跟不上。
学完这一章你应该能做到
- 说出 2005 年的实验在装进神经元之前要回答的三件事,以及各自得到的答案
- 用「表达组对不表达组」的对照,检验装进一个外来蛋白有没有改变神经元,并说出没有检出差别能说明什么
- 区分潜伏期和抖动,用「时刻的误差约等于噪声除以坡度」解释光一亮,第一个动作电位为什么出得又快又准
- 用第 8 章的「累了」和第 3 章的不应期,解释脉冲频率越高放电越少,并在实验室里把两个原因分开
这一章给虚拟实验台装上第一个完整的用法。第 8 级的光开关只算了三堆通道的占比,第 3 级的神经元只有钠、钾、漏三股电流,现在把两边合在一起。开着的那一堆乘上 G_MAX 给出 g,I = g·(V − 0) 作为第四股电流,从膜电位里减掉,再给神经元一串光脉冲,数 20 个脉冲里放了几个电。
9.1 光开关装进神经元之前,有三件事没人知道,2005 年的实验怎么回答?
2003 年的论文已经在爪蟾卵母细胞和人胚肾细胞里证明,ChR2 受光直接开关,让阳离子涌进细胞,把细胞去极化。可这两种细胞本来就不放电,也不在几毫秒里做完任何事。换成神经元,一切都要重新问一遍。博伊登 2011 年的回顾写了他们当时担心的三处。ChR2 是藻的蛋白,也许在神经元的膜里长不好。光开关里的视黄醛,神经元里也许没有,要从外面补,实验就复杂得多。就算都好,它放过膜的电流也许小得推不过阈值(第 3 章)。
电压钳:钉住电压,记电流
我想知道光开关让多少电荷流进来,就把膜电位钉在 −65 mV(接近神经元不放电时的静息电位),不让它动。电压不动,钠门钾门的状态也不动,电流的变化就只来自光开关。记下来是一条电流曲线,第 8 章的峰值和稳态就是这样量的。
电流钳:放开电压,记电压
我想知道神经元放不放电,就不能钉住电压,要让膜电位自己走。记下来是一条电位曲线,动作电位直接就能看到,放了几个、什么时候放的,都在上面。
差别在:钉住的是电压,还是放开电压让它自己走。
研究者取 ChR2 的前 315 个氨基酸(蛋白质是氨基酸连成的长链,第 7 章的七根螺旋就在这一段里),在这一段的末端接上黄色荧光蛋白 YFP,让培养的大鼠海马神经元收到这段基因。神经元读出这段基因,就在膜里装上带荧光的光开关,在显微镜下发黄绿色的光,哪个神经元带了它,一眼就挑得出来。光用 450 到 490 nm 的蓝光,经显微镜的物镜照下去,功率密度是 8 到 12 mW/mm²。
表达(expression):细胞读出一段基因,造出相应的蛋白质,并放到该放的位置上。第 0 章讲过基因决定蛋白质,这里指神经元读出 ChR2 这段基因,把光开关装进自己的膜。读出了的叫表达组,没读出的叫不表达组。
三个担心各要靠一种观察来回答。请为每一个担心说出,要观察什么,要用电压钳还是电流钳。一,ChR2 在神经元的膜里长不长得好。二,要不要从外面补视黄醛。三,电流够不够推过阈值。
变式:想知道不照光时,ChR2 会不会让膜变得更漏,该在有光还是没光时量?该用电压钳还是电流钳?
三个担心一个接一个落空。荧光沿着细胞膜分布,蛋白长在了该长的位置。培养液和记录液里都没有额外加视黄醛,蓝光一照,电流照样出现。论文的写法是细胞本底的视黄醛也许够用,博伊登 2011 年回忆说,他们后来确认过,本底的视黄醛足够让 ChR2 在神经元里工作。把膜电位钉在 −65 mV,持续照 1 s 蓝光,向内的光电流峰值平均 496 ± 336 pA,稳态 193 ± 177 pA(18 个神经元,± 后面是标准差,表示各个细胞的数值散在平均值两边有多宽),第 8 章里的峰值和稳态,用的就是这组数。光一亮电流很快涨起来,最大上升速度平均 160 ± 111 pA/ms,在光亮后 2.3 ± 1.1 ms 内达到。光换成 490 到 510 nm,电流小了 42% ± 20%,方向和第 7 章里 ChR2 的吸收峰在 470 nm 一致。
电压钳在 −65 mV,光开关的反转电位(电流在这个电位上换方向)约 0 mV,I = g·(V − 0)。峰值光电流平均是 496 pA,向内,记作 −496 pA,这一刻光开关的总电导 g 是多少 nS?稳态的 193 pA 对应多少 nS?(1 pA ÷ 1 mV = 1 nS)
变式:按第 8 章的模型,峰值时开着的通道占 0.63。要得到 7.6 nS,全部通道同时开着时的电导 G_MAX 大约是多少?
放电实验里还有一个分化。13 个表达量高的神经元,光一亮就能可靠放电。5 个表达量低的神经元,同样的光只能把它们推到阈下,膜电位抬高了一块,没有越过阈值。
同样的光,表达量高的神经元放电,表达量低的只被推到阈下。请用 g、I = g·(V − 0) 和阈值,解释表达量低的为什么不放电,再说把光调亮,它有没有机会放电。
变式:不动光的亮度,把脉冲拉长,表达量低的神经元有没有机会放电?
9.2 装了一个外来的蛋白,怎么知道神经元还是原来那个神经元?
光电流和放电说明光开关管用,可管用是一回事,神经元被它改变了没有是另一回事。ChR2 是外来的膜蛋白,占着细胞膜的位置,细胞还要不停地为它花力气。它可能让膜漏电,让静息电位挪位置,让细胞更容易死,也可能让放电的习惯变掉。装了光开关的神经元如果已经不是原来的神经元,后面所有结果说的都是一个被改过的细胞。
只量表达组
我量了表达 ChR2 的神经元,不照光,膜电阻 212 ± 115 MΩ,静息电位 −60.6 ± 9.0 mV。有人问我,212 是高了还是低了,我答不上来。± 115 比 212 的一半还大,同一类神经元自己就差得很远。拿手册上的数来比,手册里的细胞、培养、记录办法都和这一皿不同,差别从哪来,说不清。
再量一组不表达的
我先找一组和它们只差一样东西的神经元,差的就是我想问的那样,有没有读出 ChR2 这段基因。别的都要一样,年龄、培养、记录办法,只是不发荧光。两组各量同样的几件事,量的时候不照光,量到的差别就只能来自「装了它」。最怕的是两组差了不止一样东西,那样差别算谁的就分不清了。
差别在:有没有一组只差「装没装」的参照。
对照组(control group):和实验组只差一样东西的一组,差的那样东西正是你想问的。这里的实验组是表达 ChR2 的神经元,对照组是不表达的神经元。
论文在图 5 里比了好几项,这里讲其中四项,每一项都在问一个具体的问题。黑暗中的膜电阻,问光开关会不会不照光也让膜漏电。黑暗中的静息电位,问它有没有把膜电位拉偏。染料碘化丙啶进不了完好的细胞膜,膜破了才能染上细胞核,用它问细胞死了没有。往细胞里注入 +300 pA 的电流,持续 0.5 s,数放几个电,问放电的习惯变没变。
先想一想:如果 ChR2 在黑暗里就让膜漏电,膜电阻会变大还是变小?
变小。漏电多了,电流更容易从膜上流走,同样的电压推出的电流更大,电阻就小。所以膜电阻是用来看「漏不漏」的一把尺子。
| 量 | 表达组 | 不表达组 | P |
|---|---|---|---|
| 膜电阻(黑暗中) | 212 ± 115 MΩ | 239.3 ± 113 MΩ | > 0.45 |
| 静息电位(黑暗中) | −60.6 ± 9.0 mV | −59.4 ± 6.0 mV | > 0.60 |
| 注入 +300 pA、0.5 s 的放电次数 | 6.6 ± 4.8 | 5.8 ± 3.5 | > 0.55 |
| 染上碘化丙啶的神经元数 | 1 / 56 | 1 / 49 | > 0.9 |
P > 0.45 是什么意思?
P 是这样一个概率:假设两组其实一样,只靠抽样的运气,也抽出这么大(或更大)差别的机会有多大。P 大于 0.45,说明这个机会超过四成,212 对 239 这点差别,不能当成两组有差别的证据。
四行里两组的数落在同一个范围里,装了 ChR2 没有留下看得出的痕迹。还有两处对照。只表达黄色荧光蛋白、不带通道的神经元,光照下从来没有记到对光的反应(论文只用一句话带过,没有附数据),两种蛋白只差通道那一段,电流就来自通道。光照方案是 1 s 的 20 Hz、15 ms 闪光,每分钟一次,共 10 次,做完 24 小时后,膜电阻 178 ± 81 MΩ,静息电位 −59.7 ± 7.0 mV,和没照过光的表达神经元没有差别,染上碘化丙啶的,表达并照过光的是 2/75,不表达的是 3/70。没有检出差别,只能说明没有大的改变。每组细胞数不多(膜电阻是 18 个),± 又这么大,几个百分点的小改变,这套对照看不出来。
有人读了表 9-1,说:膜电阻 212 比 239 小了一截,所以 ChR2 让膜变漏了。这个结论站不站得住?再设计一组对照,回答「蓝光本身会不会伤到神经元,和有没有 ChR2 无关」。
变式:想把「蓝光本身」和「光带来的热」分开,对照该怎么设?
9.3 光一亮,第一个动作电位要等多久,每次等得一样久吗?
给一个表达了 ChR2 的神经元持续亮蓝光,记下第一个动作电位的峰顶出现在光亮之后多久,实验里平均约 8 ms。对同一个神经元,同样的光,重复很多次,这个时刻每次之间大约差多少?
答完再看
第二个对。Boyden 等 2005 在 10 个神经元里量到,第一个动作电位的潜伏期(光亮到它出现的等待时间)是 8.0 ± 1.9 ms,同一个神经元重复照,这个时刻的抖动(每次之间的差别,用标准差量)只有 0.5 ± 0.3 ms。第一个错在把噪声看得太大,放电时刻确实会晃,可晃得比等待的时间小得多。第三个错在把很准当成没有误差,0.5 ms 虽小,不是 0。
放电的时刻会晃,是因为膜上每一刻都有噪声,通道随机地开开关关,细胞里的电压总在小幅抖动。光开关把膜电位推向阈值的时候,噪声一会儿帮一把,一会儿拖一下,越过阈值的时刻就前后摇摆。
摇摆多大,看越过阈值那一刻有多陡。假设膜电位每毫秒涨 2 mV,噪声让它在任何时刻都偏 ±1 mV,越过阈值的时刻就偏 ±0.5 ms。假设每毫秒只涨 0.2 mV,同样的噪声,时刻要偏 ±5 ms。时刻的误差约等于噪声除以坡度,坡越陡,越准。除的道理是,电位偏了 1 mV,时间上就偏了走完这 1 mV 要用的那段时间,坡越陡,走 1 mV 越快。论文引了 Mainen 与 Sejnowski 1995 年用电流注入做的实验,膜电位上升得快时放电的时刻更可靠,稳定的大电流下就乱,Boyden 等人拿它解释持续亮光为什么只有第一个动作电位准。上面的算式是对这件事最粗的估算。
光开关刚好能给出一个陡坡。灯一亮,通道很快开门,电流在 2 ms 左右达到最大上升速度,约 160 pA/ms,膜电位被一把推过阈值,噪声来不及把时刻改变多少。所以第一个动作电位不但来得快,来得还准。
假设越过阈值前的最后一段,膜电位每毫秒涨 4 mV,噪声让电位在任何时刻都偏 ±1 mV。越过阈值的时刻偏多少?光变暗,坡度只剩一半,又偏多少?
变式:坡度还是一半(2 mV/ms),但噪声也降到 ±0.5 mV,误差回到多少?
潜伏期(latency):从光亮到第一个动作电位的峰顶经过的时间,论文里是 8.0 ± 1.9 ms。抖动(jitter):同一个神经元重复多次,这个时间的标准差,论文里是 0.5 ± 0.3 ms。两个 ± 问的不是同一件事,1.9 ms 是不同神经元之间的差别,0.5 ms 是每个神经元自己算出抖动,再对 10 个神经元取平均。
打个比方
一只闹钟每天都慢 8 分钟,没关系,拨早 8 分钟就准了。另一只闹钟有时快 5 分钟,有时慢 5 分钟,没法校。潜伏期像前一只,8 ms 是固定的等待,可以提前补偿。抖动像后一只,每次不一样,补偿不了。准不准,看的是抖动,不看等多久。
类比失效处:闹钟慢多少只由机芯决定,神经元的潜伏期会随光强这样的条件变,换一个条件,那个 8 ms 就要重新量。闹钟的误差也不像抖动那样,能由噪声除以坡度算出来。
一直亮着的光
我看到第一个动作电位又快又准,8.0 ± 1.9 ms,抖动 0.5 ± 0.3 ms,它是光刚亮时那个陡坡推出来的。可第 8 章里电流冲高之后会落到稳态,只剩峰值的四成上下,坡没有了。后面的动作电位什么时候出来,由噪声说了算,论文里记到的就是这样,后面的放电时刻很不准。
切成短脉冲的光
我想让每个动作电位都从一个陡坡里出来,就把光切成短脉冲,每个脉冲的上升沿都是一次新的陡坡。光灭的间隙里,光开关关上,膜电位退回去,下一个脉冲再来一次。脉冲要比想要的放电间隔短,每个脉冲的电流又要大到足以推过阈值。
差别在:每一次放电之前,有没有一段新的陡坡。
论文用一串更苛刻的光来检验第二种办法。每个脉冲 10 ms 或 15 ms,脉冲之间的间隔随机,平均 100 ms 或 200 ms,数学上叫泊松序列,像雨点落下的时刻,没有规律。7 个神经元的数据合在一起,同一个神经元对同一串光重复照两次,超过 95% 的脉冲,要么两次都引出放电,要么两次都没有。平均间隔 100 ms 的那一串,76% 的脉冲引出了放电,200 ms 的那一串,85%。
论文里有两个数,第一个动作电位的潜伏期 8.0 ± 1.9 ms,抖动 0.5 ± 0.3 ms。请说出各自回答的问题,再说两个数为什么不矛盾。
变式:如果潜伏期是 8 ms,抖动也是 8 ms,提前开灯还能把放电对准吗?
脉冲串里的抖动比第一个动作电位的 0.5 ms 大一些,平均间隔 100 ms 时是 2.3 ± 1.4 ms,200 ms 时是 1.0 ± 0.5 ms。论文没有说为什么。按「误差约等于噪声除以坡度」去想,一个可能的原因是,第一个脉冲之后每个脉冲带来的电流都小了,坡变缓。本站模型没有噪声,算不出抖动,坡变缓却看得到:第一个脉冲让开着的通道占到 0.63,放电出现在光亮后约 2.6 ms,之后各个脉冲只占到 0.17 到 0.19,5 Hz 下放电要等到光亮后约 8 ms,推力弱了,越过阈值晚得多。
答辩:如果我是审稿人
你们把这叫毫秒级的控制,可光亮之后要等 8 ms 才放电,不同神经元之间还差 ±1.9 ms,同一串光在不同神经元里引出的放电时刻也不会一样。凭什么说它准?
参考防守(先自己组织语言再看)
要把三个数分开。等待 8 ms 是固定的延迟,同一个条件下每次几乎一样,同一个神经元重复照的抖动只有 0.5 ms,提前开灯就能补偿。不同神经元之间有差别,论文把同一串随机脉冲打在 7 个神经元上,比较每个脉冲在不同神经元里引出的放电时刻,只算 7 个神经元全都放了电的那些脉冲(两串里分别是 59 个中的 31 个、46 个中的 30 个),差别(标准差)是 3.4 ± 1.0 ms 和 3.4 ± 1.2 ms,接近同一个神经元在整串脉冲里的抖动(3.9 ms 和 3.3 ms)。这说明,用同样的光去驱动一群表达量各不相同的神经元,放电的时刻能对到几毫秒以内。这个结论是在培养皿里、固定的光强和室温下量到的,换到组织里,光强会变,潜伏期也会跟着变(第 11 章)。
9.4 脉冲排得越密,放出来的电为什么越稀?
固定 20 个 10 ms 的蓝光脉冲,把脉冲频率从 5 Hz 提到 30 Hz。20 个脉冲里能引出放电的个数,会怎么变?
答完再看
第三个对。Boyden 等 2005 在 13 个神经元上测了 5 到 30 Hz(9 个神经元用 10 ms 的脉冲,1 个用 5 ms,3 个用 15 ms,数据合在一起统计),5 Hz 和 10 Hz 能引出长串放电,频率再高,放电的概率就往下掉。从原文图上读出来大约是,20 个脉冲里放电的个数,5 Hz 约 19,10 Hz 约 16,20 Hz 约 7,30 Hz 约 4。第一个错在把每个脉冲当成各自独立的一次推动,后一个脉冲其实带着前一个脉冲留下的东西。第二个错在把推得多当成放得多,脉冲排得密,每个脉冲的推力并没有变大。
最顺手的解释是不应期(第 3 章):神经元放完一次电,要等一阵才能再放。可第 3 章里的数是,同样大的第二个 1 ms 脉冲,起点比第一个晚 10.6 ms 以上就能再引起放电,加大到 8 倍,晚 5.7 ms 就够。40 Hz 的脉冲间隔是 25 ms,30 Hz 是 33 ms,20 Hz 是 50 ms,都比 10.6 ms 长得多。只靠不应期,30 Hz 乃至 40 Hz 都不该跟不上。
那就怪光开关累了(第 8 章)。每个脉冲都把一部分通道推进 D(第 8 章里通道的三个状态:C 关着等光,O 开着,D 开过之后累了,暂时不听光),D 回到 C 在暗中的时钟是 5 s,脉冲之间的暗段只有 15 ms 到 190 ms,D 几乎来不及回。可这样一来,D 里压着的通道,每个频率下都差不多一样多,累了对 5 Hz 和 30 Hz 是同一件事,只靠累了,也解释不了为什么频率一高就更差。两个解释各自都差一口气,把它们分开看,在实验室里就能做到。
三件事请自己做一遍。先不动任何设定,点「一次算完 5 / 10 / 20 / 30 / 40 Hz」,读 20 个脉冲里放电的个数,应该是 20、20、20、10、1,趋势和 Boyden 的读数一致,形状更陡,不用当预测。再勾上「让光开关不会累」重算一遍,看五个数变成多少。最后取消勾选,把频率分别拨到 5 Hz 和 40 Hz,读「第 20 个脉冲开始时累态 D 占」和第 2 个脉冲的 O 峰值,看两个频率下它们差多少。
5 Hz 的第 2 个脉冲
我先看到两个脉冲隔了 200 ms,脉冲之间暗了 190 ms,钠失活门 h(第 3 章)早已回到静息值 0.60,膜电位也回到了 −65 mV。D 里留着约 0.92,C 只剩 0.08,这个脉冲让 O 升到 0.17,推力只有第 1 个脉冲的约 0.27 倍。可神经元是完整恢复了的,这点推力刚好够越过阈值,膜电位冲到 +35 mV,放了一个电。
40 Hz 的第 2 个脉冲
我先看到两个脉冲只隔 25 ms,暗段 15 ms。D 里同样留着约 0.85,O 升到 0.19,推力和 5 Hz 差不多,还多一点,因为上一个脉冲留下的 O 没散尽。可是 h 才回到 0.51,静息值是 0.60,膜电位也还在 −64 mV,门槛比 5 Hz 时高。同样弱的推力,只把膜电位推到 −60.7 mV,没有越过阈值,没放电。
差别在:脉冲到来前,神经元恢复完没有。光开关一侧,两个频率给的推力差不多一样弱。
自己推一遍:同样弱的推力,为什么 5 Hz 够、40 Hz 不够
一个脉冲结束后,开着的通道全部落进 D,D 回到 C 在暗中的速率只有 Gr0 = 2×10⁻⁴ ms−1(第 8 章,对应约 5 s 的时钟)。5 Hz 的脉冲之间暗 190 ms,40 Hz 的暗 15 ms,各有多大一部分 D 在暗段里回到 C?
想好了再看
D 里留着的按指数衰减(每过同样的一小段时间,剩下的都按同一个比例减少),回到 C 的部分是 1 − e−Gr0·t。5 Hz:1 − e−0.038 ≈ 3.7%。40 Hz:1 − e−0.003 ≈ 0.3%。两个都很小,暗段里 D 几乎没有回头。
每个后来的脉冲开始时,D 里还压着多少通道?这对每个脉冲的推力意味着什么?
想好了再看
实验室里读到,第 20 个脉冲开始时 D 约 0.90,5 Hz 和 40 Hz 都是这个数。第 2 个以后的脉冲,O 的峰值只有 0.17 到 0.19,第 1 个脉冲是 0.63,只剩 0.3 倍左右。光开关一侧,不论 5 Hz 还是 40 Hz,推力都弱到只剩约 0.3 倍。
推力一样弱,频率却不同,差别只能来自神经元一侧。5 Hz 与 40 Hz 下,下一个脉冲来时钠失活门 h 恢复了多少?
想好了再看
第 3 章里,一次放电之后,h 要花十来毫秒才爬回静息值附近,约 0.60,掉得越低,爬得越久。5 Hz 暗 190 ms,h 早已回到 0.60。40 Hz 暗 15 ms,实验室里算得 h 只回到约 0.51(第 2 个脉冲)到 0.55(第 3 个以后),膜电位也还在 −64 mV 上下。
合起来看,40 Hz 下后来的脉冲能把膜电位推到哪儿?为什么说放电变稀是两件事相乘?
想好了再看
「相乘」在这里指缺一不可,缺了任何一件,放电都不会随频率变稀。40 Hz 下后来的脉冲只把膜电位推到约 −59 mV,没有越过阈值,只有第 1 个脉冲放了电(图 9-1)。5 Hz 下同样弱的推力,遇到完整恢复的神经元,能越过阈值,每个脉冲放一个电。只有累了,推力变成约 0.3 倍,每个频率一样;只有没恢复完,推力还是第 1 个脉冲那么强时能顶住,勾上「让光开关不会累」,五个频率全放满。要两件事一起,放电才会随频率变稀。
图 9-1 最下面一栏最说明问题,实线和虚线从第 2 个脉冲起几乎重合,光开关给两个频率的推力差不多。真正把两个频率分开的,是上面两栏里膜电位的去向。
40 Hz 脉冲串的中段,每个光脉冲结束的那一刻,开着的通道占 0.19。灭灯后它们自己关上,关闭时间常数是 9.6 ms。15 ms 之后下一个脉冲到来,那一刻还有多少通道开着?5 Hz 时脉冲之间暗 190 ms,又是多少?
变式:关闭时间常数换成 4.4 ms,其余不变,40 Hz 下脉冲到来时还剩多少?
表 9-2 把表达量也拨了一遍。每一行是一个表达量固定的神经元,频率一高,放电个数是一道悬崖,该跟上的全跟上,掉下去就几乎只剩第一个。表达量越大,悬崖越往高频走。
| 设定 | 5 Hz | 10 Hz | 20 Hz | 30 Hz | 40 Hz |
|---|---|---|---|---|---|
| 表达量 0.35 | 1 | 1 | 1 | 1 | 1 |
| 表达量 0.40 | 20 | 19 | 1 | 1 | 1 |
| 表达量 0.45(默认) | 20 | 20 | 20 | 10 | 1 |
| 表达量 0.55 | 20 | 20 | 20 | 19 | 19 |
| 表达量 0.70 | 20 | 20 | 20 | 20 | 19 |
| 表达量 0.45,去掉累了这一态 | 20 | 20 | 20 | 20 | 20 |
| Boyden 等 2005 图 3b(读图约数) | 约 19 | 约 16 | 约 7 | 约 4 | 没测 |
先想一想:Boyden 的 13 个神经元合在一起,会是悬崖还是缓坡?
论文说这些神经元的膜电容、膜电阻差得很大,表达量多半也各不相同,脉宽还有 5、10、15 ms 三种,所以悬崖的位置各不相同,平均起来可能就是一个缓坡。这是本站的推测,论文里没有检验,实验室里可以试,本章末尾的研究题就是这件事。
请在实验室里构造一个设置,让 5 Hz 的 20 个脉冲也只放出 1 个电,说明它和 40 Hz 跟不上是不是同一个原因。再把光强拨到 30 mW/mm²,其余保持默认,40 Hz 的结果会怎样?
变式:光强拨到 3 mW/mm²,脉宽拉到 15 ms,5 Hz 下放几个?这和表达量变小的结果像不像?
想让光开关关得更快,把关门速率 Gd 加到 2 倍多,约 0.23 ms−1(关闭时间常数从 9.6 ms 缩到约 4.4 ms,第 13 章里会遇到这样的变体)。实验室里勾「把关门换成约 4.4 ms」,其余设定不动,先预测放电个数会变多还是变少,再扫一遍,然后把表达量拨到 0.70 再扫一遍。关得快换来了什么,付出了什么,要用什么补回来?
变式:第 13 章的 Chronos 关得更快,关闭时间常数 3.1 ms(室温)。按这一题的道理,它要让神经元跟上高频,需要什么条件?
答辩:如果我是审稿人
你们的模型里,频率一高,放电个数就从 20 掉到 1,是一道悬崖。实验里从原文图上读出来大约是 19、16、7、4,缓缓往下掉。模型和实验的形状对不上,凭什么拿它解释实验?
参考防守(先自己组织语言再看)
能解释的是两件事。一,哪些东西在起作用:光开关累了,让后面各个脉冲的推力只剩约 0.3 倍,高频下神经元又没恢复完,去掉光开关累了这一条,表 9-2 里高频就全跟上了。二,方向:频率越高,放电越少。解释不了的是形状和具体的数。一个确定的模型神经元,表达量一定,跟不跟得上是阈值上的开关,表达量一变,悬崖就左右挪位置,表 9-2 每一行都是悬崖。实验里 13 个神经元的膜电容、膜电阻差得很大,表达量多半也各不相同,脉宽还有 5、10、15 ms 三种,把不同位置的悬崖平均起来,可能就是缓坡,这是本站的推测,论文里没有检验它。模型的神经元是 6.3 °C 的枪乌贼轴突,光开关的参数来自一组来源没有文档的拟合,实验在室温的大鼠神经元上做,所以只拿趋势和分工,不拿具体的数。
9.5 光推动了一个神经元,它的邻居会不会跟着动?
神经元放电是为了让下一个神经元知道。如果光只能让带了光开关的那个神经元放电,工具的用处就小了一半,它的放电还得顺着突触(神经元之间传消息的接触点)传下去。前面几节里的单个神经元记录,浴液(泡着培养细胞的溶液)里都加了两种药挡住突触传递,那些放电只来自这个神经元自己的光电流。这里要的恰好相反,不挡。论文挑出一个带光开关、发荧光的神经元,用光脉冲让它放电,再用电极贴住它旁边一个不发荧光的神经元,记它的电。这个邻居没有光开关,光本身推不动它。
光一照,邻居那边出现了成串的突触电流,兴奋性的和抑制性的各出现了一种。为了把两种分开,记兴奋性的那一种时,浴液里先加了只挡抑制性传递的药(gabazine),再加只挡兴奋性传递的药(NBQX),这一串就消失了。记抑制性的那一种时,顺序反过来,最后抑制性的那一串也消失了。光刺激结束之后,研究者还把两类突触受体一起挡住,再照一次,用来确认这些电确实是突触传来的。
突触(synapse):一个神经元把放电的消息传给下一个神经元的接触点,消息传过去,会在下一个神经元的膜上引起电流。兴奋性突触让下一个神经元更容易放电,抑制性突触让它更不容易。
邻居神经元里记到了光脉冲引出的电流。请说出论文用到的两条证据,说明这些电流是突触传来的,不是光直接照出来的。
变式:如果邻居其实也带了很少量的光开关,哪一种操作能帮你判断,电流里有没有光开关直接产生的部分?
光也可以不让神经元放电,只让它的膜电位抬高一点。重复同样的光脉冲,每次抬高的幅度很一致,各次之间只差 6% 上下(变异系数,也就是标准差除以平均值,是 0.06 ± 0.03,5 个神经元)。
回到章名里的「第一次」,它说的是 ChR2 第一次装进神经元,按论文发表的先后算。2002 年米森伯克组的 ChARGe 已经让神经元对光有了反应(第 4 章),所以不能说这是第一次用光让神经元放电。这一篇站得住的说法是,它是最早用 ChR2 这种单一分子、毫秒级驱动哺乳动物神经元放电的报告之一,一个基因,几毫秒,大鼠的神经元。同一时期用 ChR2 的还有几篇,Ishizuka 等(2005 年 11 月 17 日在线)、Li 等(2005 年 11 月 23 日在线,黑格曼也是作者,ChR2 跟上最高 20 Hz)、Nagel 等的线虫工作(2005 年 12 月)、潘卓华的视网膜工作(2006 年 4 月)。这一篇是 2005 年 8 月 14 日在线,比最近的两篇(11 月)早约三个月,比线虫和视网膜的那两篇早得更多。各自做到了哪一步,第 16 章再细讲。
下面三件事,2005 年这篇论文做到了哪一件,另外两件为什么还没做到?一,在培养皿里让一个神经元,每次光一亮都准时放电。二,在活的动物脑里,用光让某一类神经元放电。三,让光开关只出现在某一类神经元里。
变式:这篇论文没有做到让光开关把一类神经元「关」下来,这一半留在第几章?
把光开关装进神经元:第四股电流,和 20 个脉冲
为什么现在才加:第 3 级的神经元只有钠、钾、漏三股电流,第 6 级写好了 I = g·(V − E),第 8 级的光开关给出开着的占比 O。三样东西各自都能跑,还没有合在一起。现在把 O 乘上 G_MAX 当作 g,第四股电流 I_光 = g·(V − 0) 接进第 3 级的更新里,再给神经元一串光脉冲。
难点:容易出事的有四处。其一,两边一起走,V、m、h、n 和 C、O、D 每一步都用这一步开头的值算,算完再一起改,顺序乱了,三堆之和会偏离 1,或者膜电位多走了半步。其二,符号,I_光 和第 6 级一样外向为正,要从注入电流里减掉。−65 mV 下 g·(V − 0) 是负的,减去负的就是加进去,膜电位被拉向 0。其三,G_MAX 有一个窗口,取得太小,第 2 个以后的脉冲推不过阈值,只剩第 1 个放电,取得大一些,才跟得上更高的频率。实验室里默认 0.45,是因为它的电流里多乘了一个随膜电位变化的整流因子,去极化时电流略小,同样的放电结果要取稍大的 g_max,这一级没有这个因子,取 0.38,所以表 9-2 的数是实验室的,下面的 bs-check 是这一级自己的。其四,数脉冲要数「每个脉冲有没有放电」,不是数总次数,本级里两个数一样,换了设定可能不一样。
自己验:G_MAX = 0.38,PHI_ON = 2.37×10¹⁶,脉宽 10 ms,dt = 0.01 ms,20 个脉冲。F = 5 Hz,20 个脉冲各放一个电,第一个电出现在光亮后约 2.6 ms,峰值约 +40 mV。F = 10 Hz 放 20 个,F = 20 Hz 放 19 个,F = 30 Hz 放 10 个,F = 40 Hz 只放 1 个,第 2 个脉冲起膜电位最高只到 −61 至 −59 mV。再把更新里 O 的出口改成直接送回 C,D 不动,F = 40 Hz 应该 20 个全放。最后把 G_MAX 改成 0.30,F = 5 Hz 只剩 1 个。五条都对上,这一级就成了。
对你而言未知13 个各不相同的神经元,平均起来会是缓坡吗?
表 9-2 里每一行都是一道悬崖,Boyden 原文图 3b 上读出来大约却是缓缓往下掉的 19、16、7、4。一个说法是,13 个神经元表达量多半不同(论文没有给出每个神经元的表达量,只说它们的电容、电阻差得很大),悬崖的位置各不相同,平均起来就成了缓坡。这个说法站不站得住,答案哪里也没写,要自己试:表达量取哪些值、怎么分布,才能平均出和 19、16、7、4 相近的缓坡?这样的分布,对真的神经元合不合理?
先做这一步:在实验室里把表达量依次取 0.35、0.40、0.45、0.55、0.70,各点一次「一次算完」,把五个表达量在每个频率上的放电个数加起来除以 5,看平均出来的是不是缓坡,和 19、16、7、4 差在哪。
读的时候要小心:模型和实验只对上趋势,有几处是读图、回忆,或只有一句话
表 9-2 和答辩里的 19、16、7、4 是从原文图 3b 上读出来的约数,正文只写了「频率越高,放电概率越低」。实验室里的神经元是 6.3 °C 的枪乌贼轴突,光开关的参数来自一组来源没有文档的拟合,表达量是我们挑的,让 5 Hz 下刚好每个脉冲都放一个电,所以模型的悬崖和实验的缓坡对不上;实验在室温(22 到 24 °C)的大鼠神经元上做,持续光下第一个动作电位出现在 8.0 ms,脉冲串里各个频率下的潜伏期论文说都约 10 ms,模型里第一个是约 2.6 ms,后面各个脉冲约 8 ms,这些对得上或对不上,都不当作验证。2004 年 8 月 4 日凌晨的第一次记录,和他们当时担心的三处,来自博伊登 2011 年的回顾,是当事人的回忆。视黄醛从哪里来,论文只说细胞本底的量也许够用,培养液的添加剂里含视黄醇的衍生物,没有分开检验是哪一个起作用,博伊登 2011 年回忆的「确认过本底的量足够」也没有附数据。「坡越陡时刻越准」这一条,论文引的是 Mainen 与 Sejnowski 1995 的结果,本站没有读那篇原文,只用了 Boyden 等人对它的转述。图 3b 的 13 个神经元合在一起统计,脉宽也不全是 10 ms,而实验室里的脉宽固定。只表达黄色荧光蛋白的神经元没有光电流、1 小时脉冲光照下电流幅度不变、表达 ChR2 的细胞里没有凋亡的细胞核,这三处原文只用一句话带过,没有附数据。
留给你的问题
想让一个表达 ChR2 的神经元每 10 ms 放一个电,也就是 100 Hz。光开关一侧要改第 8 章里的哪个数,会付出什么?就算光开关改好了,第 3 章里神经元自己还有什么挡着?
不看材料,写下这一章的三堵墙
第一堵:把一个外来分子装进神经元,会不会没用,会不会改变细胞。光电流和放电回答前一半,「表达组对不表达组」的对照回答后一半,对照要和实验组只差一样东西。第二堵:持续亮着的光,只有第一个动作电位出得又快又准,因为只有它是被刚升起的陡坡推出来的,时刻的误差约等于噪声除以坡度。要连着放电,就把光切成短脉冲,每个脉冲的上升沿都是一次新的陡坡。第三堵:脉冲排得越密放电越稀,是两件事相乘。光开关累了,第 2 个以后的脉冲推力只剩约 0.3 倍,每个频率都一样。高频下神经元又没恢复完,门槛更高,同样弱的推力就推不过去了。
第10章 只点亮你想要的那一种细胞
光锥里照到一百零八个细胞,只有三十八个响应
开篇故事第 10 集 · 三十个细胞里误伤了二十个一束蓝光的十八天
光斑落进光台里那块悬在半空的「组织」时,空气里响起一声很低的嗡鸣,橙色、青色、灰色三种细胞一起亮了起来,谁也没有被落下。
系统提示光斑盖住的区域里一共有 30 个细胞,橙色的 A 类、青色的 B 类、灰色的 C 类各约 10 个,目标之外的约 20 个细胞被一起照亮了。
系统提示蓝光过敏的目标是只让 A 类细胞响应,可是响应的细胞里 A 类只占三分之一,赌约判负,扣两天机时。
半个小时之前,蓝光过敏把光台的遥控器往桌上一拍,对电极老炮说:“光斑我想缩多小就缩多小,缩到只盖住橙色的那一小堆,青色和灰色的就照不到了,我拿两天机时跟你赌。”蓝光过敏还把「哪一类细胞读出了光开关基因」那个下拉框留在了「全部」,说反正光会替自己挑。许一舟觉得光确实能聚得很细,这条路他挑不出毛病,只是心里隐约有一处没有说通,却想不出是哪一处。
蓝光过敏又把光斑往里缩了一圈,亮着的细胞少了,三种颜色却还是挤在一起,对着光斑嚷了起来:“我已经缩得这么小了,它们为什么偏偏混着长?”
岑老师走过来,在光斑边上虚按了一下手掌,指尖被映成了暖橙色。“光能挑的是位置。三种细胞交错着长,光斑落在哪里,哪里的细胞就一起被照到,缩小光斑,只是被照到的细胞变少了,种类还是挑不出来。”
许一舟追问:“那换颜色呢?不同的光被吸收的情况不一样,总该有一种颜色,只有橙色的细胞会吸收吧?”
岑老师摇摇头说:“神经元本来就没有吸这类光、又能让细胞的电改变的分子,颜色没有可分的对象。颜色管的是哪一种光开关吸这束光,哪些细胞里有光开关,它管不到。”说完她伸手点开那个下拉框,把「全部」改成了「兴奋性」。光斑一动没动,里面的橙色细胞还亮着,青色和灰色的细胞却一个接一个暗下去,回到了本色。
系统提示光开关基因的读出范围已改为兴奋性神经元,同一个光斑里约 10 个 A 类细胞亮起,B 类和 C 类细胞保持本色,没有响应。
“选种类的信息得放在细胞自己身上,不能放在光上。”岑老师指着下拉框说,“这一栏背后是接在光开关基因前面的一段启动子,它决定哪一类细胞会去读这个基因,所以被光照够,并且读出了光开关基因,缺一不可。”
求问:光斑缩到最小,为什么还是挑不出橙色的细胞
1L衣藻本藻我把资料翻了一遍,光能决定的只有四样,照哪里、什么时候照、照多强、什么颜色,没有一样是哪一种细胞,所以光斑再小也只能挑位置。
2L蓝光过敏可我的光斑真的缩得很小了,再小一点,小到只盖住一个细胞,不就能把橙色的挑出来了吗?
3L电极老炮小到一个细胞也行,可橙色的细胞有一百个,你得一个一个去瞄,一次只能瞄一个,瞄到天亮也瞄不完,我先替你算一算累不累。
4L岑(带教认证)2L 的想法错在一件事上,要让所有橙色细胞同时响应,得有办法先分清谁是谁,这件事光做不到,只能交给细胞自己的基因。
5L许一舟我把它写成了一个算式,响应等于被光照够乘上读出了光开关基因,两个都是 1 结果才是 1,只要有一个是 0,结果就是 0。
熄灯之前,光台给每个人推送了一条还没点开的通知,里头只有一张截图:组织最深处的几个橙色细胞明明读出了光开关基因,光也一直照着,却始终是暗的,标题问的是,它们为什么不亮?
系统结算 · 本章考点
- 光能决定的只有四样:照哪里、什么时候照、照多强、什么颜色,没有一样是「哪一种细胞」;光束聚得再细,挑的也只是位置
- 三类细胞数量一样多、随机混在一起,光斑里 30 个细胞平均每类 10 个,只想让 A 类响应,B 和 C 共 20 个被白白照到,误伤的比目标还多一倍
- 换颜色也不行:神经元本来没有吸这类光又能改变电的分子;颜色只决定哪一种光开关吸这束光,比如 ChR2 吸约 470 nm 的蓝光
- 启动子是接在基因前面、决定哪些细胞会去读这个基因的一段控制序列;细胞读出基因、做出对应的蛋白质,叫表达
- 响应 = 被光照够 × 读出了光开关基因:光管「哪里、什么时候」,基因管「哪一种」,缺一个,细胞就不响应
- 2007 年用 CaMKIIα 启动子按种类挑出兴奋性神经元;2012 年按状态挑出恐惧学习那一刻活跃的海马神经元
在一间堆满东西的屋子里打开手电筒,亮起来的是光束扫到的一切,椅子、书包、猫都一样亮。大脑里的神经元也是这样挨在一起:一小块组织里,催着邻居放电的细胞、压着邻居不让放电的细胞,还有别的几种细胞,彼此交错着长。光纤一照,亮的是一大片。想让其中只有一种细胞响应,光自己能做到什么、做不到什么,这一章把界线划清楚,再看光做不到的那一部分由谁来做。
学完这一章你应该能做到
- 说出「把光束聚得很细」为什么只能挑位置、挑不了种类,换颜色为什么也不行
- 用「每个细胞带着全套配方,只读其中一部分」,解释把光开关的基因接在一段控制序列后面,为什么能让只有一类细胞做出光开关
- 判断一块混合组织里哪些细胞会响应:被光照够,并且读出了光开关的基因,缺一不可
- 说出 2007 年和 2012 年的两个例子里,开头序列各挑出了哪一类细胞
- 给虚拟实验台加一张表达表,让每个细胞带一个种类字段
这一章给虚拟实验台加一张表达表(细胞读出一段基因、做出对应的蛋白质,叫表达):每个细胞多带一个种类字段,只有种类在目标名单里的细胞,才拥有光开关的电导。前九级台阶里,台上只有一个神经元,或者一群一模一样的神经元,光一照,谁都会响应,没有谁需要被挑选;表加上以后,光照到了的细胞里,只有名单上的那一类会响应。
10.1 光束聚得再细,能不能只照到想要的那一种细胞?
一小块脑组织里混着三种细胞,每种有成千上万个,散在整块组织里,彼此挨着长。你想让其中的兴奋性神经元(记作 A 类)响应光,另外两类(B 类、C 类)不动。手边的光源可以聚得很细,细到只落在一个细胞上。你觉得把光束聚细,能办成这件事吗?
答完再看
第二个对。第一个默认了你事先知道每一个 A 类细胞在哪,可混在一起的组织里,细胞的种类并不写在位置上,光斑落在 A 旁边的 B 上,B 照样被照亮。第三个把原因归给了仪器做不到。就算有一台仪器真能把光聚得只盖住一个细胞,问题也还在:要让成千上万个 A 类细胞都响应,得一个一个去瞄,而要知道哪一个是 A 类,本身就得先有办法分清种类。
兴奋性神经元与抑制性神经元(excitatory / inhibitory neuron):放电时催着下一个细胞放电的,叫兴奋性神经元;压着下一个细胞不让放电的,叫抑制性神经元。
我们把这条路认真走一遍。最顺的情形是培养皿里只有一个细胞,光斑盖住它,就是「只照一个」。脑组织里,同一类细胞散在一大片中间,邻居是别的种类,光斑盖住一块区域,区域里各种细胞一起被照到。光能挑的是位置,位置和种类之间没有对应。要让整片组织里所有 A 类细胞都响应,得逐个瞄过去,一次只能瞄一个。光进了组织还会越走越散,光斑没法一路保持那么细,第 11 章专门算这件事。
培养皿里只有一个细胞
光斑盖住它,别的细胞不在光斑里。位置和「是哪个细胞」一一对应,照一个,就是选了这一个。
混杂的脑组织
光斑盖住一块区域,区域里各种细胞一起被照到。位置和种类之间没有对应,光斑再小,也挑不出「这一块里的 A 类」。
差别在:位置和种类有没有一一对应,有就能靠位置去选,没有就选不了。
一块组织里三类细胞随机混在一起,数量一样多。光斑盖住的区域里有 30 个细胞,平均下来,其中有几个 A 类、几个 B 类、几个 C 类?如果只想让 A 类响应,这块光斑里有几个细胞被白白照到?
变式:A 类只占全部细胞的十分之一,光斑里仍有 30 个细胞,平均有几个 A 类?被白白照到的有几个?
位置挑不了,换颜色。找一种只有 A 类细胞会吸收的颜色,整块组织都被照到,也只有 A 类有反应,不就行了吗?这条路有一个前提:A 类细胞里得有一种分子,本来就会吸收这种光,并让细胞的电改变。第 1 章 1.2 里说过,脑里的神经元本来对蓝光没有反应,也没有现成的这类分子可用,颜色没有可分的对象。颜色真正起作用,是在光开关已经装进细胞以后,它决定的是哪一种光开关吸这束光,比如 ChR2 吸约 470 nm 的蓝光。哪些细胞里有光开关,颜色管不到。
有人提议:找一种颜色的光,只有 A 类神经元吸收它,这样一束光照到整块组织,也只有 A 类响应。请用一句话说出这个提议缺了什么,再说颜色在光遗传学里到底起什么作用。
变式:同一块组织里,A 类细胞装了吸蓝光的光开关,B 类细胞装了吸黄光的光开关,用颜色能不能分别控制它们?这时候是颜色在选种类吗?
光能决定的只有四样:照哪里、什么时候照、照多强、照什么颜色,没有一样是「哪一种细胞」。把光开关给所有细胞装上,再靠缩小光斑去挑,等于回到第一堵墙。选种类的信息只能放在细胞自己身上,而细胞身上带着信息的东西,第 0 章 0.4 讲过,是基因。
答辩:如果我是审稿人
眼睛的视网膜里,不同的感光细胞对不同颜色的光有反应,那不是靠颜色就把不同种类的细胞分开了吗?
参考防守(先自己组织语言再看)
视网膜里的感光细胞,本来就带着能吸光的蛋白质,不同种类的细胞带的蛋白质不一样,所以对不同颜色有反应。这恰好说明,细胞对哪种光有反应,取决于它身上有什么蛋白质,也就是由基因决定,颜色只是把这种差别显出来。脑里的神经元本来对这类光没有反应,光遗传学做的,就是用基因把一个能吸光的蛋白质装进去。
10.2 光选不了种类,选种类的信息该放在哪里?
一块组织里混着 A、B、C 三种细胞,各一百个,交错着长。一根光纤从上面照下来,把整块组织都照亮了。设定只有 A 类细胞读出了光开关的基因,B 类和 C 类没有。光一亮,三种细胞里会有几种响应?
答完再看
第二个对。光开关只存在于 A 类细胞里,光照到 B、C 时,它们身上没有东西能吸收这束光,什么也不会发生;照到 A,光开关吸光,孔打开,A 响应。第一个把光当成了选择者,上一节已经看到光没有这个本事。第三个把「光不带种类」推成了「光开关再怎么限定也没用」,漏了一点:光不带种类,所以种类的信息可以放在光开关这一边。第四个把「挨得近」当成了被选中的理由,谁有光开关只看谁读出了基因,和位置无关。第二个选项里还有一个条件:深处光到不了的 A 类细胞,同样不响应,这一点第 11 章算。
这个答案把选种类的事整个交给了光开关这一边:B、C 身上没有光开关,光再亮也没有东西吸收它。剩下的问题是,怎么让只有 A 类细胞做出光开关。第 0 章 0.4 讲过,每个细胞都带着同一整套基因,各自只读其中一部分,读哪些由基因旁边的一段控制序列和细胞里已有的蛋白质一起决定。这就给了办法:光开关的基因不单独送进去,在它前面接上一段控制序列,挑一段只有 A 类细胞才会去读的。再让那块脑区里的细胞收到这份接好的基因。脑区里的各种细胞都可能收到它,可只有 A 类细胞里有认得这段控制序列的蛋白质,只有它们会把光开关读出来、做成蛋白质、嵌进细胞膜。B 类和 C 类带着基因,却不读。
A、B、C 三类细胞都收到了同一份「光开关基因加一段只有 A 类才读的控制序列」。过几天,哪一类细胞的膜里有光开关蛋白质?B 类细胞带着这份基因吗?
变式:换成一段所有细胞都会读的控制序列,三类细胞里谁会有光开关?这时候选种类的事又落回了谁身上?
表达(expression):细胞读出一段基因,做出对应的蛋白质。说「A 类细胞表达光开关」,就是说 A 类细胞读出了光开关的基因,膜里有了光开关。
启动子(promoter):接在基因前面、决定哪些细胞会去读这个基因的一段控制序列。把光开关的基因接在只有某类细胞才读的启动子后面,就只有这一类细胞会表达它。下文有时把启动子叫作开头序列。
到这里,光和基因各管一件事。光决定「哪里、什么时候」,基因决定「哪一种」。两个条件都满足的细胞才响应:光照到了却没有光开关的不动,有光开关却没被照到的也不动。
先别拨,猜一猜。场景里的 A 类是兴奋性神经元,B 类是抑制性神经元,C 类是其他细胞。「哪一类细胞读出了光开关基因」那个下拉框现在选的是兴奋性,亮起来的会是哪些细胞?换成抑制性呢?选「全部」呢?选「无」呢?猜完再去拨,还要留意位置很深的、被选中的细胞,它们亮不亮。
场景里画了 600 个细胞,三类的比例是 40%、15%、45%,这个比例是为了好看设的示意,不是真实脑组织的组成。细胞有三种状态:没读出光开关基因的保持本色;读出了,但光强低于阈值的画成暗色;读出了,而且光强不低于阈值的才发亮。所以位置很深的 A 类细胞,哪怕读出了光开关基因,光走到那里已经弱到不够,也是暗的。光强按第 11 章的深度公式算,光锥的半角约 15.8°,锥外的细胞光强记为 0。场景里没有算膜电位和放电,亮只表示光强够了。
动手:把「哪一类细胞读出了光开关基因」选成「全部」,亮着的细胞连起来是什么形状?再把「出纤光强 I₀」往左拖,形状怎么变?
是一个尖在光纤口、往下越张越开的锥,到阈值深度处被削平,不是一滴水的形状。张开的角度由光锥半角约 15.8° 定,锥外光强记为 0,所以亮的细胞要么在锥里,要么不亮。把 I₀ 往左拖,削平的那一面往上挪,锥变矮。
打个比方
学校给每个班都发了同一份活动通知,第一行写着「只限高二 3 班」。全校每个班都收到了,可只有 3 班的同学会照着去做。基因就是这份通知,每个细胞都收到,第一行的控制序列决定谁去读它。
类比失效处:通知上写着班级的名字,靠看名字挡人。控制序列上没有名字,是它的形状正好能被某一类细胞里的蛋白质认出来,别的细胞里没有这种蛋白质,就认不出。「认」还有强有弱,同一类细胞里有的读得多、有的读得少,不像报名只有去和不去两种。
只靠光(位置选择)
光斑里的细胞,不管什么种类,全都被照到。要选种类,只能把光斑缩到一个细胞那么小,再逐个去瞄,成千上万个细胞,一次只能瞄一个。
光加基因(种类选择)
光纤照亮一大片,片里所有 A 类细胞同时响应,邻居不动。不用事先知道每个 A 类细胞在哪,基因已经替每一个细胞做了选择。
差别在:选种类的信息,一个只能靠光落在哪里,一个写在细胞自己的基因里。
三类细胞各 100 个,随机混在一起,只有 A 类表达光开关。光只照亮组织的上半部,三类细胞各有约一半落在亮处。光一亮,响应的细胞大约有几个?分别是哪几类?
变式:改成 A 类和 B 类都表达,光仍然只照上半部,响应的大约有几个?分别是哪几类?
自己推一遍:从「照到」和「有开关」到「谁响应」
光能决定的有几样?其中有没有一样是「哪一种细胞」?
想好了再看
四样:照哪里(位置)、什么时候照(时间)、照多强(强度)、什么颜色(波长)。没有一样带着种类的信息,所以种类的信息要放在光之外。
细胞自己身上,什么东西最适合带着种类的信息?它要满足什么要求?
想好了再看
基因。每个细胞带着同一整套基因,只读其中一部分,读哪些取决于基因前面的控制序列和细胞里已有的蛋白质,而不同种类的细胞里,已有的蛋白质不一样。把光开关接在某一类细胞才读的控制序列后面,就让「读不读」跟着种类走。
把「被光照够」记成 1 或 0,「表达了光开关」也记成 1 或 0,一个细胞响应的条件怎么写成一个算式?
想好了再看
相乘:响应 = 被光照够 × 表达了光开关。两个都是 1,结果才是 1,只要有一个是 0,结果就是 0。三类各 100 个、只有 A 类表达、光覆盖全部,代进去,A 类每个得 1,B 和 C 每个得 0,一共 100 个。
光改成只覆盖一半区域,算式的哪一项变了?结果是多少?
想好了再看
变的是「被光照够」那一项:只有一半细胞得 1,另一半得 0。A 类里约一半响应,约 50 个,B 和 C 仍是 0。这也说明光只能动「哪里」这一项,动不了「哪一种」那一项。
A 类细胞表达了 ChR2,光也落到了 A 类细胞身上,可它们一个也没有响应。请构造一个具体情形,说明这个结果怎么可能出现。
变式:B 类细胞没有表达光开关,但光的颜色、强度都对,B 类细胞的膜电位会因为这束光而变吗?
光亮起来的一刻,A 类细胞的 ChR2 通道打开,让阳离子通过,B 类细胞没有表达 ChR2。两类细胞的膜电位都静息在 −65 mV。只看 ChR2 这一股电流,A 类细胞的膜电位会往哪个方向走,走到哪一带电流就停了?B 类细胞呢?A 类细胞里让膜电位冲到 +40 mV 左右的,是 ChR2 自己吗?
变式:把光开关换成一个反转电位在 −80 mV 的通道,A 类细胞的膜电位会往哪个方向走?
答辩:如果我是审稿人
你反复说「选一种细胞」,可兴奋性神经元自己就有很多种,「一种」到底是怎么定的?
参考防守(先自己组织语言再看)
「一种」由开头序列在哪些细胞里被读来定,换一段序列,选出的「一种」就换了。2007 年的问题是兴奋性神经元和别的细胞之间有什么区别,用的是只在兴奋性神经元里被读的序列;下一节的 2012 年,问题是学习那一刻在活跃的那一群,用的是另一类序列。想选得更细,要去找读的范围更窄的开头序列,光束再细也帮不上忙。
10.3 2007 年和 2012 年,研究者用了哪两段开头序列,各挑出了哪一类细胞?
同一个办法,挑出来的「一种」可以按不同的标准来定。2007 年,Aravanis 等人的光纤论文用 CaMKIIα 基因前面的启动子,把 ChR2 限定在兴奋性神经元里(这段启动子主要在前脑的兴奋性神经元里起作用,所以成了挑兴奋性神经元的钥匙)。光纤把 473 nm 的光送进完整的啮齿动物的脑,出口光强约 380 mW/mm²,足以驱动兴奋性神经元,控制运动皮层,得到了行为上的输出。这个出口光强,是下一章的起点。
2012 年,利根川进组的 Liu 等人(作者里有戴塞洛斯)换了一个标准。他们用的序列,只有最近正在活跃的细胞才会去读。细胞活跃起来的时候,有一类基因会很快被打开,这类基因前面的启动子,就能拿来标记「最近活跃过的细胞」。小鼠学会害怕某个环境的那一刻,海马齿状回里正在活跃的一群神经元读出了光开关的基因。之后用光去激活这一群,小鼠就表现出冻结的行为。这类实验说明了什么,第 14 章展开。
2007,Aravanis 等:按种类挑
开头序列:CaMKIIα 启动子。表达光开关的是兴奋性神经元,用光控制了运动皮层,得到行为输出。
2012,Liu 等:按状态挑
开头序列:最近正在活跃的细胞才去读的序列。表达光开关的是恐惧学习那一刻活跃的海马神经元,用光重新激活它们,小鼠出现冻结。
差别在:「一种」的标准,一个按细胞的种类,一个按细胞在那一刻的状态。
2007 年 Aravanis 等人和 2012 年 Liu 等人的实验里,挑出「一种细胞」的标准各是什么?
变式:想挑出「睡着时正在放电的那群细胞」,应该找一段什么样的开头序列?
对你而言未知同一类细胞里,表达光开关的量有多有少,响应会怎样跟着变?
本章的表达表里,每个细胞只有「表达」和「不表达」两种状态。真的 A 类细胞之间,光开关的量有多有少。Boyden 等 2005 年在培养神经元里看到,13 个高表达的神经元能可靠放电,5 个低表达的神经元只被去极化到阈下的水平。答案存在,只是不在这一章里,表达量和放电之间的对应关系,要你自己算出来。
先做这一步:把表达表里的 g_opto,从 0 和 G_MAX 两档,改成 0、0.2、0.5、1 倍 G_MAX 四档,每档给同样的光,记下哪一档开始不放电;再去读 Boyden 等 2005 的图 1,看他们怎样描述高表达和低表达的神经元。
给虚拟实验台加一张表达表:谁拥有光开关,由种类决定
为什么现在才加它:前九级里,台上的神经元都是一个样,光照到的细胞全部会响应。真的脑组织里种类混杂,光一照到别的种类就会误伤,所以每个细胞要多带一个种类字段,再用一张表规定哪些种类拥有光开关。
难点:这一步看着只是多一个字段,错误藏在两处。其一,把选择写在了循环外面:先按种类筛出 A 类,只模拟它们。这样 B 和 C 就从台上消失了,你再也没法问「它们有没有被误伤」。正确的做法是所有细胞都留在台上,各自带一个 g_opto,B 和 C 的 g_opto 是 0,它们照样放电,只是光对它们没有作用。其二,数响应的细胞时只看了一个条件。只数 g_opto 大于 0 的,数到的是表达了光开关的细胞,不管光照没照到;只数 lit 为 1 的,数到的是被照到的细胞,不管有没有开关。两个条件要同时成立才算。
自己验:三类细胞各 100 个,expressed 只含 A,光覆盖全部,响应的细胞应该恰好 100 个,而且全是 A 类。把光改成只覆盖一半区域,应该约 50 个,45 到 55 之间都算对。把 expressed 改成空集,应该是 0;改成 A 和 B,光覆盖全部时应该是 200。四个都对上,这一级就成了。
留给你的问题
某次实验里,一块组织中的 A 类细胞,有一部分在光下没有响应。只凭「光加基因」这个模型,你能列出几种可能的原因?每一种,各用什么办法去查?
不看材料,写下这一章的三堵墙
第一堵:光束聚得再细,挑的也是位置,同一类细胞散在别的细胞中间,要一个一个瞄,还得先知道谁是谁。第二堵:换颜色也不行,神经元本来不吸收这些光,颜色没有可分的对象。第三堵:给所有细胞都装上光开关,再靠缩小光斑去挑,等于回到第一堵。出路是只让一类细胞表达光开关,办法是把基因接在只有这类细胞才读的启动子后面,再用光决定哪里、什么时候,两个条件都满足的细胞才会响应。
第11章 光照不进大脑深处
按公式算,光开大十倍,一毫瓦的深度只深了二点七倍
开篇故事第 11 集 · 停电夜里手掌透出暗红的光一束蓝光的十八天
光台刚把许一舟的预测摆上面板,整栋楼的灯就一起灭了,空调的风声断在半截,只有悬在半空的那块蓝色面板靠着备用电池,又亮了几秒。
系统提示许一舟的预测:1 mW/mm² 出现在约 6 mm 深处,光锥变宽和组织打散两样里,较短的那一个说了算。
系统提示主电源中断,判定计算被迫停止,这场赌约暂时悬而未决,光台进入休眠。
半个小时之前,衣藻本藻在光台前报出两个数:只算光锥变宽,光强降到 1 mW/mm² 要走到约 6.5 mm 深,只算组织打散,要走到约 37 mm 深。“两样都算呢?”许一舟几乎没有停顿,说较短的那个先把光掏空,约 6 mm。衣藻本藻又补了一句,1 mW/mm² 是文献里常用的估算值,不是 ChR2 自己测出来的,然后和他约好,输的人今晚把光强表当着全营的面背一遍。
黑暗里先听见的是风扇慢慢停下来的嗡声,接着是椅子腿刮过地面,有人撞上了桌角,空气里一下子多出一股灰尘和旧电线的味道。咔的一声,岑老师拉开墙角的应急柜,手电筒一支一支传了过来,塑料外壳还带着柜子里的凉意,按钮一按,白光弹出来,照得满屋的浮尘都在飘。“黑屋子里数不出东西,到院子里去,有一样东西得亲眼看。”岑老师说完,已经第一个走到了门口。
楼梯间里,几十双脚步声一层一层回上来,栏杆凉得扎手。院子里的夜风带着刚割过的草味,草丛里的蛐蛐被光柱惊得停了一下,又接着叫起来,几十道光柱在潮湿的空气里亮成了一个个白色的圆锥。岑老师把手电筒对准对面教学楼的墙,墙上的光斑又大又淡,她往墙边走近几步,光斑缩成一小团,亮得刺眼。“光一点没少,只是铺开了。”她说,“许一舟,把手电筒贴到手掌上。”
许一舟把灯头按在手心里,掌心被烫得微微发麻,塑料壳下面透出一团暖烘烘的热,五根手指的边缘全镀成了橘红色,可手背朝着黑夜,只亮起一小片暗红色的光,边缘模糊,红得像隔着一层水。手电筒明明那么亮,穿过一只手却只剩了一点。
“光台没来得及弹出来的那一行,我替它补上。”岑老师说,“1 毫米深处,只算铺开剩约 26,只算打散剩约 34,两样一起只剩约 2.3,单位都是 mW/mm²。光每走一步,既要铺开,又要被打散,两个比例相乘,比哪一个单独算都小。”许一舟在黑暗里把 26 和 34 各除以 380 再乘起来,再乘回 380,得数落在 2.3 附近,他这才看出自己把相乘当成了取其一,两样叠在一起,1 mW/mm² 只走到约 1.4 mm。
衣藻本藻举着手电筒补了一句:“1.4 毫米是光台按公式算出来的,不是量出来的,走到较深的地方这个公式还偏乐观,真实的深度会更浅。手掌偏红也有一部分是血吸掉了蓝绿光,公式只算了散射。”人群里的蓝光过敏嚷了起来:“光开大十倍总行了吧?”岑老师答得很快:“从 38 加到 380,整整十倍,1 mW/mm² 的深度只从 0.51 毫米变到 1.40 毫米,深了 2.7 倍。”
愿赌服输,全营围成一圈,几十道光柱齐刷刷对准许一舟,他清了清发干的嗓子,一行一行往下背:0.1 毫米,114;0.3 毫米,27;0.5 毫米,10.6;1.0 毫米,2.3。声音在院墙之间撞出一点回音,手背上的暗红随着他的嗓子微微发颤,背到最后一行 0.84 的时候,整栋楼的灯一起亮了,岑老师关掉手电筒说,明天光台里换一个题目,不让神经元说话,要让一个正在放电的神经元闭嘴,光能做到吗?
系统结算 · 本章考点
- 光纤口出来的光是一个锥,半角约 15.8°;光斑越走越大,每平方毫米的光强越来越小,这一项叫几何扩散,只和光纤、折射率有关。组织完全透明时,走到 1 mm 光强也只剩出口的约 6.8%
- 组织像牛奶把光打散,沿原方向继续走的光占 1/(S·z + 1);473 nm 的光 S 取 10.3 mm⁻¹;几何扩散和散射相乘:I(z)/I₀ = ρ²/((S·z + 1)(z + ρ)²)
- 本站按公式算出:只算几何扩散,1 mW/mm² 在约 6.5 mm,只算散射在约 37 mm,两样叠在一起在约 1.40 mm;1 mm 处只剩约 2.3 mW/mm²,10 mW/mm² 在约 0.51 mm
- 出口光强加大 10 倍,深度远不到 10 倍:38 加到 380,1 mW/mm² 的深度从 0.51 mm 到 1.40 mm,只深了 2.7 倍;深度翻一倍,光强在一两毫米里要加到 5 到 6 倍多,深处趋近 8 倍,还会发热
- 约 1 mW/mm² 是文献里常用的估算值,不是 ChR2 的实测性质;模型在较深处偏乐观,算出的深度更像上限
- 换成 561 nm,S = 9.0 mm⁻¹,1 mW/mm² 的深度约 1.47 mm,比 473 nm 的 1.32 mm 只多约一成,更远要靠吸更红光的光开关
拿一支手电筒贴在手掌上,手背上只能看到一小片暗红色的光。手电筒明明很亮,穿过一只手却只剩一点,而且剩下的偏红。光纤口出来的光面对的是同一件事。2007 年 Aravanis 等人的光纤,出口处每平方毫米上落下约 380 mW 的光,也就是光强约 380 mW/mm²,比文献里拿来粗略判断光够不够用的估算值(约 1 mW/mm²)大三百多倍,可光走进脑组织一两毫米,就不够用了。为什么?
学完这一章你应该能做到
- 说出光从光纤口出来以后变弱的两个原因,各自从哪里来
- 用 I(z)/I0 = ρ²/((S·z + 1)(z + ρ)²) 算出给定深度的光强,或者给定光强对应的深度
- 解释「出口光强加大 10 倍,就能照深 10 倍」为什么不成立,并用表里的数说出实际深了几倍
- 把「约 1 mW/mm²」读成文献里常用的估算值,说出它不是 ChR2 的实测性质
- 说出换成波长更长的光,散射为什么更少,对第 13 章的红移光开关意味着什么
- 给虚拟实验台加一个光强函数 I(z),让每个细胞按深度拿到自己的光强
这一章给虚拟实验台加一个函数 I(z):每个细胞按自己所在的深度,拿到自己那份光强,再和第 10 章的表达表一起,决定谁响应。前面的台阶里,光覆盖的地方处处一样亮,细胞要么被照够,要么没被照到;加上它以后,位置越深的细胞拿到的光越少,表达了光开关的细胞里,深处的会照不够。
11.1 组织完全透明的话,光走远了也会变弱吗?
假如脑组织是完全透明的,既不散射,也不吸收光。光纤口出来的光走进 1 mm 深,每平方毫米上的光强会怎么变?
答完再看
第二个对。手电筒照在远处的墙上,光斑比近处大得多,光没有少,只是铺开了。走到 1 mm 时,光强只剩出口的约 6.8%,380 mW/mm² 变成约 26 mW/mm²,组织一点没挡光也是这样。第一个把「光没有损失」当成了「光强不变」,光强是每平方毫米上的光,面积变了,它就变。第三个看反了:光纤的光向外张开,没有聚拢。
这是光撞上的第一堵墙。光纤口是一个半径 0.1 mm 的小圆,光从里面出来,是向外张开的一个锥,越走越宽。锥张开多大,由两个数定。一个是光纤的数值孔径 NA,光纤出厂时就标好了,越大,光出来时张得越开。另一个是组织的折射率 n,它说的是光在这种介质里比在真空里慢多少倍,空气约为 1,组织比空气大,光一进去就向轴线方向折过去一点。光纤标的 NA,就是它在空气里出光半角的正弦;进了组织,按折射定律(入射角的正弦等于 n 乘折射角的正弦)还要除以 n,所以锥的半角 θ 满足 sin θ = NA/n。这里 NA = 0.37,n = 1.36,θ 约 15.8°。
同一根光纤,数值孔径 NA = 0.37。在空气里,光出来的半角约 21.7°。放进折射率 n = 1.36 的组织里,半角变大还是变小?变成多少?
变式:组织换成折射率更大的某种介质,光纤不变,光锥的半角会怎样变?
把锥的两条边往回延长,会在光纤口后面收成一个尖,尖到光纤口的距离记作 ρ。光纤口的半径 r 是锥在光纤口处的半径,锥的半径和到尖的距离成正比,所以 r/ρ = tan θ,也就是 ρ = r/tan θ。正切可以用正弦写出来,tan θ = sin θ/√(1 − sin²θ),把 sin θ = NA/n 代进去,上下同乘 n 再整理,就得到:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| ρ | 锥的尖到光纤口的距离,单位 mm,本章约 0.354 mm | 锥张得越开,尖离光纤口越近 |
| r | 光纤口的半径,0.1 mm,光纤直径约 200 µm 的一半 | 注意是半径,直径要除以 2 |
| n | 组织的折射率,1.36 | n 越大,光进组织时折得越向轴线,锥越窄 |
| NA | 光纤的数值孔径,0.37 | 光从光纤口出来时张得多开,越大越开 |
代一遍:r = 0.1 mm,n = 1.36,NA = 0.37,ρ 是多少?
n/NA = 1.36 ÷ 0.37 ≈ 3.676,平方得 13.51,减 1 得 12.51,开方得 3.537,乘 r = 0.1 mm,ρ ≈ 0.354 mm。
光走到深度 z,离尖的距离是 z + ρ。锥的半径和这个距离成正比,面积和它的平方成正比,同样的光分到的面积,是光纤口处的 (z + ρ)²/ρ² 倍,每平方毫米上的光强就是出口的 G(z) = ρ²/(z + ρ)²。这一项只和光纤、折射率有关,叫几何扩散。
只数光的总量
我先看到组织是透明的,一点光也没吃掉,所以断定光走到 1 mm 处,还和出口一样亮。这一步把「光没少」当成了「光强没变」。光的总量确实没少,可亮不亮,看的是每平方毫米上有多少。
数每平方毫米
我先问这些光铺在多大的面积上。光纤口的面积约 0.031 mm²。走到 1 mm,锥的半径长到光纤口半径的 (1 + 0.354)/0.354 ≈ 3.8 倍,约 0.38 mm,光斑直径约 0.77 mm,面积约 0.46 mm²,大了约 15 倍。总量不变,面积大 15 倍,每平方毫米只剩约 1/15。
差别在:数的是光的总量,还是每平方毫米上的光;亮不亮,看后者。
只算几何扩散,光走到 z = ρ 处,也就是离光纤口约 0.354 mm 时,光强是出口的几分之几?再往前走到 z = 2ρ 呢?
变式:换一根数值孔径更大的光纤,ρ 变大还是变小?同一个深度 z 处,几何扩散让光强剩得更多还是更少?
答辩:如果我是审稿人
脑组织不是透明的,你为什么还要先算一个根本不存在的「完全透明」的情形?
参考防守(先自己组织语言再看)
先把两件事拆开,才看得清各自管多少。只算几何扩散,是算「光纤口出来的光是锥形」这一件事单独造成的损失,下一节再加散射。到那时会看到一个反直觉的结果:两样合起来,比任何一样单独算都浅得多。如果一上来就把两件事搅在一起,这个结果就看不出来。
11.2 再加上组织把光打散,1 mW/mm² 能走到多深?
脑组织像牛奶,会把光打散。光从光纤口出来,只看散射(先不管光锥变宽),走进 0.1 mm,也就是大约一根头发丝那么深,沿原来方向继续往前走的光还剩多少?
答完再看
第二个对。Tecuapetla 等人 2014 年在小鼠纹状体里实测:473 nm 的光穿过 100 µm,功率降到 50%,穿过 1 mm,降掉 90%。第一个低估了组织把光打散的本事,一根头发丝的厚度就够了。第三个又高估了,100 µm 处还剩一半,要走到约 1 mm 才剩一成。
牛奶里有很多细小的颗粒,手电筒照进牛奶,光碰到颗粒就拐弯,沿原来方向继续往前的光越来越少。脑组织里的细胞和纤维起的是同样的作用。打散得有多厉害,用散射系数 S 表示,单位 mm⁻¹,S 越大,越不透。牛奶里的光没有消失,只是被打散到了各个方向,下面的算法只数还在往深处走的那一份,组织对光的吸收也没有算进去。
最简单的算法给出:走过深度 z,沿原方向继续走的光占 T(z) = 1/(S·z + 1)。这个式子来自组织光传输的 Kubelka–Munk 模型,取的是组织不吸光时的特例,Aravanis 等人和 Schmid 等人用的就是它。推导要解两个联立的微分方程,这里直接拿来用,再用实测去检验它。
473 nm 的光,S 取 10.3 mm⁻¹,这是 Schmid 等人 2016 年转述 Aravanis 等人的模型时用的值。那么走到 z = 1/S ≈ 0.097 mm,T 掉到一半,走到 9/S ≈ 0.87 mm,掉到一成。这个形状和第 0 章 0.6 的指数衰减不同:开头掉得快,后面掉得越来越慢。
纹状体里实测 473 nm 光的 S = 12.0 mm⁻¹。只看散射项 T(z) = 1/(S·z + 1),穿过 0.1 mm 和 1 mm 之后,沿原方向的光各还剩百分之几?和实测的「穿过 100 µm 降到 50%,1 mm 处降掉 90%」比,对得上吗?
变式:561 nm 的光实测 S = 9.0 mm⁻¹,穿过 0.1 mm 之后还剩百分之几?
几何扩散:光还在往前走
我先看到光锥越走越宽,光子没有少,只是铺在更大的面积上,每平方毫米上的光子数变少。它只和光纤口的大小、光锥张得多开有关,换一块组织,这一项不变。
散射:光被拐去了别的方向
我先看到光碰到细胞和纤维就拐弯,一部分光子不再往深处走。它和组织有关,也和光的颜色有关,换一块组织,换一种颜色,这一项就变。
差别在:一个是光子还往前、只是铺开了,一个是光子被拐走、不再往前。
两件事各管各的,合起来是相乘。道理和连续打折一样:先按几何扩散,每平方毫米上只剩出口的 G,再从这剩下的里面,按散射又只留 T,两个比例连着乘,就是最后剩下的比例:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| I(z) | 深度 z 处的光强,单位 mW/mm² | 光走到那里,每平方毫米还剩多少 |
| I0 | 光纤口的光强,本章取 380 mW/mm² | 出发时的光强 |
| z | 离光纤口的深度,单位 mm | 光走了多远 |
| S | 散射系数,473 nm 时取 10.3 mm⁻¹(Schmid 等人 2016 转述 Aravanis 等人的值) | 组织把光打散的本事,越大越不透 |
| ρ | 式 11-1 算出的数,约 0.354 mm | 光锥张开的快慢,几何扩散那一项里的尺度 |
| 两个因子 | ρ²/(z + ρ)² 是几何扩散,1/(S·z + 1) 是散射 | 先各算各的,再乘起来 |
本章的光纤,出口 380 mW/mm²。只留几何扩散时,光强降到 1 mW/mm² 要走到约 6.5 mm;只留散射时,要走到约 37 mm。两样都留,1 mW/mm² 会出现在多深?先猜,再去拨下面的实验室。
答完再看
第三个对。两个因子相乘,光每走一步,既要铺开,又要被打散,两个因子同时在变小,乘起来比任何一个都小。1 mm 处,只算几何扩散还剩约 26 mW/mm²,只算散射还剩约 34 mW/mm²,两样一起只剩约 2.3 mW/mm²。第一个和第二个都把两种损失当成了「取其一」,没有想到它们是叠在一起的。
把实验室的参数停在本章的取值,应该读到 1 mW/mm² 在约 1.40 mm 深处,10 mW/mm² 在约 0.51 mm。再试「只算几何扩散(不散射)」和「只算散射(不扩散)」两个开关,读到的应该是约 6.5 mm 和约 37 mm,和上面那道预测题里的数对得上。这里的「1 mW/mm²」要说清楚身份:它是文献里常用的估算值,用来粗略判断光够不够,Schmid 等人 2016 年写的就是「假设」,没有人把它当成 ChR2 的实测性质来测。Boyden 等 2005 年在培养神经元上用的是 8 到 12 mW/mm²。所以本章把 1 和 10 当作两把尺子,一把是常用的估算,一把和 Boyden 等人用光的量级一样。
先验一下:下面表里 0.5 mm 那一行,几何扩散 0.172 乘散射 0.163,等于最后几列里的 I(z)/I0 吗?
0.172 × 0.163 ≈ 0.0280,和表里的 0.0279 只差四舍五入。再乘 380 得 10.6 mW/mm²,也就是说 10 mW/mm² 落在 0.5 mm 稍深一点的地方,和上面读到的 0.51 mm 一致。
| 深度 z(mm) | 几何扩散 | 散射 | I(z)/I0 | I(z)(mW/mm²) |
|---|---|---|---|---|
| 0.1 | 0.608 | 0.493 | 0.299 | 114 |
| 0.3 | 0.293 | 0.245 | 0.0716 | 27 |
| 0.5 | 0.172 | 0.163 | 0.0279 | 10.6 |
| 1.0 | 0.068 | 0.0885 | 0.0060 | 2.3 |
| 1.5 | 0.036 | 0.061 | 0.0022 | 0.84 |
答辩:如果我是审稿人
你算出 1 mW/mm² 在 1.40 mm 深处,小数点后留了两位,可散射系数 S 换一种组织、换一次测量就不一样,这个数还有意义吗?
参考防守(先自己组织语言再看)
数的两位小数不重要,量级才重要。本章的 S = 10.3 mm⁻¹ 是 Schmid 等人转述的 Aravanis 模型里的值,纹状体里 Tecuapetla 等人实测的是 12.0 mm⁻¹,相差不到两成,套进同一个公式,1 mW/mm² 的深度从 1.40 mm 变成约 1.32 mm。换一种组织,结论仍是毫米这个量级,不会变成厘米,也不会变成十分之一毫米。
11.3 把出口光强加大 10 倍,就能照深 10 倍吗?
出口光强是 100 mW/mm² 时,1 mW/mm² 出现在约 0.81 mm 深处。现在换一根能送出 380 mW/mm² 的光纤,光强大约是原来的 4 倍。这个深度会变成多少?
答完再看
第二个对,1.40 ÷ 0.81 ≈ 1.7。第一个把深度和光强当成了正比,两种衰减叠在一起,光强随深度掉得越来越陡,多出来的光只换来一点点深度。第三个又走过头了,出口光强一变,整条曲线都跟着抬高,1 mW/mm² 的位置会往深处挪,只是挪得很少。
表 11-2 把几个出口光强都算了一遍。出口光强从 10 加到 100,整整 10 倍,1 mW/mm² 的深度从 0.24 mm 到 0.81 mm,只深了 3.3 倍;从 100 加到 380,约 4 倍,深度从 0.81 mm 到 1.40 mm,深了 1.7 倍。再取一对:从 38 加到 380,也是整整 10 倍,1 mW/mm² 的深度从 0.51 mm 到 1.40 mm,只深了 2.7 倍。起点越亮,同样的 10 倍换来的深度越少,光强加得越多,深度回报越少。
| 出口光强(mW/mm²) | 10 mW/mm² 的深度(mm) | 1 mW/mm² 的深度(mm) |
|---|---|---|
| 10 | — | 0.24 |
| 50 | 0.15 | 0.59 |
| 100 | 0.24 | 0.81 |
| 380 | 0.51 | 1.40 |
按表 11-2,出口光强从 50 加到 380 mW/mm²,1 mW/mm² 出现的深度从 0.59 mm 变到 1.40 mm。光强是原来的几倍,深度是原来的几倍?两个倍数比一比,说明什么?
变式:出口光强从 10 加到 100,也是整整 10 倍,深度变成了几倍?它比 7.6 倍对应的 2.4 倍大还是小?
加大出口光强
我先看到的是「光不够亮」,所以去调光强。要让原来离光纤 1.40 mm 的细胞照到 1 mW/mm²,100 mW/mm² 的光纤要加到 380,约 4 倍的光,光纤口附近的发热也跟着多。
把光纤往前送
我先看到的是「细胞太远」,所以去缩短距离。光纤往前送约 0.6 mm,细胞到光纤口只剩约 0.8 mm,100 mW/mm² 就够,出口光强没有动。代价是光纤得送到靶区旁边,只能照到那一小块。
差别在:先问是光不够亮,还是距离太远;后一种办法更省光。
还有第二层原因,光太强会让组织发热。上一节的算法没有算吸收,可吸收真实存在,光被组织吸收的那一份变成了热,出口光强越大,光纤口附近的组织升温越多,升温本身也会影响细胞。所以光强这条路不光深度回报越来越少,往上加也会很快走到头。把「光开关的作用」和「发热的作用」分开,是第 14 章设对照组时要解决的事。
自己推一遍:为什么深度要翻一倍,光强得加到 5 到 8 倍
走得很远,z 比 ρ 大得多,S·z 比 1 大得多时,式 11-2 里的两个括号可以怎么近似?
想好了再看
(z + ρ)² 近似成 z²,S·z + 1 近似成 S·z,式子变成 I ≈ I0·ρ²/(S·z³)。几何扩散带来一个 1/z²,散射带来一个 1/z,乘起来就是 1/z³。
给定一个目标光强 I,把上面的近似式反过来,解出 z 和 I0 的关系。
想好了再看
z³ ≈ I0·ρ²/(S·I),所以 z 和 I0 的立方根成正比。
出口光强加到 8 倍,深度会变成几倍?
想好了再看
8 的立方根是 2,深度翻一倍,要付 8 倍的光。这是走得很远时的极限,近处要付的比 8 倍少,下面两步会看到。
用表 11-2 的 100 和 380 检验一下:立方根给出多少倍,公式精确算出多少倍,为什么两者有差?
想好了再看
光强是 3.8 倍,立方根给约 1.56 倍,精确算出 1.7 倍多一点。差来自近似:0.81 mm 和 1.40 mm 只有 ρ 的两三倍到四倍,括号里的 ρ 和 1 还不能忽略。再往深处走,实际倍数会靠近立方根的结果。
再检验一次:深度从 0.7 mm 翻到 1.4 mm,再从 1.4 mm 翻到 2.8 mm,要让 1 mW/mm² 刚好落在那里,出口光强各要加到几倍?是 8 倍吗?
想好了再看
把式 11-2 变形,要让 1 mW/mm² 落在深度 z,出口光强 I0 = (S·z + 1)(z + ρ)²/ρ²,单位 mW/mm²。z = 0.7 mm 要约 73,1.4 mm 要约 379,2.8 mm 要约 2370。所以 0.7 到 1.4 mm 要加到约 5.2 倍,1.4 到 2.8 mm 要加到约 6.3 倍,都还没到 8 倍。再往深处一次次翻倍,倍数一路靠近 8。所以「翻一倍要 8 倍的光」是深处的极限,在本章讨论的一两毫米里,实际是 5 到 6 倍多。
第 6 章的光子账只给了倍数:在同一个细胞、同样的表达量、同样的吸光本领下,要产生同样大的电流,泵需要的光子是通道的 160 到 9700 倍。它没有告诉我们任何一个通道或泵需要多少 mW/mm²,所以这道题借用本章的尺子:假设有一个通道,光强到 1 mW/mm² 刚好够用,这是本章的约定,不是哪一个通道的实测。光纤出口 380 mW/mm²,按本章的公式,这个通道最深能照到哪里?同样的前提下,如果泵需要的光强是通道的 10 倍、100 倍、1000 倍,各自最深能照到哪里?
变式:取第 6 章区间的低端,泵需要的光强是通道的 160 倍,它在这根光纤下最深能照到哪里?比通道浅了多少倍?
答辩:如果我是审稿人
你说光太强会发热,可你一个升温的数都没给,这个说法站得住吗?
参考防守(先自己组织语言再看)
站得住的是方向,不是数字。光被组织吸收,变成热,这是必然的;升几度,要看光的颜色、开多久、照在哪块组织,本章没有一个可靠的数,所以只写方向,不编数字。这也是为什么第 14 章要专门设对照组,把「光开关的作用」和「发热的作用」分开。
11.4 已知出口光强,怎么算 1 mW/mm² 走到了多深?
表 11-2 只有四行,换一个出口光强就没有了。想自己算,第一反应是把式 11-2 变形,直接解出 z。试一试就会发现,z 同时出现在 S·z + 1 和 (z + ρ)² 两个括号里,整理出来是一个三次方程,没有一个整洁的解。这时候要换一种思路:已知深度,求光强,把数代进去就行;已知光强,求深度,就要靠试。
已知深度,求光强
我先看到 z 是已知的,所以不用试,直接代入。先算 ρ = 0.1 × √((1.36/0.37)² − 1) ≈ 0.354 mm。再代入 z = 1.0 mm:I/I0 = 0.1251/(11.3 × 1.8325) ≈ 0.0060,乘 380,约 2.3 mW/mm²。最怕单位出错,r、z、ρ 都要用 mm。
已知光强,求深度
我先看到 z 是未知的,式子解不出来,所以排除「变形求 z」。光强随深度单调下降,从 z = 0 的 380 一路掉下去,每个光强只对应一个深度,所以可以试:太亮就往深走,太暗就往浅走,把答案夹在中间。
差别在:未知量在哪里,已知深度可以直接算,已知光强要靠试。
来走一遍:出口 380 mW/mm²,要找 1 mW/mm² 的深度,也就是 I/I0 = 1/380 ≈ 0.00263。先挑一浅一深夹住答案,再往中间收。
| z(mm) | I(z)(mW/mm²) | 和 1 比 | 下一步 |
|---|---|---|---|
| 1.0 | 2.30 | 太亮 | 往深走 |
| 2.0 | 0.40 | 太暗 | 答案夹在 1.0 和 2.0 之间,取 1.5 |
| 1.5 | 0.84 | 稍暗 | 只差一点,往浅处试 1.4 |
| 1.4 | 1.00 | 对上了 | 停下,答案约 1.40 mm |
我选试探,是因为光强随深度单调下降,试出来的方向一定有意义。算完把 z = 1.40 代回式 11-2,得到约 1.00 mW/mm²,检查通过。这个模型在较深处偏乐观:Al-Juboori 等人 2013 年的测量里,走过约 200 µm 以后,光衰减得比这个模型快得多,所以本章算出的深度,更像是上限,实际会更浅一些。
要让 2.0 mm 深处刚好达到 1 mW/mm²,光纤出口至少要多亮?取 S = 10.3 mm⁻¹,ρ = 0.354 mm。
变式:出口光强还是 380 mW/mm²,2.0 mm 深处的光强是多少?
一个同学读到光纤直径约 200 µm,就把 r 取成 0.2 mm,其余参数照本章,算出出口 380 mW/mm² 时 1 mW/mm² 出现在约 2.2 mm 深处。他错在哪一步?改正以后答案是多少?
变式:把光纤换成直径约 400 µm 的,数值孔径、折射率不变,ρ 会变成多少?
组织里有 A 类细胞 100 个,表达光开关,深度在 0 到 2 mm 之间均匀排开;B 类细胞 100 个,不表达,也均匀排开。光纤出口 380 mW/mm²,S = 10.3 mm⁻¹,把文献里常用的估算值 1 mW/mm² 当成激活的门槛。哪些细胞会响应?大约有多少个?如果门槛换成 10 mW/mm²,又是多少个?
变式:A 类细胞只分布在 0.6 到 1.2 mm 之间,门槛 1 mW/mm² 时,会有几个响应?
11.5 红光为什么走得更远?
回到手电筒贴手掌:透出来的光偏红。手里有血,血会吸掉不少蓝光和绿光,所以偏红有一部分是吸收的功劳,不全是散射。本章的模型只算散射,不算吸收,它能讲清的是另一半:组织打散光的本事和波长有关,波长越长,散射越弱,红光被打散得少,走得就远。纹状体里有实测:473 nm 的光 S = 12.0 mm⁻¹,561 nm 的光 S = 9.0 mm⁻¹(Tecuapetla 等 2014)。把这两个 S 换进式 11-2,光纤参数不变,得到下面的表。
| 光的颜色 | S(mm⁻¹) | 10 mW/mm² 的深度(mm) | 1 mW/mm² 的深度(mm) |
|---|---|---|---|
| 473 nm(蓝) | 12.0 | 0.48 | 1.32 |
| 561 nm(黄绿) | 9.0 | 0.54 | 1.47 |
473 nm 和 561 nm 的光,在同一块纹状体里,哪一种走得更深?依据是什么?
变式:别的条件不变,把波长换成比 561 nm 更长的光,S 会比 9.0 大还是小?
换成 561 nm,深度只多约一成,不算多。可这一成不用多加一分光就能得到,而光强要多加一大截才换得来同样的深度。ChR2 吸的是约 470 nm 的蓝光,要用更红的光,就得有吸更红光的光开关,这是第 13 章要讲的红移光开关的出发点,比如 Chrimson,峰值约 590 nm。
对你而言未知摘要里的三个数,为什么按纤芯面积算对不上?
Aravanis 等 2007 年的摘要写,激光输出 20 mW,光纤直径约 200 µm,出纤光强约 380 mW/mm²。20 mW 除以纤芯面积 π × (0.1 mm)² ≈ 0.0314 mm²,得到约 637 mW/mm²,比 380 大。差出来的那一份去了哪里,摘要没有写,本站也没有读到这篇论文的正文,所以这里不下结论。
先做这一步:把 20 mW 除以纤芯面积,算出 637,再用 380 ÷ 637 算出一个比例;去读那篇论文的正文,找出「出纤光强」是怎么定义的、光从激光器耦合进光纤时有没有损失,再回来看这个比例像不像一个耦合效率。
给虚拟实验台加一个光强函数 I(z):每个细胞按深度拿到自己的光强
为什么现在才加它:前面的台阶里,光覆盖的地方处处一样亮,lit(c) 只有 0 和 1。真实的光走进组织会衰减,所以每个细胞要拿到的是一个随深度变化的数,再和台阶 10 的表达表一起,决定谁响应。
难点:这一级的错误几乎都出在输入上。其一是单位,r、z、rho 全用 mm,S 用 mm⁻¹,把 0.1 mm 写成 100 会差出一千倍。其二是 r 取成直径,光纤直径约 200 µm,半径是 0.1 mm,取 0.2 会把 1 mW/mm² 的深度算成约 2.2 mm。其三是把 1 mW/mm² 写死在代码里,它是文献里常用的估算值,不是 ChR2 的性质,要写成参数,才能换成 10 再跑一遍。这一级先不管细胞离光轴有多远,假定它们都在光纤正下方。
自己验:I0 = 380、S = 10.3、NA = 0.37 时,I_of_z(0) 应该等于 380,I_of_z(1.0) 应该约 2.30;1 mW/mm² 应该出现在约 1.40 mm 深处,10 mW/mm² 在约 0.51 mm,用几次试探就能找到。再放 100 个 A 类细胞,深度在 0 到 2 mm 之间均匀排开,I_TH = 1 时响应的应该约 70 个,改成 I_TH = 10,应该约 26 个。四个都对上,这一级就成了。
读的时候要小心:S = 10.3 从哪里来,1 mW/mm² 是什么身份,模型走深了会偏乐观
本章的光强公式来自 Aravanis 等人 2007 年的模型。本站没有读到那篇论文的正文,公式和 S = 10.3 mm⁻¹ 都取自 Schmid 等人 2016 年的转述。Schmid 把这个 S 写成大鼠灰质里测的,另有文献把 Aravanis 的数据说成小鼠皮层,两边对不上,所以 10.3 只能当一个典型取值;纹状体里 Tecuapetla 等人的实测是 12.0 mm⁻¹(473 nm)和 9.0 mm⁻¹(561 nm)。「约 1 mW/mm²」是文献里常用的估算值,Schmid 等人写的就是「假设」,它不是 ChR2 的实测性质。380 mW/mm² 取自 Aravanis 的摘要,摘要里的功率和光纤直径按纤芯面积算,对不上这个数,见上面的研究题。较深处这个模型偏乐观,Al-Juboori 等人 2013 年的测量里,走过约 200 µm 以后光衰减得比它预测的快,所以表里的深度更像上限。发热只写了方向,本站没有升温的数。
留给你的问题
同样这根光纤,要让深度 2 mm 的 A 类细胞也被照够,你能想到几种办法?每一种各要付出什么代价?
不看材料,写下这一章的三堵墙
第一堵:光不是往前直走、强度不变,光纤口出来是一个锥,同样的光铺在越来越大的面积上,每平方毫米越来越少,这一项只和光纤、折射率有关。第二堵:组织像牛奶,把光打散,沿原方向继续走的光按 1/(S·z + 1) 变少,两样相乘,比任何一样单独算都浅得多,约 1.4 mm 就掉到 1 mW/mm²。第三堵:加大出口光强换不来同样的深度,要深一倍,光强在一两毫米里得加到 5 到 6 倍多,往深处趋近 8 倍,还会发热;换成更红的光只多一成,还得有吸红光的光开关。所以实际做法是把光纤送到靶区旁边。
第12章 让神经元闭嘴
同一个氯通道,换一换细胞里的氯,抑制变成了兴奋
开篇故事第 12 集 · 氯通道一开,膜电位往上爬一束蓝光的十八天
光台的喇叭里,代表膜电位的那道长音随着光亮起来一点点尖了上去,像收音机调台时往上爬的啸叫,电极老炮盯着读数从 −65 mV 爬到了 −56 mV,嘴张着,半天没有合上。
系统提示氯通道已经打开:胞内氯 5 mM 的神经元,膜电位从 −65 mV 向约 −85 mV 靠近,胞内氯 15 mM 的神经元,膜电位从 −65 mV 向约 −56 mV 靠近,离放电更近了一步。
系统提示电极老炮预测两个神经元的膜电位都会往更负的方向走,预测只对了一个,赌约判负,按约定停光台一天。
半个小时之前,岑老师出的题目是让光台里的神经元在光下闭嘴。衣藻本藻举着一页打印出来的摘要说,光激活氯通道 GtACR2,会抑制胞体,却让突触前末梢去极化,还引起神经递质释放,同一种氯通道,两头的结果竟然相反。电极老炮把螺丝刀往桌上一放,说氯离子带负电,进来就把膜拉负,这跟拆收音机一样简单,哪一头都一样。衣藻本藻没有争,只是在光台里摆了两个神经元,胞外氯都是约 120 mM,一个胞内氯 5 mM,一个涨到了 15 mM,两边约好,输的人明天一整天不许进光台。
电极老炮盯着那条还在往上爬的读数,声音发干:“氯离子明明带负电,它进来,膜电位凭什么往上走?”
许一舟昨晚背光强表背哑了嗓子,这时候坐在旁边的凳子上,一声不吭地翻着自己的本子。岑老师走过来,用指节敲了敲光台的边缘,说:“氯离子往里进还是往外出,看膜电位在氯的平衡电位上面还是下面,和它带什么电没有关系。胞内氯 5 mM,平衡电位约 −85 mV,比静息的 −65 mV 低,氯往里进,膜被拉向 −85。涨到 15 mM,平衡电位约 −56 mV,氯的平衡电位比静息电位高,通道一开氯离子是往外出的,里面的负电荷少了,膜就被推向 −56。”
电极老炮把手指戳在喇叭上:“那有没有一样,在这个神经元里也压得住的?”岑老师把氯通道换成了只往外送电流的泵,喇叭里的长音掉了下去,越沉越低,像一口长长的叹气。“泵的电流方向由泵自己定,永远往外,不看平衡电位。”她说,“代价在光,一个光子至多搬一个离子,同样大的电流,泵要吸的光子比通道多出两到四个数量级。”
认栽帖:氯通道把氯离子放进来,膜电位怎么反而往上爬了
1L电极老炮停一天光台我认,可我至今想不通,氯离子明明带负电,进来就该把膜往负拉,凭什么能把膜往正的那边推。
2L衣藻本藻1L 的前提不对,氯离子往哪边走看的是平衡电位,不看它带什么电,5 mM 是约 −85 mV,15 mM 是约 −56 mV,把这个数画在 −65 mV 的上面还是下面,结果就出来了。
3L蓝光过敏那把氯通道开得更大不就行了,光开大一点,总能把 15 mM 的神经元压下去吧,我替 1L 再赌一次。
4L许一舟不行,通道开得越大,膜电位只会贴得越紧,贴的是平衡电位,15 mM 时它在约 −56 mV,比静息的 −65 mV 还高,开得再大也只是贴着那个更高的数。
5L岑(带教认证)2L 和 4L 说得对。泵的方向固定,可是费光,比如 NpHR 这种把氯离子推进细胞的泵,持续照光时超极化还会以约 16.8 秒的时间常数衰减,用氯通道之前要先问清楚,想抑制的那个部位平衡电位在哪里。
光台熄灯之前,每个人都收到了一条还没点开的通知,标题只有一句话:明天上午,每人拿自己剩下的机时去竞拍光开关,你想买哪一个?
系统结算 · 本章考点
- 氯通道往哪边走,看 E_Cl:E_Cl = (RT/F)·ln([Cl⁻]内/[Cl⁻]外),37 °C 时 RT/F = 26.73 mV,胞外氯取 120 mM
- 胞内氯 5 mM 时 E_Cl 约 −85 mV,在静息电位 −65 mV 的下面,通道一开往下拉;15 mM 时约 −56 mV,在上面,通道一开往上推,离放电更近
- Cl⁻ 往哪边走,看膜电位和平衡电位谁高,和它带什么电没有关系;V 比 E_Cl 低,电流内向,膜电位往正走
- 泵的电流恒定外向,大小只看光,不看 V,也不看 E_Cl;NpHR 把 Cl⁻ 推进细胞,Arch 把 H⁺ 推出细胞,在膜上都等价于外向电流
- 泵的代价:一个光子至多搬一个离子,同样大的电流,比通道多吸两到四个数量级的光子;NpHR 持续照光,超极化以 16.8 s 的时间常数衰减
- GtACR(2015)是光门控氯通道,光敏度比泵高约 10² 到 10⁴ 倍;2018 年 Messier 等人看到 GtACR2 抑制胞体,却使突触前末梢去极化,可以用不同部位的 E_Cl 去读
家里的电灯,开关往上拨亮,往下拨灭。神经元不一样,它自己就在放电,要它多说几句,光可以催一下,要它闭嘴,只是不催它,它照样说个不停。想让它真的安静下来,得有东西在光下主动把它压住。这一章讲三种压法,各有各的代价,其中一种还有个容易忽略的毛病:换一个部位,压制会变成催促。
学完这一章你应该能做到
- 说出「不开灯」为什么不等于「让神经元闭嘴」,抑制实验为什么要一个在光下主动压低放电的工具
- 用 I = g(V − E) 判断氯通道一开,电流往哪个方向走,膜电位往哪个方向变
- 从胞内氯浓度算出 ECl,说明胞内氯从 5 mM 变到 15 mM,同一个通道为什么会从抑制变成往上推
- 比较泵和通道:电流的方向由什么定,要多少光,各自付出什么代价
- 给定一个部位,把 ECl 放在静息电位和阈值的数轴上,判断氯通道在那里是抑制、引不起放电,还是兴奋
- 给虚拟实验台加两个抑制模块,通道的电流看 ECl,泵的电流只看光
这一章给虚拟实验台加两个抑制模块:一个是氯通道,电流是 gCl 乘 V − ECl,ECl 从胞内外的氯浓度算出;一个是泵,电流是由光定的恒定外向电流,不看 V,也不看 E。前面的台阶里,光只会让细胞兴奋,想让细胞安静,只能撤光;加上这两个模块以后,光可以主动把一个正在放电的细胞压下去,也可能因为一个浓度,反把它推向放电。
12.1 神经元自己就在放电,不开灯不就等于让它闭嘴了吗?
一位研究者想知道,某一群神经元对动物的某个行为是不是少不了。他在这群神经元里装了 ChR2,然后一点光也不给,动物的行为和平时一样。他写道:这群神经元不是必需的。这个结论站得住吗?
答完再看
第二个对。ChR2 在暗处只是躺在膜里,孔关着,对细胞什么也没改变,神经元该怎么放电还怎么放电。要回答「少了它们,行为还在不在」,得让它们在同一只动物身上真的安静下来。第一个把「不开灯」当成了「把细胞关掉」,两件事差在细胞有没有被改变。第三个把 ChR2 和细胞自己的放电混在了一起,神经元的放电靠它自己的钠通道和钾通道,不靠 ChR2。
这是第一堵墙。第 1 章的三把尺子里有一把是「能开也能关」,那一章说的是撤掉刺激以后,细胞多快能恢复原样。放到抑制实验里,还要多问一层:能不能主动把神经元压下去,让它在光下比平时更安静。撤掉光,回到的是平时的样子,压下去,才是被改变过的样子,只有后一种,才能拿来问「没有它们,行为会怎样」。
装了 ChR2,不开灯
我先看到孔全关着,膜上没有多出任何电流,膜电位和放电都和平时一样。所以这一格看到的是「平时」,细胞没有被改变,也就谈不上「关掉」。最怕把它记成「抑制组」。
装了抑制工具,开灯
我先看到光一照,膜上多出一股把膜电位往下拉、让放电变难的电流,放电比平时少。所以这一格看到的是「被压下去的样子」,才能拿来和平时比。
差别在:细胞有没有被改变;被改变了,才能问没有它们会怎样。
三个实验,作用在同一类神经元上。甲:装了 ChR2,不给光。乙:装了一种在光下压低放电的工具,给它能吸收的那种光。丙:没装任何光开关,给光。哪一个才是让这类神经元真的安静下来?另外两个各是什么?
变式:把乙里的光撤掉,神经元回到什么状态?这和甲有什么相同?
答辩:如果我是审稿人
想知道少了这群神经元会怎样,把它们永久毁掉,不是比用光更彻底吗?
参考防守(先自己组织语言再看)
彻底是彻底,却是单向的。毁掉以后,同一只动物再也回不到有它们的样子,没法在同一只动物身上前后比较,也没法只关一小会儿,看看它们刚才在做什么。用光的办法,光一撤,抑制就撤,同一个细胞、同一只动物,开了再关、关了再开,前后对照就在一次实验里完成。
12.2 让氯离子进来的通道,一定会让膜变负吗?
有一种光开关,是只让氯离子通过的通道,光一照就打开。成熟神经元的胞外氯约 120 mM,胞内约 5 mM。再设想另一个神经元,胞内氯涨到了 15 mM,其他都一样。光把通道打开,这两个神经元各会怎样?
答完再看
第二个对。Cl⁻ 往哪边走,看膜电位和氯的平衡电位谁高,和它带什么电没有关系。胞内 5 mM 时 ECl 约 −85 mV,在静息电位 −65 mV 的下面,通道一开,膜电位被拉向 −85。胞内 15 mM 时 ECl 约 −56 mV,在 −65 的上面,通道一开,膜电位被推向 −56,往放电的方向走。第一个只看了 Cl⁻ 带负电,漏了它往哪边走要看浓度差。第三个把浓度的作用想成了通道的劲,浓度改的是 ECl 的位置。第四个把「同一个通道」当成了「同一个结果」,通道一样,推动 Cl⁻ 的电位差不一样。
超极化与去极化(hyperpolarization / depolarization):膜电位往比静息更负的方向变,叫超极化;往更正的方向变,叫去极化。
通道一开,Cl⁻ 就能自由出入。电流的写法第 3 章式 3-2 已经给过:I = g(V − E),约定正为外向,也就是按正电荷移动的方向来记。Cl⁻ 带负电,它往里进,对膜电位的效果和正电荷往外出一样,所以也记作外向。氯通道的 E 就是 ECl。V 比 ECl 高,说明里面比 Cl⁻ 愿意停的位置更正,带负电的 Cl⁻ 被吸进来,电流为正,外向,里面的负电荷多了,膜电位往负走。V 比 ECl 低,Cl⁻ 往外出,电流为负,内向,里面的负电荷少了,膜电位往正走。
一个氯通道,电导 gCl = 0.2 mS/cm²,此刻膜电位 V = −65 mV,ECl = −45 mV。电流是正还是负,多大?Cl⁻ 在进细胞还是出细胞?膜电位往哪边走?
变式:ECl 换成 −85 mV,其余不变,电流变成多少?方向和上面有什么不同?
ECl 不是通道自带的数,由胞内外的氯浓度定。把第 2 章式 2-1 里的 z 取 −1,前面多出一个负号,负号可以并进对数里(−ln(a/b) = ln(b/a)),里外两个浓度的上下位置就颠倒一次,得到:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| RT/F | 37 °C(310.15 K)时 26.73 mV | 和第 2 章是同一个数,第 2 章写成约 26.7,这里多留一位,下面的得数末位才对得上 |
| [Cl−]外 | 胞外氯,取 120 mM(本站模型里的取值) | 这一章里不动它 |
| [Cl−]内 | 胞内氯,成熟神经元约 5 mM,可以在 5 到 15 mM 甚至更高之间变 | 它一变,ECl 就跟着挪 |
胞内氯 5 mM
我先算 ECl = 26.73 × ln(5/120) ≈ −84.9 mV,比静息 −65 低。再看方向,V − ECl = +19.9 mV,为正,g = 0.2 mS/cm² 时电流约 +4.0 µA/cm²,外向,Cl⁻ 在进,膜往负走。检查一下,−84.9 在 −65 的下面,方向和这一步一致。
胞内氯 15 mM
我先算 ECl = 26.73 × ln(15/120) ≈ −55.6 mV,比静息 −65 高。再看方向,V − ECl = −9.4 mV,为负,电流约 −1.9 µA/cm²,内向,Cl⁻ 在出,膜往 −55.6 走,也就是往正走。最怕沿用上一格的结论,写成「氯通道,所以往负走」。
差别在:ECl 在静息电位的下面还是上面,决定电流往哪边,膜电位往哪边。
先别拨,猜一猜:胞内氯在 5 mM,对一个正在放电的神经元打开氯通道,放电会怎样?把胞内氯拖到 30 mM,再看一次呢?对不放电的静息神经元呢?猜完再去拨。页面里的「放电门槛」线是这个模型自己算出来的:在静息的模型神经元上打开通道,ECl 至少要升到多高,它才会放电。这个数和后面习题里设的 −50 mV 不必相等。
在这个页面里,氯通道是压住放电还是引起放电,看的是 ECl 画在哪里。电导留在默认的 1 mS/cm² 来拨:胞内氯 5 mM,ECl 约 −85 mV,放电中的神经元在光下一次也不放。拨到 15 mM,ECl 约 −56 mV,已经比静息电位高,放电中的神经元照样被压住,这是分流,不是超极化。拨到 30 mM,ECl 约 −37 mV,它在光下反而比没有通道时放得更多。换成静息的神经元,ECl 一超过「放电门槛」,也就是约 −57 mV(胞内氯约 14 mM),一开灯就放出一次电,要在整个光照期里持续放电,得把胞内氯拖到约 38 mM。这个门槛只属于页面里的枪乌贼模型,换一种神经元会是另一个数。通道还是那个通道,变的只有氯的浓度。
先想一想:15 mM 时 ECl 已经比静息电位高,放电中的神经元为什么还会被压住?
放电要靠钠门开出来的往里的电流,把膜电位一路推到 +40 mV 上下。电导大的氯通道一开,氯电流很大,一直把膜电位往 ECl 附近拽,约 −56 mV,钠门那点往里的电流抵不过它,膜电位冲不上去,放电就没有了。这叫分流:通道没有把膜电位往更负的地方拉,是把膜电位拴在 ECl 附近,让它动不了。
光门控的氯通道有真实的例子。GtACR 是一类光门控的氯离子通道,2015 年由 Govorunova 等人报道,对光特别灵敏,下一节会拿它和泵比。2018 年 Messier 等人发现,光激活 GtACR 家族里的 GtACR2,会抑制胞体,却使突触前末梢(轴突把信号递给下一个细胞的那一头)去极化,并引起神经递质(神经元之间传话的化学分子)释放。这个结果可以用这一节的道理来读:末梢的 ECl 如果比胞体的高,同一个通道,在胞体上往下拉,在末梢上往上推。
某个神经元胞内氯是 10 mM,胞外 120 mM,静息 −65 mV,37 °C。算出 ECl。氯通道电导 0.2 mS/cm²,打开后电流有多大?能不能说这个通道对这个神经元没有作用?
变式:胞内氯换成 7 mM,ECl 比静息电位高还是低?通道一开往哪边拉?
一位同学说:「GtACR2 是氯通道,氯通道在神经元上就是抑制,所以它在胞体上抑制,在突触前末梢上也该抑制,Messier 等人的结果不可能。」这个推理漏掉了什么?用假设的数检查:胞体胞内氯 5 mM,末梢 30 mM(演示用的假设值),胞外 120 mM,静息 −65 mV。两处通道一开,电流各往哪边,膜电位各往哪边?
变式:如果末梢的胞内氯和胞体一样都是 5 mM,Messier 等人看到的现象还会出现吗?
答辩:如果我是审稿人
既然氯通道这么不可靠,为什么还有人用它?
参考防守(先自己组织语言再看)
不可靠是在特定的部位。多数成熟神经元的胞体上,ECl 在静息电位下面,通道一开往下拉,用起来是稳的。它的长处是灵敏:光敏度比泵高约 10² 到 10⁴ 倍(Kim 2018 引言转引),用不着强光,光走不远的深处也够用,第 11 章算过光有多难走。用的时候要在想抑制的那个部位先问一句 ECl 在哪,尤其是末梢。
12.3 泵不看电位差,总能把膜往负拉,它的代价是什么?
一个神经元胞内氯偏高,在 15 mM,静息 −65 mV。现在要在光下把它压住,手里有两种工具:氯通道(ECl ≈ −55.6 mV),和一个只往外送电流的泵。哪一种能保证把膜电位往负的方向拉?
答完再看
第二个对。这个神经元里 ECl 比静息高,通道一开,V − ECl 为负,电流内向,膜往正推,不但没有压住,还在催它。泵的电流是一股恒定的外向电流,推的方向由泵自己定,不管 V 和 E 在哪。第一个只看了电荷的正负。第三个没有分清两种工具的方向由谁决定。第四个把「通道在这里压不住」推成了「什么都压不住」。
通道是开一个孔,离子顺着电位差和浓度差自己流,往哪边流,由 E 说了算。泵是用一个光子,把一个离子推到它自己不想去的那一边,推的方向由泵自己定。本章有两种光驱动的泵,NpHR 把 Cl⁻ 推进细胞,Arch 把 H⁺ 推出细胞,两个方向在膜上都等价于一股外向电流,把膜往负拉。
氯通道(15 mM,ECl ≈ −55.6 mV)
我先问电流往哪走:V − ECl = −9.4 mV,为负,内向,膜往上推,在这个部位它不抑制。电流多大,再看 gCl,0.2 mS/cm² 时约 −1.9 µA/cm²。
泵(外向电流,大小只看光)
我先看到它的电流里没有 V,也没有 ECl,所以不用算方向,永远外向,把膜往负拉。要问的是大小,光越强,电流越大,可它有头,下面会看到。
差别在:通道的方向由 ECl 说了算,泵的方向由泵自己说了算。
NpHR 是氯泵,来自古菌 Natronomonas pharaonis 的盐视紫红质(halorhodopsin)。这类蛋白 1977 年前后被发现,1982 年确立为向内的氯离子泵:光一照,把 Cl⁻ 从胞外泵进细胞。2007 年,Han 与 Boyden(PLoS ONE,3 月在线)和 Zhang 等人(Nature,晚几周)先后把它放进神经元当抑制工具,它吸的黄光和 ChR2 吸的蓝光分得开。Han 与 Boyden 在培养的海马神经元上,用约 560 nm、约 10 mW/mm² 的黄光,测得外向电流 88.7 ± 32.8 pA(22 个神经元)。持续照光时,超极化会以时间常数 16.8 ± 10.4 s 衰减(8 个神经元),细胞之间差别很大。约 10 mW/mm² 的蓝光照 400 ms,可以让它恢复。
Han 与 Boyden 看到,持续光照下,NpHR 造成的超极化以时间常数 τ = 16.8 s 衰减。刚开始照光时超极化幅度记作 100%,照了 17 s,剩下约百分之几?照了 50 s 呢?
变式:超极化衰减到只剩一半,大约要照多久?
2010 年 Chow 等人(Nature)的 Arch 是质子泵(质子就是 H⁺),光一照,把 H⁺ 推出细胞,在清醒小鼠的皮层里几乎完全压住了放电。它和 NpHR 的方向不同,一个往里推 Cl⁻,一个往外推 H⁺,在膜上却是同一个效果。泵的代价有两条。第一条是光。第 6 章按 ChR2 算过,在同一个细胞、同样的表达量和吸光本领下,泵一个光子至多搬一个离子,通道开一次门要过一百多到近一万个电荷,所以同样大的电流,泵要吸的光子比通道多出两到四个数量级。GtACR 是另一种通道,本站没有给它算这笔账,文献里的数只能当旁证:Kim 等 2018 年的引言说,GtACR 的光敏度比泵高约 10² 到 10⁴ 倍,数量级上没有矛盾。光走不深,这笔账就更要紧。第二条是持久,NpHR 上面那个 16.8 s 的衰减,就是持续照光要付的代价。
这是一道假设题。第 6 章的光子账说,在同一个细胞、同样的表达量、同样的吸光本领下,泵一个光子至多搬一个离子,通道一次开门要过一百多到近一万个电荷,所以产生同样大的电流,通道要的光少得多。Han 与 Boyden 让 NpHR 在约 10 mW/mm² 的黄光下产生 88.7 pA 的外向电流。假设在上面那个前提下,有一种氯通道产生同样大的电流,只要泵的 1/100 的光(文献说 GtACR 的光敏度比泵高 10² 到 10⁴ 倍,这里取下限,当作假设的比例,不是 GtACR 的实测)。三问:为什么通道要的光少这么多?通道要多少光?光纤出口 380 mW/mm²,S 取 561 nm 的 9.0 mm⁻¹(拿黄光的 S 来算两个光强,是个近似),这两个光强各出现在多深,通道比泵深几倍?
变式:取文献说的上限,通道比泵灵敏 10⁴ 倍,通道要多少光?
答辩:如果我是审稿人
既然泵这么费光,为什么 2007 年和 2010 年大家还是先用泵?
参考防守(先自己组织语言再看)
本章的三种工具里,GtACR 要到 2015 年才报道,在那之前,能用的是两种泵。泵的好处和代价是一体的:它推的方向由泵自己定,不看 ECl,在任何部位都是抑制,用起来可靠;费光,是为这份可靠付的价。后来有了灵敏的通道,才多了一条路,却也多了一件要先问清的事:这个部位的 ECl 在哪。
12.4 怎么判断一个抑制工具在这个部位是不是真的抑制?
同一个氯通道,放在三个部位,结果可以各不相同,所以判断要落到具体的部位上。第 3 章 3.5 的三步规矩在这里换一种写法:第一步,从这个部位的胞内氯算出 ECl。第二步,把 ECl 放在静息电位和放电阈值的数轴上,看落在哪一段。第三步,看电导大不大,大,膜电位就被拉得靠近 ECl。阈值这一章设成 −50 mV,是习题的设定,不是神经元的固定值。
一个胞内氯 5 mM 的部位
我先算 ECl ≈ −84.9 mV,在静息 −65 mV 的下面,所以往下拉,离阈值 −50 更远。V − ECl = +19.9 mV,g = 0.2 mS/cm² 时电流约 +4.0 µA/cm²,外向。结论是抑制,第三步可以不问。
一个胞内氯 25 mM 的部位
我先算 ECl = 26.73 × ln(25/120) ≈ −41.9 mV,在静息上面,往上推。再和阈值 −50 比,它在阈值上面,电导够大时,膜电位能被推过阈值。V − ECl = −23.1 mV,电流约 −4.6 µA/cm²,内向。结论是兴奋。最怕看到「氯通道」三个字,就写「抑制」。
差别在:ECl 落在静息电位下面,还是阈值上面,两头的结果相反。
自己推一遍:E_Cl 落在哪一段,结果为什么不一样
通道开着,电流是 g(V − ECl),这股电流把 V 往哪里推?
想好了再看
V 比 ECl 高,电流为正,外向,把 V 往下拉;V 比 ECl 低,电流为负,内向,把 V 往上推。两种情形下,V 都被推向 ECl,到了 ECl,电流为零就停下。
把 ECl 放在三个位置:静息电位的下面、静息与阈值之间、阈值的上面,各会怎样?
想好了再看
下面:V 被拉向更负的 ECl,超极化,离阈值更远,抑制。之间:V 被推向 ECl,可 ECl 低于阈值,推到它就停了,通道自己引不起放电。上面:V 被推向高于阈值的 ECl,电导够大时,会越过阈值,引起放电。
用胞内氯 5、15、25 mM 对一遍,阈值取 −50 mV。
想好了再看
5 mM,ECl ≈ −84.9 mV,在静息下面,抑制。15 mM,≈ −55.6 mV,在静息与阈值之间,往上推,过不了阈值。25 mM,≈ −41.9 mV,在阈值上面,兴奋。
电导的大小,对哪一段影响最大?
想好了再看
电导越大,V 越贴近 ECl,所以最依赖电导的是中间一段:电导很小,几乎没作用;电导很大,膜电位被钉在 ECl 附近,别的输入想把它推过阈值,得先对抗这股往回拉的电流,这叫分流。分流能不能压住放电,要看电导有多大,所以中间一段不能一句话说成抑制或兴奋。
| ECl 的位置 | 膜电位 | 对放电 | 例(胞内氯) |
|---|---|---|---|
| 低于静息电位 | 往下拉,超极化 | 抑制,可靠 | 5 mM,−84.9 mV |
| 静息电位与阈值之间 | 往上推,停在 ECl,够不到阈值 | 自己引不起放电;能否分流压住放电,看电导 | 15 mM,−55.6 mV |
| 高于阈值 | 往上推,电导够大时越过阈值 | 引起放电 | 25 mM,−41.9 mV |
静息 −65 mV,阈值 −50 mV,胞外氯 120 mM,37 °C。三个部位的胞内氯分别是 8 mM、12 mM、20 mM,各打开同样的氯通道。每个部位的膜电位往哪边走,对放电是抑制、引不起,还是兴奋?
变式:阈值改成 −45 mV,20 mM 的部位,结论会变吗?
三种工具放在一起看,各自的代价是:
| 工具 | 类型 | 光 | 代价 |
|---|---|---|---|
| NpHR(2007) | Cl⁻ 内向泵 | 约 560 nm,约 10 mW/mm²,电流 88.7 ± 32.8 pA | 要强光;持续照光,超极化以 16.8 ± 10.4 s 衰减 |
| Arch(2010) | H⁺ 外向泵 | 清醒小鼠皮层几乎完全抑制 | 是泵,一个光子至多搬一个离子,按第 6 章的账,吸的光子也比通道多得多 |
| GtACR(2015) | 光门控氯通道 | 光敏度比泵高约 10² 到 10⁴ 倍 | 方向看 ECl,末梢可能去极化;GtACR1 光停后关得慢,在培养的 HEK293 细胞里测得分两段,约 54 ms 和 280 ms |
假想一种光门控的钾通道,只放 K⁺。按第 2 章的浓度,胞外 K⁺ 5 mM,胞内 140 mM,静息 −65 mV。这个通道会不会碰到氯通道那种「在某些部位从抑制变成往上推」的麻烦?要碰到,胞内钾得降到多少?
变式:同样的钾通道,胞内钾降到 100 mM,EK 是多少?它还是抑制吗?
对你而言未知胞体和末梢的胞内氯,到底各差多少?
12.2 的习题用假设的 5 mM 和 30 mM 演示了胞体和末梢的差别。真实神经元的胞体和末梢,胞内氯各是多少,本站没有可靠的数。答案在测量胞内氯的文献里,不在本站的材料里。
先做这一步:用你台阶 12 里的 cl_channel_current,把胞内氯从 5 mM 起每次加 1 mM,扫到 40 mM,记下电流刚好变号的浓度(ECl 等于 −65 mV,约 10.5 mM),再记下 ECl 刚好越过 −50 mV 的浓度(约 18.5 mM);然后去读 Messier 等 2018 的摘要(eLife 7:e38506),看他们怎样描述胞体和末梢的差别。
给虚拟实验台加两个抑制模块:通道看 E_Cl,泵只看光
为什么现在才加它:台阶 8 到 11 里,光开关只会让细胞兴奋,想让细胞安静,只能撤光。真实的抑制工具有两种做法,通道的方向跟着氯浓度走,泵的方向固定,所以要写两个模块,各管各的。
难点:错几乎都出在符号和单位上。其一,E_cl 的括号里是内除以外,不是外除以内,照抄钠的写法会算出正 85 mV。其二,T 要用开尔文 310.15,不是 37。其三,ln 是自然对数,不是以 10 为底的。其四,电流的约定是正为外向,Cl⁻ 进细胞是外向电流,要把它减进台阶 3 的括号里,写成加号会让抑制变成兴奋。泵这一块反过来最容易想多:它不需要 V,也不需要 cl_in,别给它们留参数。
自己验:cl_in = 5 mM、cl_out = 120 mM,E_cl 应该约 −84.9 mV;V = −65 mV、g = 0.2 mS/cm² 时,cl_channel_current 应该是正的,V − E 约 +19.9 mV,电流约 +4.0 µA/cm²,外向。cl_in 改成 15 mM,E_cl 应该约 −55.6 mV,V − E 约 −9.4 mV,电流约 −1.9 µA/cm²,内向,方向和前一个相反。泵:cl_pump_current(1, 3) 在 V = −65 或 −40、cl_in = 5 或 15 下,都应该得到同一个数 3,永远是外向。四个都对上,这一级就成了。
读的时候要小心:三个工具的数字不在同一把尺子上,E_Cl 也只取了几个点
表 12-2 的数字来自不同的实验:NpHR 的 88.7 pA 是 Han 与 Boyden 2007 在培养神经元上测的,Arch 的「几乎完全抑制」来自 Chow 2010 的清醒小鼠,GtACR 的光敏度比值来自 Kim 2018 引言对更早论文的转引,GtACR1 的 54 ms 和 280 ms 是 Kim 2018 在 HEK293 细胞里自己测的,各栏不能直接拿来排名。Zhang 2007、Chow 2010、Govorunova 2015 和 Messier 2018,本站都只读到摘要,用 ECl 去读 Messier 等人的结果,是本章的解读,机制的细节没有核对。第 6 章的光子账按 ChR2 算,GtACR 那一栏只有文献的比值,没有同样的账。本章的 ECl 取的是胞外 120 mM 加几个胞内浓度,来自典型值,细胞之间会有出入;习题里的阈值 −50 mV 和 g = 0.2 mS/cm² 都是设定,不是测量值。实验室页面里的神经元是 6.3 °C 的枪乌贼模型,ECl 却按 37 °C 和哺乳动物的氯浓度来算,氯泵画成一股不会饱和的恒定电流,氯通道的电流也不改变胞内氯,所以页面里的 −57 mV 只是这个拼起来的模型的分界,不对应任何真实神经元。
留给你的问题
你想让离光纤 1 mm 深的一群神经元闭嘴,手里有 NpHR 和 GtACR 两种工具,你会选哪一种?每一种,你得先查清或者先排除哪件事?
不看材料,写下这一章的三堵墙
第一堵:不开灯不等于闭嘴,神经元自己在放电,没有光时看到的是平时的样子,要让它安静,得有工具在光下主动压住它。第二堵:氯通道不一定抑制,Cl⁻ 往哪走看 ECl,它由胞内氯定,5 mM 时约 −85 mV 往下拉,15 mM 时约 −56 mV 往上推,不同部位同一个通道可以抑制,也可以兴奋。第三堵:泵不看 ECl,方向固定外向,可它一个光子只搬一个离子,在同一个细胞、同样的表达量下,要吸的光子比通道多出两到四个数量级,NpHR 持续照光时效果还会衰减。
第13章 改颜色、改快慢:工具箱
每秒闪一百次,上一次的门还有三分之一没关
开篇故事第 13 集 · 二十五毫秒后还开着的门一束蓝光的十八天
拍卖槌敲在木底座上的闷响还没有散,衣藻本藻面前那条蓝色的预算条已经从满格掉到了一半。
系统提示试拍品 Chrimson 已由衣藻本藻拍下,需求单要求在 1.5 mm 深处以每秒 40 次的节奏只做兴奋,判定结果是它的门关得太慢,没有通过。
系统提示按拍卖规则,试拍失败的人,在正式拍卖里的预算减半。
半个小时之前,光台大厅里摆好了一圈拍卖用的木桌,岑老师把需求单贴上大屏,试拍的拍品有三件,ChR2、Chronos 和 Chrimson,每个人只许拍一件。蓝光过敏第一个举牌:“深度不够就把光开大十倍,拍最便宜的 ChR2 就行。”许一舟把一张算好的纸条推过去,光纤出口是 380 mW/mm² 的蓝光,1 mW/mm² 只走得到 1.40 mm,目标在 1.5 mm,已经在它外面,开大光强也换不来多少。
衣藻本藻抱着一摞打印出来的摘要,翻到 Klapoetke 那一页,指着红移两个字说:“ChR2 的吸收峰在 470 nm,红光它吸得很少,光走得再深也推不动。红移的开关是 Chrimson,吸收峰在 590 nm 左右,要去深处,只能拍它。”木桌上方的拍卖灯被调成了暗黄色,他把牌子举到了最高,全场没有第二个人跟价。
岑老师没有看牌子,她走到大屏前写了一行算式:“光一灭,门是慢慢关的,每过一个 τ_off,还开着的就乘上 0.368。Chrimson 的 τ_off 是 24.6 ms,每秒闪 40 次,两次闪光隔 25 ms。”
许一舟拿笔一算,e 的负 25/24.6 次方,结果是 0.36,下一次闪光到来的时候,它还有三分之一多没有关上,和野生型 ChR2 在每秒 100 次时的 0.35 几乎一样。衣藻本藻盯着自己那页纸,低声说:“摘要里只写了红移,一个字也没提它关门要多久。”岑老师说:“摘要只回答它自己问的那个问题,红移换来光走得更深,价钱写在 τ_off 那一格,你看了深度,没有看节奏。”
许一舟抬起头问:“红移的开关里,有没有关得快一点的?”岑老师指了指还盖着红布的第四件拍品:“ChrimsonR,τ_off 是 12.2 ms,差不多是它的一半。”许一舟又算了一遍,剩下约 0.13,笔尖在纸上顿了一下。
系统提示正式拍卖需求单排序,第一名是 ChrimsonR,间隔 25 ms 之后约剩 0.13,在本站自定的粗筛线 0.15 以内。
系统提示表里没有 ChrimsonR 在 1.5 mm 深处够不够敏感的数据,这一项记作待办,没有核实之前不算通过。
红布掀开,ChrimsonR 开拍,价格很快被许一舟和蓝光过敏抬到了衣藻本藻那半条预算够不着的地方,他握着牌子,只能看着木槌再落下去一次。
深度不够就把光开大十倍,岑老师为什么说划不来
1L蓝光过敏我还是想不通,光开大十倍深度就够了,为什么非得多花预算去拍红移的开关,白白浪费机时。
2L电极老炮楼上先算账,出口光强加到十倍,1 mW/mm² 走到的深度只多出 2.72 倍,光纤口还越来越烫,我拆过的功放管就是这么烧掉的。
3L衣藻本藻我的毛病是只相信摘要里红移那一句,Chrimson 关门要多久,表里写得明明白白,我没有往下翻。
4L许一舟我把三个条件做成了一张检查单,下次先看深度,再看方向和节奏,这一次只看一个条件挑出来的第一名,都在另一个条件上落了马。
5L岑(带教认证)2L 和 4L 说得对,3L 的预算照扣,ChrimsonR 在 1.5 mm 够不够敏感,表里没有数,这件事要去查,不能假装它过了。
拍卖散场的时候,岑老师把明天的对擂分组表钉在了门板上,两组各交一份设计,输的一组要交出答辩首发的位置,表格最下面只有一行小字,是电极老炮的口头禅:“对照组呢?”
系统结算 · 本章考点
- 关门是指数衰减:间隔 T 之后还开着的比例 f = e^(−T/τ_off),每过一个 τ_off 乘上约 0.368;野生型 ChR2 的 τ_off 约 10 ms,100 Hz 时 f ≈ 0.35
- 红移换来光走得更深,付出的是关门变慢:Chrimson 吸收峰约 590 nm,τ_off 为 24.6 ms;点突变版本 ChrimsonR 的 τ_off 为 12.2 ms
- 40 Hz 的间隔是 25 ms:Chrimson 还剩约 0.36,关不及;ChrimsonR 约 0.13,排第一
- 出口光强 380 mW/mm²、473 nm 时,1 mW/mm² 走到 1.40 mm;出口光强加到 10 倍,深度只多出 2.72 倍,光越强越热
- 只按一个条件挑,第一名会在另一个条件上落马:先看深度,再用 e^(−T/τ_off) 排节奏;0.15 的粗筛线是本站自定的,不是实测合格线
- 表里没有 ChrimsonR 在 1.5 mm 深处是否够敏感的数,记作待办,不能当成通过
野生型 ChR2 驱动神经元,光闪一下放一个电,听起来像开关灯。真去试,闪得慢的时候一切正常,闪到每秒几十次,细胞开始漏掉脉冲;想让它一直开着,光就得一直亮,细胞累了,光纤也烫了;想照到更深的地方,蓝光在组织里走不了几毫米。一个开关在三件事上各撞一堵墙,每堵墙逼出一个新的变体。这一章把它们摆上一张选型表,学会按需求去挑。
学完这一章你应该能做到
- 用 e−T/τ_off 估出一次闪光之后还开着的通道占多少,说出关门时间怎样限制闪光的频率
- 说出「一直照着」撞上的两堵墙,以及双稳态变体怎样绕开它们、又付出什么
- 解释想照得深为什么要换红移的开关,红移的代价写在表里哪一格
- 说清两群细胞各用一种颜色分开控制,要求什么条件,什么时候会漏
- 拿到一个「深度、频率、开或关」的需求,查选型表排除不合格的,排出候选的先后
这一章给虚拟实验台加一张光开关参数表和一个选型函数:输入想要的频率、深度和方向,输出候选名单。前面各级台阶里台上只有一种开关,不存在挑选。现在有了好几种,每一种各有所长,谁适合什么需求,得有一段程序替你判断。
13.1 想让神经元每秒放电 100 次,把光闪快一点不就行了吗?
第 8 章里,ChR2 关闭的时间常数 τ_off 约 10 ms(9.5 ± 2.8 ms)。现在用蓝光驱动一个神经元,每秒闪 100 次,也就是每 10 ms 一次。上一次闪光结束后,下一次闪光到来之前,通道会怎样?
答完再看
第三个对。通道关闭是指数衰减(第 0 章 0.6),每过一个 τ_off,还开着的比例乘上 e−1,约 0.368。间隔 10 ms、τ_off 9.5 ms,还剩约 0.35。第一个错在把「光灭」当成「门关」,门要花时间。第二个错在以为残留的开放无害:通道没关完,膜电压回不到起点,下一次闪光是在没落回起点的状态上再推一把,细胞的反应不再是上一次的重复,闪光和放电开始对不上号。
这堵墙我们在第 8、9 章已经碰过一次:关门要约 10 ms,Boyden 等 2005 年的实验里,闪得越快,放电越跟不上。把光闪快,看上去只是拧一个旋钮,旋钮后面却连着一扇关得不够快的门。
算一下这扇门到底拖了多少。光一灭,通道按指数衰减关上(第 0 章 0.6):每过一个 τoff,还开着的比例就再乘一次 0.368。间隔 T 里装得下 T ÷ τoff 个这样的时间段,就乘那么多次,合起来,间隔之后还开着的比例是:
| 符号 | 是什么 | 直觉 |
|---|---|---|
| f | 两次闪光之间,还开着的通道占比,0 到 1 之间 | 越小,下一次闪光的起点越干净 |
| T | 两次闪光的间隔,毫秒;T = 1000 ÷ 频率 | 100 Hz 是 10 ms,40 Hz 是 25 ms |
| τoff | 关闭时间常数,毫秒 | 每过这么久,开着的比例乘上 0.368 |
| e | 自然常数,约 2.718 | 第 0 章里指数衰减的底 |
野生型 ChR2(τ_off 9.5 ms)
100 Hz,T = 10 ms,f = e−10/9.5 ≈ 0.35。三分之一的通道还开着,下一次闪光叠在没落回起点的电压上。
ChETA(ChR2 的一个突变体,τ_off 约 4.4 ms)
同样 T = 10 ms,f = e−10/4.4 ≈ 0.10。只剩十分之一,每次闪光的起点干净得多。另一种通道视紫红质 Chronos(3.1 ms,室温)算出来约 0.04。两个名字下面再细说。
差别在:间隔同样是 10 ms,门关得越快,上一次留下的越少。以上是本站按式 13-1 算的,不是实验结果。
真实的细胞比这个算式挑剔。Gunaydin 等 2010 年的摘要列了野生型 ChR2 的三个毛病。表达得多的细胞里,一次闪光会引出多余的放电,比如连着两下的双峰。频率一高,许多细胞就跟不上持续的脉冲序列,和第 9 章里 Boyden 等 2005 年看到的趋势一致。快速的闪光序列还会把膜电压一点点垫高,停在一个抬高了的平台上。他们设计的变体叫 ChETA,摘要说这三条它都压了下去,持续的脉冲序列能跟到高得多的频率。
ChETA(ChR2 的 E123T 突变体):突变就是改基因里的一个位置,让蛋白质里对应的一个氨基酸换成另一个。ChETA 把 ChR2 第 123 号位置的谷氨酸(缩写 E)换成苏氨酸(缩写 T),这个位置在第 7 章的结构里标过。关闭时间常数约 4.4 ms(Mager 等 2018 引言转引 Gunaydin 等 2010)。
Chronos:它是 Klapoetke 等 2014 年从许多种藻的基因里筛出来的另一个通道视紫红质,没有经过人工突变。关闭时间常数 3.1 ms(室温);摘要说它的动力学比以前的通道视紫红质快,实际效果上对光却更敏感。
Chronos 的 τ_off 取 3.1 ms。用 100 Hz 的光驱动,两次闪光之间它还剩多少比例的通道开着?比野生型 ChR2 的约 0.35 多还是少?
变式:把闪光频率降到 40 Hz,野生型 ChR2 两次闪光之间还剩多少?
按式 13-1,野生型 ChR2 在 30 Hz(间隔约 33 ms)下,两次闪光之间只剩约 0.03 的通道还开着,门几乎关干净了。可第 9 章里 Boyden 等 2005 年的细胞,频率从 5 Hz 升到 30 Hz,放电概率仍然一路降低。这对「还剩多少比例」这把尺子说明了什么?
变式:两个变体的 f 相同,一个电流大、一个电流小,还能说它们同样跟得上吗?
答辩:如果我是审稿人
ChETA 关得快、能跟上高得多的频率,为什么不让所有实验都换成它?
参考防守(先自己组织语言再看)
关得快有没有代价,要逐个查。材料里能看到的线索是,Mager 等 2018 年报告的 Chrimson 一族里,关得更快的版本据该文需要更强的光才能打开。ChETA 自己的账,本站手上没有数,要去读 Gunaydin 等 2010 的正文。需要追高频的实验值得为快付代价,用不着追高频的实验未必值得,所以选型从需求出发,排名最前的变体只是起点之一。
13.2 想让神经元兴奋很久,把蓝光一直开着不就行了吗?
想让一群神经元持续兴奋几分钟,用野生型 ChR2,最直接的办法是把蓝光一直开着。你觉得它们的兴奋程度会怎样变化?
答完再看
第三个对。Boyden 等 2005 年的细胞里,光电流的峰值平均约 496 pA,稳态约 193 pA,两个均值相除,稳态只有峰值的约 0.39(这是本站的算术,两个数在不同细胞之间的离散都很大,只当数量级用)。回落是第 8 章那一态在起作用,一部分通道进了「累」,在暗中要花约 5 s 才恢复。第一个错在没有算这笔「累」,第二个把方向弄反了:一直照,可用的通道反而变少。发热是第 11 章的事,光强越大、照得越久,热越多。
朴素的办法我们认真走了一遍:稳态电流还在,通道没有全关,所以它能用,只是电流落到了峰值的不到一半,而且光越亮越久,热越多。累和烫两笔账加在一起,「一直照着」成了一个越用越吃亏的办法。
换个想法:不靠光一直亮,让通道自己别急着关。通道的开放态要是能自己撑很久,光只需要把它推开一次,灯就可以灭。第 7 章里的 DC 门,是 C128 与 D156 两个位置之间靠一个水分子相连的关口,开和关都要经过它。黑格曼与纳格尔 2013 年的回顾写道,这两个位置换掉任何一个,开放态的寿命就大幅变长。Berndt 等 2009 年改的是 C128,摘要说,一次短短的光脉冲就能把膜电位推上一级稳定的台阶,用另一种颜色的光又能把台阶撤掉,起止的时刻仍保持毫秒级的精度,而且因为开放态够稳,需要的光强比野生型低几个数量级。Yizhar 等 2011 年把 C128 和 D156 两处一起改掉,得到的这一个叫 SSFO。
野生型 ChR2,一直照着
光亮着才开着。电流先冲高再回落,光一直亮,热也一直积着。想结束就关灯,通道按约 10 ms 的时间常数关上。
SSFO,一闪就开
蓝光闪一下,通道开着,开放态以分钟计地持续,光可以关掉。想结束,打一束约 590 nm 的黄光。
差别在:一个的「开」靠光维持,一个的「开」靠通道自己维持。
双稳态变体(bi-stable opsin, step-function opsin):开和关两种状态都能自己停住,用一种颜色的光推到开,另一种颜色的光推回关。SSFO 是其中一个,在 C128 与 D156 两处都动了手:C128 的半胱氨酸(C)换成丝氨酸(S),D156 的天冬氨酸(D)换成丙氨酸(A),写作 C128S/D156A。开放态的持续时间,本站写到「以分钟计」。
它的代价可以从机制推出来:通道自己能开很久,也就没法跟着光一下一下地开关。SSFO 给一级稳定的台阶,给不了有节奏的脉冲。想让神经元每 25 ms 放一个电,它帮不上忙,一闪之后它就以分钟计地开着,没有节奏可言。这样一来,一个新需求落进了表里的另一格:要台阶还是要节拍,两种需求要两种开关。
想让一群神经元从第 10 秒起一直处在兴奋状态,到第 30 秒恢复。用野生型 ChR2 和用 SSFO,光纤那头各要怎样给光?各自会撞上什么?
变式:如果这 20 秒里还要求神经元的放电和 20 Hz 的光脉冲一一对应,两种办法还都行吗?
答辩:如果我是审稿人
材料里 SSFO 的开放态只写了「以分钟计」,为什么不给一个具体的数?
参考防守(先自己组织语言再看)
本站手上给出具体时间的只有一个二手来源,没有在原始论文里核对过,所以只写到数量级。选型时用到的只是「远长于一次实验里的光闪」这一层,数量级够用。要做的实验若依赖几分钟还是几十分钟,就要去读 Yizhar 等 2011 年的原文,那是下一步的事。
13.3 想照得更深,光纤里换成红光,ChR2 照样用不就行了吗?
第 11 章的结论是蓝光在脑组织里走不远,波长越长散射越少。一个朴素的办法是:想照到更深的地方,光纤里换成红光,ChR2 照样用。你觉得会怎样?
答完再看
第三个对。光能不能推动一个通道,要看通道吸不吸收它,走得深只是到达的前提。把「吸收了多少」对着光的颜色画成一条线,就是吸收曲线,最高的那一点是吸收峰,ChR2 的峰在 470 nm。Boyden 等 2005 年,光换成 490 到 510 nm,电流就比 450 到 490 nm 的光小了 42%(± 20%),离峰越远,曲线越低。第一个只算了到达,没算吸收。第二个把能量低当成了好处:590 nm 的光子能量约 3.37×10⁻¹⁹ J,比 470 nm 的 4.23×10⁻¹⁹ J 少了约五分之一,吸收看的是和开关的吸收峰合不合,能量低不会让它更容易被吸收。
红光走得更深,这句话对了一半,另一半卡在 ChR2 自己身上。要改的是开关:把吸收峰整个往红端挪。这就是「红移」,意思是吸收峰向红的一端移动。590 nm 在眼睛里偏橙黄,比 470 nm 的蓝光靠红得多,本章把吸收峰在这一带的开关叫红移的开关。Chrimson 是 Klapoetke 等 2014 年报告的一个红移的通道视紫红质,吸收峰约 590 nm,按 Mager 等 2018 年的表 1,它的 τ_off 是 24.6 ms;它的点突变版本 ChrimsonR,τ_off 是 12.2 ms。这条路在 Boyden 2011 年的回顾里已经点明过:能被红光或红外光驱动的开关值得要,因为这样的光能穿进脑组织更深,对科学研究,也许对临床,都更有用。
ChR2(野生型)
吸收峰 470 nm,τ_off 9.5 ms。蓝光在组织里散射得更厉害,走得浅。
Chrimson 与 ChrimsonR
Chrimson 的吸收峰约 590 nm。τ_off 分别是 24.6 ms 和 12.2 ms,都比 ChR2 的 9.5 ms 慢,ChrimsonR 把慢的程度缩了一半。
差别在:红移换来光能走得更深,付出的是关门变慢,写在选型表的 τ_off 那一格。
红移能换来多深?第 11 章给过两个波长的散射系数:纹状体里 473 nm 时 S = 12.0 mm−1,561 nm(黄绿光,比 473 nm 靠红)时 S = 9.0 mm−1(Tecuapetla 等 2014)。只看第 11 章公式里把散射单拎出来的那一项 T = 1/(S·z + 1),穿过 0.5 mm 之后,473 nm 剩 1/(12.0×0.5 + 1) ≈ 0.14,561 nm 剩 1/(9.0×0.5 + 1) ≈ 0.18,约多出 1.3 倍。
红移的好处是实在的,却不大。561 nm 的散射系数比 473 nm 的小了四分之一,按这一项,要降到同样的剩余比例,深度只多出约 1.3 倍。590 nm 处本站没有可用的实测 S,不往外推。红移换来的是还有光可用的那一小段深度,通往脑深处的大门并没有因此敞开。
用 T = 1/(S·z + 1),在深度 z = 1 mm 处,473 nm(S = 12.0 mm−1)和 561 nm(S = 9.0 mm−1)的散射项各剩多少?561 nm 是 473 nm 的几倍?
变式:深度加到 2 mm,这个倍数变大还是变小?深度无限大时,它趋向多少?
答辩:如果我是审稿人
Chrimson 关得比 ChR2 慢那么多,凭什么说它适合深处的实验?
参考防守(先自己组织语言再看)
没有说它更好,说的是它在「要红光」这一格上是表里能选的。到别的格子,比如追 100 Hz,它排在后面。ChrimsonR 把关门时间缩短到 12.2 ms,是对这笔代价的一次还价。所以问谁更好没有意义,要先问需求落在哪一格。
13.4 两群细胞各装一个不同颜色的开关,蓝光照一群、黄光照另一群,就能分开控制了吗?
A 群细胞装的开关吸收峰在 470 nm,B 群细胞装的开关吸收峰在 590 nm 附近。现在只亮一束蓝光(470 nm)。你觉得会怎样?
答完再看
第二个对。ChR2 自己就给过证据:Boyden 等 2005 年把光从 450 到 490 nm 换成 490 到 510 nm,电流小了 42%(± 20%),只是小了,没有归零,说明偏离峰值二三十 nm 还吸得到不少。第一个把吸收曲线当成了一根竖线。第三个忘了第 1 章:光对谁都一视同仁,可细胞有没有反应,要看它带着哪一种开关,吸收了多少。
一个细胞对一束光吸收了多少,取决于两样东西的乘积:吸收曲线在这个颜色处有多高,这束光有多强。曲线哪怕只剩一条矮矮的尾巴,光开得足够强,乘出来的吸收也不能忽略。两个开关的曲线重叠的地方,一束光就会同时碰到两群细胞。
图里两束光各碰到了对方那条曲线的一截尾巴,一个高一些,一个矮一些。哪一边漏得多,没有一条通用的规律,每一对开关的实际曲线都要看实测。
两路光一样强
两路都开到很亮,曲线尾巴乘上这么大的光强,漏到另一群细胞上的量就不能忽略;深处还要加大光强(第 11 章),漏得更多。
漏得多的那一路调弱,配给更敏感的开关
更敏感的开关只要很弱的光就够,这一路调弱,漏到另一种开关上的量跟着变小。
差别在:漏的量等于曲线高度乘光强,要调低光强,就得让接这一路的开关敏感到用弱光就够。
博伊登 2011 年的回顾里有一个真实的例子。他们实验室有一对抑制神经元的工具,一个吸蓝光,一个吸黄到红的光,打算用蓝光和红光分别压住两群神经元。两者的光谱有重叠,吸蓝光的那个会被红光轻轻带动,吸黄红光的盐视紫红质会被蓝光轻轻带动,漏是两个方向都有的,回顾把这种串扰列为现有成对工具的问题。Klapoetke 等 2014 年的摘要报告了另一对:Chrimson 红移,Chronos 动力学更快、实际效果上对光更敏感,摘要说两者合用,在小鼠脑片里能分别激活两群神经元,没有检测到串扰。更敏感的开关用较弱的光就能驱动,漏出去的量跟着小,这和上面的办法是同一个道理。
有人设计:A 群用峰在 470 nm 的 ChR2,B 群用峰在 590 nm 附近的 Chrimson,蓝光和黄光开成同样的强度,认为两群细胞互不干扰。请构造一个具体情形,让这个设计在不该有反应的细胞上出现反应,再说怎样减轻。
变式:把两群细胞的位置交换,B 群放在浅处、A 群放在深处,这个漏的问题会变好还是变坏?
答辩:如果我是审稿人
Klapoetke 等 2014 年的摘要说没有检测到串扰,是不是说明串扰只是一个理论上的担心?
参考防守(先自己组织语言再看)
摘要说的是在小鼠脑片里、他们选的这一对开关上没有检测到。没有检测到,和没有,隔着检测的灵敏度,摘要里没有给这个灵敏度。换一对开关,或者为了照深处把光加大,尾巴乘出来的量就会变大。博伊登 2011 年的回顾也把串扰列为现有成对工具的一个问题。所以串扰是真实存在的麻烦,选对开关、调低光强可以把它压下去。
13.5 要在 1.5 mm 深处用 40 Hz 驱动一群细胞,先看什么,排除什么?
需求:1.5 mm 深处的一群细胞,用 40 Hz 的节奏兴奋它们。深度、频率、方向(要兴奋还是要抑制)这三个条件各自会排除掉一些开关,你觉得先看哪一个最合适?
答完再看
先看深度。1.5 mm 比 380 mW/mm² 的出口光强走到 1 mW/mm² 的深度(1.40 mm)还深,不红移的开关在这里光强已经落到 1 mW/mm² 以下,深度这一条先把它们压到名单后面。频率的筛选靠式 13-1,可以后算。第一个顺序没有错得离谱,只是多算了一轮不红移的开关;第三个错在三个条件的硬度不同:有的靠别处补不回来,有的只是排先后。
| 名称 | 方向 | 吸收峰 | τ_off | 一句话 |
|---|---|---|---|---|
| ChR2(野生型) | 开 | 470 nm | 9.5 ms | 第 8、9 章的主角 |
| ChETA | 开 | — | 约 4.4 ms | ChR2 的点突变,关得快 |
| Chronos | 开 | — | 3.1 ms(室温) | 关得快,对光更敏感 |
| Chrimson | 开 | 约 590 nm | 24.6 ms | 红移,光走得更深,关得慢 |
| ChrimsonR | 开 | — | 12.2 ms | Chrimson 的点突变,τ_off 约为它的一半 |
| SSFO | 蓝光开,约 590 nm 黄光关 | — | — | 开放态以分钟计 |
| NpHR、Arch、GtACR | 关 | — | — | 泵与通道,见第 12 章 |
只按频率挑
40 Hz 的间隔 25 ms,Chronos 剩 e−25/3.1 ≈ 0.0003,ChETA 约 0.003,名单最前面是它们。可它们都不红移,到 1.5 mm 光已经不够。
只按深度挑
要红光,名单最前面是 Chrimson。可 Chrimson 的 τ_off 24.6 ms,间隔 25 ms 之后还剩 e−25/24.6 ≈ 0.36,关不及。
差别在:每个单一条件挑出来的第一名,都在另一个条件上落马。
我先看到的是深度,三个条件里只有它靠别处补不回来。第 11 章的公式,在出口光强 380 mW/mm²、473 nm 时,1 mW/mm² 走到 1.40 mm,1.5 mm 已经在它外面,这个模型在深处还偏乐观。想靠加光补也补不多:出口光强加到 10 倍,1 mW/mm² 的深度只多出 2.72 倍,而且光越强越热。不红移的这几个(ChR2、ChETA、Chronos)到这里光强已经落到 1 mW/mm² 以下,先降到名单后面。红移只多出约 1.3 倍的深度(13.3 里算过),它们排前面,是「更有机会」,还谈不上「一定够亮」。
再看方向和节奏,各排除一类。要的是兴奋,抑制类先出局,它们归第 12 章管。40 Hz 是每 25 ms 一次,SSFO 一闪之后以分钟计地开着,没有节拍可言,也出局。红移的只剩 Chrimson 和 ChrimsonR,用式 13-1 各算一遍:Chrimson 剩 0.36,和野生型 ChR2 在 100 Hz 时的 0.35 差不多,那一格我们在 13.1 里已经见过结果;ChrimsonR 剩 e−25/12.2 ≈ 0.13,排第一。
自己推一遍:从需求到候选名单
需求:0.3 mm 深处的一群神经元,要在一段时间里一直处在兴奋状态,中间不希望光一直亮着,结束时要能让它们停下。表里哪一个性质能省掉一直亮着的光?
想好了再看
开放态能自己维持,才不需要光一直亮。表里只有 SSFO 的「一句话」写着开放态以分钟计。
结束时怎么让它们停下?
想好了再看
SSFO 蓝光开、约 590 nm 的黄光关,所以结束时给一束黄光。野生型关灯就关,可一直亮着要付累和烫的代价。
这份需求里没有写频率。如果加上「放电要和 20 Hz 的光脉冲一一对应」,SSFO 还在名单里吗?
想好了再看
不在了。一闪之后它以分钟计地开着,没有节拍。这时要回到 τ_off 一列,用式 13-1 排先后,在 0.3 mm 这样浅的地方,不红移的几个都可以考虑。
只按一个条件挑,前面的并排已经演示过。检查时把候选放回三个条件逐个再问一遍,任何一格写着「—」的,说明本站没有核实,不能当成通过。表里没有一格说 ChrimsonR 在 1.5 mm 的光强下够不够敏感,所以名单的最后一行是一件待办:去查它的光敏度。
需求改成 0.3 mm 深、20 Hz、只要兴奋。按表 13-1 和式 13-1,是不是一定得用 ChETA 或 Chronos?说出理由。
变式:深度改成 1.5 mm、频率仍是 20 Hz,答案会变吗?变到哪一格?
需求:0.4 mm 深,100 Hz,只要兴奋。用表 13-1 和式 13-1 写出候选排序,说出你依据的是哪几个数,并指出表里哪一格的「—」让你没法再往下排。
变式:同一份需求,深度改成 1.2 mm,名单会有什么变化?
光纤出口光强 380 mW/mm²,473 nm 的蓝光。不翻书,估计 1.5 mm 深处的光强落在 0.1、1、10、100 mW/mm² 哪个数量级附近?你依据的是什么?
变式:出口光强换成 100 mW/mm²,1 mW/mm² 走到的深度变深还是变浅?
对你而言未知有没有一种光开关,同时又快、又红、又对光极敏感?
选型表里每一行都在某一格上让了步:关得最快的两个不红移,红移的 Chrimson 关得慢,ChrimsonR 把它缩短了一半。Mager 等 2018 年报告的 Chrimson 一族里,关得更快的版本据该文需要更强的光才能打开;可同一篇摘要又说,这些快的突变体在皮层神经元里用较低的刺激强度就能驱动高频放电。这两句话量的可能不是同一把尺子:一把是通道本身要多亮的光才开到一半,一把是神经元放电的阈值。黑格曼与纳格尔 2013 年的回顾还写过,红移的吸收峰会受限,因为吸收红光的视紫红质会被热量自己激活,产生暗噪声。那是 2013 年的判断,这道坎之后有没有被绕过,本站的材料回答不了,所以这一格标成对你而言未知。
先做这一步:打开 Mager 等 2018 年(Nature Communications 9:1750)的表 1,把 Chrimson 一族各行的 τ_off 抄成一列,再到正文里找各自对应的光敏度,画一张「关得多快、需要多亮的光」的散点图,看点是不是排成一条斜线。
给实验台加一张光开关参数表和一个选型函数
为什么现在才加它:前面各级台阶里台上只有一种开关,没有「挑」这回事。从这一级起开关有了好几种,每一种只在某些需求下合适,把「频率、深度、方向」三个旋钮读进来,输出候选名单,是后面做对照实验(第 14 章)和接病人(第 15 章)都要用的一步。
难点:没有数的那一格怎么办。如果把空值当成 0,它会被当成关得最快而排第一;当成无穷大,它又会悄悄被排除,两种都在替没核实的数做决定。所以要单独放一栏「待核实」,既不进候选,也不进出局名单。第二处是排序:sort 的 key 是一对数,先比「要不要降级」,不降级的(False)排前面,再比 τ_off,小的排前面。第三处是 SSFO:它在有节奏的需求里出局,在「只要台阶」的需求里(频率填 0)应该留下,所以判断它要先看有没有节奏。第四处是两把尺 LEFT_MAX 和 DEEP_MM,它们是本站自己定的,写成常量放在最前面,别散落在代码各处,不然没人知道那是约定而不是文献值。
自己验:输入 40 Hz、深度 0.2 mm、方向开,应该得到候选 Chronos、ChETA、ChR2、ChrimsonR(按 τ_off 从小到大),出局名单里 SSFO 的理由是「开了不关」,Chrimson 的理由是「关不及」(一个周期后还剩 0.36)。输入 0 Hz、深度 1.5 mm、方向开,排在最前的两个应该是 ChrimsonR 和 Chrimson,不红移的排在它们后面,SSFO 留在名单最后。输入 40 Hz、深度 1.5 mm、方向开,第一名应该是 ChrimsonR。再往表里加一行 τ_off 为空的开关,输入 40 Hz,它应该出现在「待核实」里,既不在候选里,也不在出局里。四个都对上,这一级就成了。
读的时候要小心:选型表里的数不是在同一个条件下量的
表 13-1 里 ChR2、Chrimson、ChrimsonR 的 τ_off 取自 Mager 等 2018 年的表 1,那是培养的细胞系(NG108-15)里同一套电压和光照条件下的测量,各行只有几个到十来个细胞。ChETA 的 4.4 ms 是该文引言转引 Gunaydin 等 2010 的数,Chronos 的 3.1 ms 是 Roos 等 2026 年在室温下测的。四个来源的细胞、温度、光强各不相同,并排比较只能看量级,不能用来区分 4.4 ms 和 3.1 ms 谁更快。红移与否,只有 Chrimson 一族有材料明说,ChETA 和 Chronos 的吸收峰本站没有核实,代码里把它们当作不红移,是一个假设。式 13-1 的 0.15 和 1 mm 的深度线是本站自定的粗筛线,用来排先后,不是实测的合格线。
留给你的问题
有人想要一种工具:在脑深处,以 100 Hz 的节奏兴奋一群细胞,还要随时能停。你会先问他哪三个问题?每个问题各会排除表里的哪些开关?这份需求最后会撞在表里的哪一格上?
不看材料,写下这一章的三堵墙
第一堵:光闪得快,门关不及,间隔之后还剩 e−T/τ_off 没关,逼出关得快的 ChETA 和 Chronos。第二堵:一直照着会累、会烫,逼出开放态以分钟计的 SSFO,代价是只有台阶,没有节拍。第三堵:颜色。蓝光走不深,ChR2 对红光又吸得很少,逼出红移的 Chrimson 一族,代价是关得慢;两群细胞各用一种颜色分开控制,则卡在吸收曲线有宽度,会漏。
第14章 从「一起出现」到「是它导致」
光一照小鼠醒得更快,只设一组实验排除不了什么
开篇故事第 14 集 · 只对了一半的对照组一束蓝光的十八天
光台大屏上,设计 A 那一行的两个红色叉号亮起来的时候,长桌两边十几个人一下子安静了,只剩投影风扇嗡嗡地转。
系统提示设计 A 检查完毕,不能排除光本身,也不能排除表达本身,两样都没有排除,刺激方式一行永远只是提醒。
系统提示设计 B 检查完毕,已经排除表达本身,仍然不能排除光本身,判定 B 组胜出,A 组失去答辩首发。
半个小时之前,岑老师在白板上写下要检验的一句话,分泌素神经元的活动,足以让睡着的小鼠醒来。十几个人分成 A、B 两队,各自在光台上排一份虚拟实验的设计,只写分几组、各表达什么、照不照光,输的一队,失去答辩首发。
许一舟和衣藻本藻这一队交得很快,一组表达光开关、照光,另一组什么都不装、也不照光,拿来当基线。许一舟把表格投到屏幕上,说:“对照组就该是什么都不做的那一组,两组差多少,都能算到光开关头上。”B 队那边,电极老炮盯着同样的方案看了很久,用笔添了一组,装了光开关,但是不照光,他说:“我拆收音机的时候,新焊上去的元件先不通电,听听它自己会不会嗡嗡响。”蓝光过敏嫌麻烦,嘟囔着光开大一点不就行了,要那么多组干什么,被他一把按回了椅子上。
两份设计都亮着红叉,两队十几个人,没有一个人在设计里写过荧光蛋白。许一舟盯着自己那一行,问:“什么都不做的一组,为什么连一格都排除不了?”
岑老师走到白板前,写下一行字:对照组和实验组只能差一样东西。她转过身说:“你们那一组同时差了两样,开关装没装,光照没照,结果变了,没人说得清该算给哪一样。电极老炮那一组只差了光,它排除的是开关这个外来蛋白自己捣乱。”
电极老炮刚想抬手,岑老师接着说:“你只对了一半,光本身还混在里面。”她调出光台复刻的 Liu 等 2012 年的案例,有一组只表达黄色荧光蛋白,照同样的 473 nm、20 Hz、15 ms 的光,小鼠一动不动的冻结没有增加,它和实验组只差光开关这一样,看见光和发热都留在了里面。
岑老师伸手把 A 队的磁贴从白板最上面撕下来,啪地一声拍到了最下面一行,答辩首发的位置空了出来,B 队也没有人笑,因为他们那一行的红叉也亮着。
两组设计都亮了红叉,凭什么只有装了不照光的算半对
1L衣藻本藻我还是觉得冤,摘要里写着 1 Hz 的光没有效果,5 到 30 Hz 的光有效果,两种频率下光都在,这不就已经排除了光本身吗。
2L许一舟不能这样算,1 Hz 的光比 30 Hz 的光少得多,光和发热有没有副作用,这组数据回答不了,要有一组只表达荧光蛋白、照同样光的虚拟小鼠才行。
3L电极老炮我也只对了一半,装了开关不照光,只排除了这个外来蛋白自己捣乱,光会不会把它惊醒,我那份设计里一个字也没写。
4L蓝光过敏我早说光开大一点就行,可照这么看,光开得越大,看见光和发热的可能就越大,没有那一组对照,更分不清是谁的功劳。
5L岑(带教认证)B 组赢在少错了一半,并不表示它的设计过关,A 组的首发位置照规则让出来,两组都回去补上荧光蛋白那一组的对照。
夜里光台推送了一条明天讲座的通知,标题只有一句话:论文里的病人只有一个,他的对照组在哪里?
系统结算 · 本章考点
- 一起出现有三种可能:甲导致乙、乙导致甲、第三者同时推着两者;要分开它们,得有一只能自己去拨动细胞的手:光选位置和时刻,基因选细胞类型
- 打开它检验充分性,关掉它检验必要性;Adamantidis 等 2007 年做的是充分性,5 到 30 Hz 的光缩短醒来的潜伏期,1 Hz 没有,这只是旁证,替代不了对照组
- 表 14-1 的 2×2 对照:表达光开关但不照光,排除表达本身;只表达荧光蛋白、照同样的光,排除光本身;对照组和实验组只能差一样东西
- Liu 等 2012 年的光是 473 nm、20 Hz、15 ms;只读出黄色荧光蛋白的一组冻结没有增加,光本身由它排除
- 第三件要排除的是刺激方式:对照组管不了,足以不等于自然就是这样,20 Hz 是研究者选的节奏
- Gradinaru 等 2009 年的帕金森模型里,丘脑底核的疗效可以用直接刺激传入轴突来解释,不等于别的细胞都没用
夏天,冰淇淋摊的生意最好,水边溺水的人也最多,两样事在日历上总是一起涨、一起落。没有人会因此去封冰淇淋摊。神经科学在光遗传学出现之前,手上的证据常常就是这个样子:某一群神经元,在小鼠做某件事的时候特别活跃。这能不能说明,是它们让小鼠做了这件事?这一章讲光遗传学给神经科学添了什么,答案是一只能自己去拨动细胞的手,以及用好这只手要守的规矩。
学完这一章你应该能做到
- 说出「一起出现」为什么不能证明「导致」,并指出一个同时推着两者的第三者
- 区分充分性和必要性,说出各自要「打开」还是「关掉」去检验
- 对一个「表达外来蛋白再照光」的实验,列出必须排除的三件事,以及各靠哪一组对照排除
- 读懂 Liu 等 2012 年的几个对照组,每一组排除的是什么
- 说出强行同步驱动一群细胞的实验证明了什么,没有证明什么
这一章给虚拟实验台加一个实验设计检查器:输入你设的几组动物,它检查有没有「表达了但不照光」和「照光但没有光开关」两个对照,缺了就告诉你还有什么没排除。前面的台阶造出了会放电的神经元、光开关和光,造得出来不等于做得出结论,台上得先有一个替你挑毛病的角色。
14.1 它在那一刻特别活跃,是不是就说明是它让小鼠做了那件事?
假设研究者记录到,小鼠醒着的时候,下丘脑(脑深处的一个区域)里一群神经元发放得特别多,睡着时发放得很少。你觉得能不能由此说,是这群神经元的活动让小鼠醒来的?
答完再看
第二个对。Adamantidis 等 2007 年那篇摘要的开头,就把这个问题摆了出来:这群细胞的电活动,是足以驱动醒来,还是仅仅与醒来相关,当时并不知道。第一个把「一起出现」当成了「导致」。第三个以为记录得多就能分开,可三种解释都说得通这份记录,记录得再多,也排除不了第三者。
夏天冰淇淋卖得多,水边溺水的人也多,没有人会因此去封冰淇淋摊,因为大家知道背后有第三者:天热。天热让人多买冰淇淋,也让人多下水,两样事各是被天热推着的,和彼此无关。
神经科学里的记录和这份日历长得一模一样。记录到一群细胞在某种行为出现时发放得很多,只是看到甲和乙一起出现。背后可能是甲引起乙,可能是乙引起甲(小鼠醒了,各种感觉输入涌进来,这群细胞才忙起来),也可能另有第三者同时推着两者。三种解释都能解释这份记录。
只记录
看着甲和乙一起出现。三种解释都说得通,光靠记录分不开。
自己拨动
由研究者改变甲,其余一概不动,看乙跟不跟着变。三种解释对结果的预测不同,才分得开。
差别在:一个只是看,一个是伸手改变其中一样,再看另一样。
要分开三种解释,更多的记录帮不上忙,缺的是一只手。第 10 章讲过,光决定在哪里和什么时候,基因决定哪一种细胞。两样合起来就是这只手:它能只拨动一类细胞,拨在研究者选定的那一刻,别的细胞一概不动。
记录发现,小鼠一走进放着食物的笼子,大脑里某一群神经元就特别活跃。请写出三种解释,并各说一句:要让这种解释成立,还需要什么。
变式:研究者只在没有食物的笼子里,用光把这群细胞打开,小鼠开始四处找东西。三种解释里,哪一种得到了支持?
答辩:如果我是审稿人
如果这群细胞总是比小鼠的行为早几百毫秒活跃,先后顺序是不是就能证明是它导致的?
参考防守(先自己组织语言再看)
先后顺序能排除「行为引起它」这一种,排除不了第三者:第三者可以推着两者,只是对它们的延迟不同,让这一群细胞先动、行为后动。所以时间顺序是一条线索,算不上证明,证明要靠自己去拨。
14.2 要证明是它导致的,该去拨它,是打开,还是关掉?
要检验「下丘脑分泌素(又叫食欲素)神经元的活动足以让睡着的小鼠醒来」(下面简称分泌素神经元),手上有光开关。你觉得该怎样拨它?
答完再看
第三个对。第一个仍是只记录,回到了上一节的墙里。第二个也是正当的实验,可它检验的是另一个问题:没有这群细胞的活动,醒着还能不能维持,这是必要性,不是充分性。要问「足以不足以」,就得只加上它,看结果会不会出现。Adamantidis 等 2007 年走的就是第三条路。
拨开关有两个方向,各自回答一个问题。把它打开,看行为会不会出现,检验的是充分性:只有这群细胞的活动,足以引起这个行为吗?把它关掉,看行为还会不会出现,检验的是必要性:没有这群细胞的活动,这个行为还能发生吗?门铃是个现成的例子:按下按钮铃响了,说明按钮足以让铃响;剪断线再按,铃不响了,说明这条线是必要的。两件事互相不替代。
充分性:只打开它
用兴奋类光开关(第 13 章)。行为出现了,说明这群细胞的活动足以引起它。
必要性:只关掉它
用抑制类光开关(第 12 章)。行为不出现了,说明没有这群细胞的活动,行为就发生不了。
差别在:一个检验「加上它会不会有」,一个检验「拿掉它会不会没」。
Adamantidis 等 2007 年做的是充分性。他们把 ChR2 交给下丘脑里的分泌素神经元,用光纤把光送进自由活动的小鼠的外侧下丘脑,摘要写道,直接、有选择地用光刺激这群细胞,增加了小鼠从慢波睡眠或快速眼动睡眠(睡眠的两个阶段)转入清醒的概率。5 到 30 Hz 的光脉冲缩短了醒来的潜伏期(从开始刺激到醒来隔了多久),1 Hz 的光没有。两种频率下都有光,结果却不同,这排除了「只要有光就有效」这一种最简单的解释。
自己推一遍:从「一起出现」到「是它导致」
记录只看到甲和乙一起出现。你会去改变哪一个,别的该怎么办?
想好了再看
去改变甲,别的一概不动,看乙跟不跟着变。这样第三者没有被改变,它对乙的影响保持原样,乙要是变了,变化就只能来自甲。
甲被改变之后乙变了。这就够了吗?还可能有别的东西同时被改变了吗?
想好了再看
光遗传学里,改变甲的同时还有别的东西在变:动物看见了光、光照发热、一个外来蛋白被装进了细胞。乙的变化可能来自它们,和甲无关。
怎样把这几样别的东西分离出去?
想好了再看
设对照组:除了「甲被光开关改变」这一件事,别的都和实验组一样。对照组里乙要是没变,变化就是那一件事带来的。下一节把对照组一个个设出来。
下面两句话各在检验充分性还是必要性?各该用兴奋类还是抑制类光开关?甲:关掉分泌素神经元,睡着的小鼠醒来所需的时间变长了吗?乙:只打开分泌素神经元,睡着的小鼠醒来所需的时间变短了吗?
变式:如果甲做成了,乙没有做,能下什么结论,不能下什么结论?
答辩:如果我是审稿人
1 Hz 无效、5 到 30 Hz 有效,是不是说明光本身没有作用?
参考防守(先自己组织语言再看)
只能说排除了「只要有光就有效」这一种最简单的解释。它是一条旁证,替代不了对照组:1 Hz 的光比 30 Hz 的光少得多,光的副作用有没有,还得靠表达了荧光蛋白但没有光开关的小鼠,在同样的光下去看。荧光蛋白自己会发荧光,对神经元没有光控作用,拿它当替身,和实验组就只差光开关这一样。下一节把这个对照补上。
14.3 光一开,行为就变了,这样就证明了吗?还有哪几件事得先排除?
一个实验只有一组小鼠:分泌素神经元里表达了 ChR2,给它们照蓝光,小鼠醒得更快。下面哪一种说法,这一组数据本身就能排除?
答完再看
第三个对。这一组里同时发生了好几件事:细胞读出了一个外来蛋白,小鼠看得见光,光照还会发热,光脉冲的节奏还是研究者选的。结果变了,每一件事都可以是原因。第一个和第二个说的是光本身的两种作用,这组数据对它们没有任何办法。
要排除的有三件。第一件是光本身。小鼠看得见光,光纤出口的光会从颅内漏出来被眼睛看到,光还会发热(第 11 章)。小鼠醒得更快,可能是被光或热惊醒的,和那群细胞无关。Lima 与 Miesenböck 2005 年在果蝇里专门查过这一点,他们的摘要写道,这些反应在一种消除了光转导的突变体里依然不减,说明反应来自神经元被直接激活,视觉输入没有掺进来。第 13 章里的红移开关也有这一层用处:Klapoetke 等 2014 年的摘要说,果蝇行为实验里用 Chrimson 时,视觉系统带来的干扰很小。
光纤出口的光强很大,而且要持续照几十秒。除了让细胞里的光开关起作用,这束光还可能对组织做什么?这对设对照组意味着什么?
变式:把光换成红移开关用的红光,发热的问题会完全消失吗?
第二件是表达本身。装进细胞的是一个外来蛋白,它占着细胞膜,细胞原来的状态有没有变,要单独问。第 9 章里 Boyden 等 2005 年就是这样做的:表达 ChR2 的细胞和不表达的细胞,膜电阻、静息电位都没有差别,这是把「装了它」这件事单独拿出来量。
我读一个光遗传学实验,先找实验组,再逐个找对照,每找到一组就问一句:它排除了哪一件事。拿 Liu 等 2012 年的实验来读。小鼠先经历恐惧学习:在一个环境里遇到不愉快的刺激,之后一回到那个环境就害怕。研究者让学习那一刻活跃的海马齿状回细胞(海马是和记忆有关的脑区)读出 ChR2,也就是给这一批细胞「记上号」,之后在另一个环境里用光重新激活它们,光是 473 nm、20 Hz、15 ms 的脉冲。小鼠在光亮的时候冻结(一动不动,恐惧的一种表现)增多,光灭的时候没有。光灭的那一段,是同一批小鼠表达了、没有光、没有冻结,它排除的就是表达本身。
读出 ChR2,学过恐惧,照光
光亮的时候,冻结增多。
读出黄色荧光蛋白 EYFP(替身),学过恐惧,照同样的光
冻结没有增加。
差别在:只有光开关这一样不同,光、学习、被标记的细胞比例都相近,所以光本身排除了。
| 照光 | 不照光 | |
|---|---|---|
| 表达光开关 | 实验组,要看的效应 | 排除表达本身:外来蛋白在,光不在 |
| 只表达荧光蛋白 | 排除光本身:看见光、发热,手术和表达的过程也相同 | 基线 |
对照组(control group):除了你要检验的那一件事,别的都和实验组一模一样的一组。组与组之间只差一样东西,结果的差别才能归给它。
摘要里还有两组,在四格之外。一组小鼠表达 ChR2 的细胞比例相近,但没有经历恐惧学习,光照下没有冻结,说明光把这一类细胞打开,本身并不会引起冻结,要的是学习那一刻被标记的那一群。另一组在和恐惧无关的环境里标记细胞,光重新激活它们,也没有引起冻结,提示效果跟着具体的那一段记忆走。还剩第三件事,刺激的方式不自然,对照组管不了,下一节单独讲。
有人只设了一组:分泌素神经元表达 ChR2,照蓝光,小鼠醒得更快。他据此写「分泌素神经元的活动足以让小鼠醒来」。请构造一个具体情形,使这组结果完全成立,而这个结论是错的。
变式:这一组的小鼠,每只都有「光灭」和「光亮」两段,光灭那一段就是同一只小鼠自己的对照。它能代替上面那组「没有光开关、照同样的光」的对照吗?
你想检验一群神经元是不是「让小鼠醒来」的原因,既要检验充分性,也要检验必要性。写出至少需要哪几组动物、各自表达什么、怎样照光、用哪一类光开关,并说明每一组排除了什么。
变式:如果只做必要性这一半,最多能下什么结论,不能下什么?
14.4 光让一群细胞同时放电,这样的活动在自然状态下会出现吗?「足以」到底证明了什么?
Liu 等 2012 年的实验里,光重新激活了学习时被标记的那群齿状回细胞,小鼠就冻结了,对照组都排除了光本身和表达本身。你觉得这个结果最能说明什么?
答完再看
第二个对。摘要的结论写的是:激活一小批属于记忆印迹(被认为存着这段具体记忆的那一批细胞)的细胞,足以引发那段记忆的回忆。「足以」说的是这群细胞能做到什么。第一个把「足以」写成了「自然就是这样」,20 Hz 的节奏是研究者选的,不是在小鼠脑里测到的。第三个被对照组排除了:读出荧光蛋白、照同样光的小鼠没有增加冻结。
光做的事和自然回忆时发生的事,差在三处。光照得到的被标记细胞,在同一时刻开始放电,放电的频率和脉冲长短由研究者事先定好,被打开的也只是学习时被标记的那一批。自然回忆时,哪些细胞、按什么次序、以什么节奏放电,摘要的结论没有回答,它回答的是「足以」。
Liu 等自己在正文里也写到,最初那一组里光诱发的冻结,比小鼠回到当初那个恐惧环境时通常见到的低。光重现出来的,只是自然回忆的一部分。
这个实验能证明的
在 473 nm、20 Hz、15 ms 的脉冲下,这批被标记的细胞的活动足以引起冻结,光本身和表达本身已由对照组排除。
这个实验不能证明的
自然回忆时,就是这批细胞以这样的节奏放电引起了冻结;也不能证明没有它们,回忆就发生不了。
差别在:「足以」说的是这群细胞能做到什么,「自然就是这样」说的是平时怎么发生的。
Adamantidis 等 2007 年的频率依赖,同样要带着条件读:5 到 30 Hz 的驱动足以缩短醒来的潜伏期,1 Hz 不行。光遗传学里频率是研究者拨的,拨到哪一段,才算落在细胞自己会用的范围里,是读每一个结论时都要问的第三件事。结论要带条件写,「在这样的驱动下,足以……」。
有人读完 Liu 等 2012 年的论文后写道:「人回忆起一段恐惧,就是海马齿状回里那群细胞在 20 Hz 下放电。」请指出这句话至少有哪两处超出了实验证据。
变式:假设另有一个实验用抑制类开关把同一批细胞关掉,回到恐惧环境时冻结减少。这个结果补上了上面哪一处缺口?还剩哪一处?
有人把 ChR2 交给下丘脑区域里所有神经元,再用 5 到 30 Hz 的蓝光去照,小鼠醒得更快。他能不能据此写「分泌素神经元的活动导致醒来」?
变式:改成只有分泌素神经元读出 ChR2,但光斑大得盖住了整个区域,结论能归给分泌素神经元吗?
答辩:如果我是审稿人
用光强行同步驱动一群细胞,这种活动在自然状态下会出现吗?充分性实验证明的到底是什么?
参考防守(先自己组织语言再看)
证明的是「这群细胞的活动足以引发」,不等于「自然情况下就是这么发生的」。光让被标记的细胞同时放电,节奏由研究者定,自然回忆时它们怎么放电,摘要的结论没有回答。Liu 等自己也写了,光诱发的冻结比回到恐惧环境时通常见到的低,说明光重现的只是一部分。要逼近「自然就是这样」,还得做必要性实验,并把自然状态下这群细胞的放电模式记录下来,两边对上,才有底气。
14.5 脑深部电刺激已经管用,光遗传学还能告诉我们什么?
帕金森病的病人,医院里有一种办法叫脑深部电刺激:在脑深处埋一根电极,通电。它有效,可电流一通,针尖周围各种细胞和纤维一起受影响,起作用的是哪一类,医生、工程师和神经科学家争论得很激烈,Aravanis 等 2007 年的摘要里就提到过这场争论。
Gradinaru 等 2009 年用光遗传学去拆这个问题。在自由活动的帕金森模型啮齿动物(用人工办法让鼠类出现类似帕金森病症状的动物)身上,他们系统地驱动或抑制一组不同的回路成分,发现丘脑底核里的治疗效果,可以用直接、有选择地刺激投射到该区的传入轴突来解释。光遗传学在这里没有发明新疗法,它做的是拆开一个已经管用的疗法,看疗效落在哪一个部件上。
脑深部电刺激(deep brain stimulation, DBS):在脑深处植入电极,通电来治疗某些神经和精神疾病,包括帕金森病和重度抑郁。
丘脑底核(subthalamic nucleus):脑深处一小块神经元聚集的区域(核团),摘要里治疗效应所在的位置。传入轴突:从别的区域伸进这块核团的神经纤维。
摘要说,疗效「可以用」直接刺激传入轴突来解释。如果有人把它写成「疗效就是靠刺激传入轴突,别的细胞都没用」,多出来的是什么?
变式:要支持「别的细胞都没用」,还得再做什么样的实验?
对你而言未知分泌素神经元的「必要性」,有没有被光遗传学检验过?
本章三个例子里,Adamantidis 等 2007 年做的是打开,摘要里没有关掉的实验。Liu 等 2012 年的引言提到,更早的研究用消融或抑制,得到记忆表达减弱的结果,这是别的实验组的工作。关于分泌素神经元,用抑制类光开关去做必要性检验,本站的材料里没有,所以标成对你而言未知。
先做这一步:打开 Europe PMC(europepmc.org),搜索 orexin hypocretin optogenetic silencing sleep,读最早的两三篇摘要,记下它们用的是第 12 章里的哪一类抑制开关,结论说的是必要还是充分,有没有设只表达荧光蛋白的对照组。
给实验台加一个实验设计检查器
为什么现在才加它:到第 13 章为止,台上有了会放电的神经元、光开关、会衰减的光和一份选型函数,可以做出「光一照,细胞放电」。从这一级起,台上还要判断一个实验设计能不能据此下结论,它读入你设的几组动物,检查表 14-1 里的哪一格空着。
难点有三处。其一,「光本身」的对照必须是只表达荧光蛋白的组,不能是没装任何东西的组:没装东西的动物也能排除看见光和发热,可注射和表达的过程没有被匹配,组与组之间差的就不止一样,本站取更严的一档。其二,「both」只能替代「表达了但不照光」:同一批动物自己有光灭的一段,可光亮那一段里光本身的作用仍混在里面,所以它顶不了没有光开关的对照。其三,无论设多少对照组,第三件事(刺激方式)都排除不了,检查器的第三行永远只是提醒,不能写成「已排除」。
自己验:输入只有一组 [('实验', 'opsin', 'on')],应该同时得到「不能排除光本身」和「不能排除表达本身」。再加 ('荧光对照', 'fluor', 'on'),应该变成光本身「已排除」、表达本身仍「不能排除」。再加 ('表达不照光', 'opsin', 'off'),两条都应该是「已排除」,第三行仍是提醒。输入 [('实验', 'opsin', 'both')],应该是表达本身「已排除」、光本身「不能排除」,对应 Liu 等 2012 年的光灭一段。输入 [('实验', 'opsin', 'on'), ('没装', 'none', 'on')],光本身仍应写「不能排除」。输入只有 [('对照', 'fluor', 'on')],应该报「缺实验组」。六个都对上,这一级就成了。
读的时候要小心:三个实验放在一起,不是为了比较结果的大小
Adamantidis 等 2007、Gradinaru 等 2009、Liu 等 2012 的小鼠、脑区、光的参数和行为各不相同,本章只拿它们说明实验逻辑:充分性、必要性和对照组各排除什么。Liu 等 2012 的「光诱发的冻结比自然回忆低」取自该文正文的叙述,只用来说明光重现的是自然回忆的一部分,不拿来和别的实验比较。
留给你的问题
一个实验里,同一批小鼠既有光灭的一段,又有光亮的一段。这种设计替你省掉了表 14-1 里的哪一格,又省不掉哪一格?为什么?
不看材料,写下这一章的三堵墙
第一堵:一起出现不等于导致,三种解释都能解释记录,逼出一只能自己去拨动细胞的手,打开检验充分性,关掉检验必要性。第二堵:拨动之后,结果仍可能来自光本身(看见光、发热)或表达本身,逼出 2×2 对照:只表达荧光蛋白的组排除光本身,表达了但不照光的一段排除表达本身。第三堵:「足以」不等于「自然就是这样」,光是同时、按研究者选的节奏驱动的,结论要带条件写,还要有必要性实验和自然放电的记录来补。
第15章 走到病人身上
光开关装进了眼睛,病人为什么还要戴特制护目镜
开篇故事第 15 集 · 四格里只亮一格的病人一束蓝光的十八天
系统提示赌约判负:病例复现里,治疗后不戴护目镜,患者检测不到任何物体,蓝光过敏输了。
系统提示按照赌约,今天问答环节的第一个提问,由蓝光过敏来回答。
半个小时之前,暗室的灯刚熄,投影机出风口吹出一股带着灰尘味的热风,岑老师站在发亮的幕布旁边开了讲,今天只讲眼睛。她说,视网膜色素变性里,感光细胞一批批死去,后面接力的几层细胞却还有一部分活着,包括神经节细胞,让这一类细胞读出红移的光开关 ChrimsonR,它们就能自己学会感光。
幕布上出现一张四格的空表,横着是不戴护目镜和戴护目镜,竖着是治疗前和治疗后,每一格问的是同一件事,患者能不能检测到面前的物体。蓝光过敏第一个举手:“开关已经在细胞里了,治疗后那两格肯定都亮,护目镜多此一举,我拿问答的第一个提问来赌。”
岑老师没有说话,按了一下遥控器,四格依次翻开,前三格是灰的,只有治疗后戴着护目镜的那一格亮着。
系统提示摘要复现:治疗前不戴、治疗前戴、治疗后不戴,三种情形下患者都检测不到任何物体,只有治疗后戴着护目镜,他才能感知、定位、数出并摸到不同的物体。
蓝光过敏瞪着那一格:“他治疗后明明已经有开关了,睁着眼睛,为什么还是看不见?”岑老师说:“感光细胞吸一个光子,后面还有一串分子接力,一站一站把它的作用传大,所以很弱的光也看得见。光开关的后面没有这串接力,一个光子最多让一个通道开一次门。”
许一舟追问:“第六章算过,开一次门能放过去一百到一万个电荷,不是已经很多了吗?”岑老师说:“人眼那条链传得更大,大多少,我们的材料里没有数。本站只做一个推断,要推动神经节细胞,需要的光子比感光细胞多,日常的光不够,摘要里没有写光强,这一步是推断。”
所以论文里的病人戴着特制护目镜,它检测局部光强的变化,把对应的光脉冲实时投射到视网膜上,一个点一个点地把眼前的场景写给那些神经节细胞,投出的光有多强,摘要里同样没有写。最后一张幻灯片只有摘要的最后一句,这是神经退行性疾病光遗传治疗后部分功能恢复的首个报告,岑老师把一名、部分、首个三个词圈了出来。
灯一亮,问答开始,第一个被点名的人就是蓝光过敏。岑老师问:“只有一个病人,会不会只是他相信自己在接受治疗?”蓝光过敏攥着笔的手心全是汗,盯着那四格说:“护目镜单独不行,开关单独也不行,两样凑齐才亮,光靠他相信,不该只亮一格。”岑老师说:“这个回答站得住。再加一条,脑电是客观的记录,不靠病人自己说,它把安慰剂的可能压低了,压不到零,一个病例只能说这件事可以发生。”
装了光开关的病人为什么还要戴护目镜,日常的光不够吗
1L许一舟我把摘要里的四种情形画成了表,三格检测不到任何物体,只有治疗后戴着护目镜的那一格,出现了感知、定位、数出和触摸。
2L衣藻本藻摘要最后一句写着首个报告,我觉得可以直接写成光遗传学让失明的人重见光明了,反正论文已经发表在 Nature Medicine 上。
3L电极老炮这么写不对,摘要里只有一名患者,只有部分功能,列出来的也只是感知、定位、数出、摸到,写成重见光明,就是把一名说成了所有人,把部分说成了全部。
4L蓝光过敏我服输,下午输就输在以为睁眼就行,装了开关的细胞没有人眼里那串接力,光要靠护目镜写得足够亮,光台里的分数我记下了。
5L岑(带教认证)3L 说得对,另外提醒各位,投出的光有多强,摘要里没有写,我们也不往外猜,问答的第一个提问,蓝光过敏答得不差。
散场的时候,光台推送了一条明天辩论会的通知,题目只有一行:一个奖只能给三个人,你替谁说话?
系统结算 · 本章考点
- 视网膜色素变性里感光细胞一批批死去,后面接力的几层细胞,包括神经节细胞,有一部分还活着,光开关读出在还活着的那一类上;眼睛本来就是接光的器官,光不用埋光纤就能落到视网膜上
- 光开关的后面没有人眼里那串接力,一个光子最多让一个通道开一次门,一次开门约 10² 到 10⁴ 个电荷;本站据此推断需要比日常更亮的光,摘要里没有写光强
- Sahel 等 2021 年(Nature Medicine 摘要):一名患者,眼内表达 ChrimsonR,戴特制护目镜,护目镜检测局部光强的变化,把对应的光脉冲实时投射到视网膜上
- 表 15-1 的四格里,治疗前不戴、治疗前戴、治疗后不戴,都检测不到任何物体,只有治疗后戴护目镜才能感知、定位、数出、摸到物体,视觉皮层上方的脑电出现与物体相关的活动
- 摘要里的一名、部分、首个定下证据的分量:一个病例说明这件事可以发生,说明不了通常发生,也不知道能保持多久
- 还差更多的病人、更长的时间、分辨率和光的安全;往脑里走,还要解决光怎么送到深处
一个人眼前一片黑,看不见面前有没有东西。给他的一只眼睛里的细胞装上一个光开关,再戴上一副特制的护目镜,他开始能感知面前有东西,指出东西在哪里,数出有几个,摸到它。这是 2021 年一篇论文报告的情形,论文里的病人只有一个。这一章讲光遗传学为什么先从眼睛走向病人,这个病人身上发生了什么,以及一个病例到底能说明多少。
学完这一章你应该能做到
- 说出光遗传学走向人体,为什么从眼睛开始,而不是帕金森或抑郁
- 说清视网膜色素变性的病人哪一类细胞死了、哪一类还在,光开关装在哪一类上
- 用第 6 章的光子账解释:装了开关为什么还要护目镜,为什么要比日常更亮的光
- 读出 Sahel 等 2021 年摘要里自带的一组对照,说出每一格排除了什么
- 用语气写出一个病例的证据分量,说出脑内应用还差哪几块
这一章给虚拟实验台加一个护目镜模块:把外界的亮度图换成要投射的光脉冲,亮的地方发脉冲,暗的地方不发,再交给第 9 章的光开关神经元。前面台上只有「你自己设定的光脉冲」,没有「从世界里来的光」,这一级补上从世界到脉冲的那一段。
15.1 光遗传学要先用在人身上,从哪个器官开始最合理?
前面十四章里,光遗传学的实验大多在脑里。如果要先在人身上试,你觉得从哪里开始最合理?
答完再看
第二个对。第一个把「最需要」当成了「最容易做」:脑深处的光走不了几毫米(第 11 章),要埋光纤才能照到。第三个忘了光在组织里会衰减:基因送进去了,光到不了,开关就没有东西可吸收。眼睛本来就是接光的器官,瞳孔后面是一个让光穿过的腔,光不用谁埋,自己就落到视网膜上。
脑里的难处我们已经算过:光从光纤出来,走不了几毫米,要照到深处就得把光纤埋进去;要把基因送进脑里某一类细胞,也要一条通路(第 10 章只讲了概念)。眼睛是另一副样子:光进得去,视网膜上的细胞又分成固定的几层,每一层是哪一类细胞,位置清清楚楚。
脑深处的核团
光出光纤走不了几毫米,要把光纤埋进脑里,光才到得了。照到的细胞,周围各类细胞混在一起。
视网膜
光从瞳孔进去,天然就落在视网膜上,不用埋任何东西。视网膜分层,每一层是哪一类细胞,位置是固定的。
差别在:一个要把光送进去,一个光本来就在那里。
第二个理由是病本身。视网膜里的感光细胞(视杆细胞和视锥细胞)把光变成电信号,再由几层别的细胞接力,最后由视网膜神经节细胞把信号通过视神经送往大脑。在视网膜色素变性里,感光细胞一批批死掉,人逐渐看不见,可后面接力的几层细胞里,有一部分,包括神经节细胞,还活着。接力线断了最前面的一环,后面的人还在原地站着。
思路就清楚了:感光细胞死了,就让还活着的下一层细胞自己学会感光。2006 年,潘卓华实验室在 Neuron 上报告,在感光细胞退化的小鼠里,让还活着的视网膜内层神经元(在感光细胞后面接力的那几层)读出 ChR2,视网膜就重新能够编码光信号,并把信号传到视皮层(大脑里处理视觉的区域)。
视网膜色素变性(retinitis pigmentosa):一类神经退行性的眼病,也就是神经细胞会一批批退化死亡。在这种病里,视网膜里的感光细胞逐渐死去,严重时人会完全失明。
视网膜神经节细胞(retinal ganglion cell):视网膜里最后一层神经元,它们的长纤维汇成视神经,把视觉信号送往大脑。
两位病人都失明了。甲:感光细胞死光了,神经节细胞和视神经完好。乙:神经节细胞也大批死亡。在神经节细胞上装光开关的办法,更适合哪一位?说出理由。
变式:如果死的是视神经,而不是感光细胞,在神经节细胞上装光开关还有用吗?
答辩:如果我是审稿人
眼睛光进得去,所以最容易做,可「最容易」是不是就等于「最该先做」?
参考防守(先自己组织语言再看)
不等于。这一节只回答了从哪里「最合理地开始」:光进得去,视网膜里又有一层还活着的细胞可以装开关。该不该做,还要看安全性,比如这种治疗会不会引起免疫反应、效果能保持多久,这些是 15.4 要回答的另一类问题,材料里能找到的只有一个病例。
15.2 开关装上以后,病人睁眼就能看见吗?
病人的神经节细胞里已经装上了 ChrimsonR(第 13 章里的红移开关)。他睁开眼,日常室内的光落进眼里。你觉得会怎样?
答完再看
第二个对。第 5 章讲过,人眼的感光细胞里,视紫红质吸光之后要经过一串分子一站一站传话。教科书里把这条传话链看作人眼在暗处也能看见的原因:一个光子的作用沿着链一级级传大。光开关装进神经节细胞以后没有这条链,一个光子最多让一个通道开一次门,第 6 章算过,这一次开门的回报是约 102 到 104 个电荷。人眼那条链把一个光子的作用传得更大,大多少,本站的材料里没有数。本站据此推断,要推动一个神经节细胞,需要的光子数比感光细胞多,日常的光不够。摘要没有写光强,这一步是推断,不是摘要的内容。第一个把神经节细胞当成了感光细胞。第三个把方向弄反了,这里的麻烦是光太弱。
要这么亮的光,不能指望环境来提供。Sahel 等 2021 年的做法是给病人戴上特制的护目镜。摘要写道,护目镜检测局部光强的变化,把对应的光脉冲实时投射到视网膜上,去激活装了开关的神经节细胞。外面世界里哪里亮了、哪里暗了,由护目镜读出来,再用脉冲光一个点一个点地写在视网膜上。投出的光有多强,摘要没有写。
人眼的感光细胞
一个光子推动视紫红质,再经一串分子一站站传话,日常的光就够。
装了开关的神经节细胞
没有这串传话,一个光子最多让一个通道开一次门。本站推断它需要比日常亮的光,由护目镜按场景写成脉冲送进去。
差别在:有没有一串传话链帮着把一个光子的作用传大,没有它,光就得自己够亮。
护目镜投出的光,颜色得对上开关的吸收峰才推得动它,所以护目镜和 ChrimsonR 是配套的一对。ChrimsonR 是第 13 章认识的红移开关,τ_off 是 12.2 ms,约为 Chrimson 24.6 ms 的一半。关得快,脉冲才能排得密、分得开,这是第 8、9 章的道理。
自己推一遍:从「感光细胞死了」到「要戴护目镜」
视网膜里信号一层层往后传:感光细胞,中间几层细胞,神经节细胞,视神经。感光细胞死了,少的是哪一环?光开关装在哪里,能把这一环补上?
想好了再看
少的是最前面把光变成电的那一环。后面接力的细胞里有一部分,包括神经节细胞,还活着,把光开关装在它们身上,它们自己就能把光变成电,后面的线路原样接着用。
补上以后,这一环和原来的感光细胞比,少了什么?这对光提出了什么要求?
想好了再看
少了那串传话链。一个光子最多让一个通道开一次门,本站推断日常的光不够,光得自己够亮。
光要够亮,还要按眼前的场景一点一点写进去。这件事谁来做?
想好了再看
护目镜。它读出外面哪里亮、哪里暗,把对应的脉冲光投到视网膜上,亮度由它定,不靠环境。
脉冲能排多密?取 ChrimsonR 的 τ_off = 12.2 ms,每秒 20 个脉冲(这是练习里取的数,摘要里没有护目镜的脉冲频率),相邻两个脉冲隔 50 ms。用式 13-1 算,下一个脉冲到来时,通道还剩多少没关?
想好了再看
e 的 −50/12.2 次方,约 0.017,剩 1.7% 左右,基本关干净了,下一个脉冲能被分清。同样的间隔,Chrimson 的 24.6 ms 要剩约 13%。
为什么光开关装进神经节细胞以后,日常室内的光仍然不够,需要护目镜把光变得比日常更亮?
变式:如果有一个光开关,一个光子能让通道开一次门、放过去的电荷更多,需要的光会变少还是变多?它能代替人眼里那串传话链吗?
答辩:如果我是审稿人
要用比日常更亮的光,光会不会伤眼睛?
参考防守(先自己组织语言再看)
这是一个该问的问题,材料里没有数来回答:摘要只给出了功能上的结果,没有光强的数值和安全窗口。第 11 章讲过,光强太大,组织会发热。光强的上限和长期的安全性,要读 Sahel 等的正文和方法,这是临床研究要单独核实的内容,这里不能替它下结论。
15.3 2021 年那一位病人,摘要里到底写了什么?
Sahel 等 2021 年发表在 Nature Medicine 上的这项工作,摘要把事情写得很具体。一名因视网膜色素变性而失明的患者,眼内表达了 ChrimsonR,再配上特制的护目镜。护目镜检测光强的局部变化,把对应的光脉冲实时投射到视网膜上,去激活装了开关的神经节细胞。
患者戴着护目镜、只用治疗过的那只眼,能感知、定位、数出,并且摸到不同的物体。他看东西的时候,多通道脑电记录显示,视觉皮层上方出现了与物体相关的活动。
脑电图(electroencephalography, EEG):把电极贴在头皮上,记录大脑活动产生的电信号,不用开颅。
| 不戴护目镜 | 戴护目镜 | |
|---|---|---|
| 治疗前 | 检测不到任何物体 | 检测不到任何物体 |
| 治疗后 | 检测不到任何物体 | 能感知、定位、数出、摸到不同的物体;视觉皮层上方的脑电出现与物体相关的活动 |
按摘要,这位患者在哪三种情形下检测不到任何物体?
变式:这四格里,哪两格是在排除「光本身」和「开关本身」的作用?
15.4 一个病例,能说明多少?还差什么?
Sahel 等 2021 年摘要的最后一句说,这是神经退行性疾病光遗传治疗后部分功能恢复的首个报告。你觉得它最能支持下面哪一句?
答完再看
第二个对。摘要里有三个词定下了分量:「一名」患者,「部分」功能,「首个」报告。第一个把「部分」写成了「治愈」,把「一名」写成了「所有」。第三个把能感知、定位、数出、摸到物体,写成了正常的视觉,摘要列出的只是这几项功能。
语气要对着证据的分量放。这是一个病例,不是一个对照试验:对照试验要把许多病人随机分成治疗和不治疗两组再比较,这里没有那样的一组,也没有许多病人的平均。可这一个病人身上有一组自带的对照(表 15-1)。治疗前,戴不戴护目镜都检测不到,说明护目镜自己造不出视觉;治疗后不戴护目镜也检测不到,说明开关自己造不出视觉。只有两样凑在一起才出现,第 14 章的 2×2,在这里换了一张脸。
这个病例能说的
在这一个病人身上,开关和护目镜齐备时,出现了摘要里列出的部分视觉功能,护目镜和开关各自单独都不行。
这个病例不能说的
光遗传学治愈了失明;每位病人都会这样;这样的效果能保持多久。
差别在:一个病例说明「这件事可以发生」,说明不了「这件事通常发生」。
还差几块,下面只写推理。病人数:一个人的结果,换一个人会不会一样。时间:效果能保持多久,摘要里没有写。分辨率:摘要列出的是感知、定位、数出、摸到物体,这些是粗尺度的任务,护目镜每次能往视网膜上写多细的图像,要另外回答。光:需要足够亮的光(15.2),亮到多少对眼睛仍然安全,要单独核实。再往脑里走,还要解决光怎么送到深处(第 11 章),以及这类治疗对大脑的长期安全性。
摘要说,这位病人治疗前戴不戴护目镜、治疗后不戴护目镜,都检测不到任何物体。这几种情形各排除了什么?如果只有「治疗后戴护目镜」一种情形,能不能确定功能是治疗带来的?
变式:再加一种情形:治疗后戴护目镜,但投出的脉冲与眼前的场景无关。如果病人这时仍然能说出物体在哪,这说明什么?
有人提议,把「光开关加护目镜」的方案用到脑深处的帕金森病人身上。写出至少三个要重新回答的问题,各对应前面哪一章的道理。
变式:同一份方案,如果换成需要在脑表面、不到 1 mm 深处的病,哪几个问题会变得容易?
答辩:如果我是审稿人
只有一个病人,会不会只是安慰剂效应(病人相信自己在接受治疗,就感觉好转)?
参考防守(先自己组织语言再看)
摘要里有几处使安慰剂解释更难成立:治疗前后做了对照,戴和不戴护目镜做了对照,还有一个客观的指标,脑电图上出现了与物体相关的活动。这些把「病人期待着看见」这种解释压低了,却压不到零,也替代不了许多病人、有对照的试验。所以最稳的说法是:这个病例提供了可行性的证据,不是疗效的证明。
对你而言未知光遗传学能不能安全地用在人脑里?
这个问题有两层:科学上有没有公认的答案,和今天的进展到了哪一步。本站的材料到 2021 年的一个眼病病例为止,脑里的应用要埋光纤(第 11 章),材料里没有任何人脑的数据,所以哪一层本站都不替你下结论,标成对你而言未知。
先做这一步:打开 ClinicalTrials.gov,搜索 optogenetic,把能找到的试验按身体部位分成眼和脑两堆,记下各自处于哪个阶段;再找 Sahel 等 2021 年全文,读它的讨论一节,看作者自己列出了哪些尚未解决的问题。
给实验台加一个护目镜模块
为什么现在才加它:到第 14 级,台上的光脉冲都是你自己设定的,几赫兹、几毫秒、哪几个神经元亮。可 15.2 里说过,真正的用法是让外面的世界决定脉冲:哪里亮,哪里就有一串脉冲,别的地方一片安静。这一级补上从亮度图到脉冲的那一段,输出直接交给第 9 级的光开关神经元。
难点有三处。其一,护目镜投出的光强是它自己的固定值 BRIGHT,不是场景的亮度:场景里的数只用来判断「亮」或「暗」,写进视网膜的强度要够开关用(15.2 里本站的推断),所以不能把场景的亮度数值直接当脉冲强度传下去。其二,比较要用严格大于,恰好等于阈值的格子算暗,边界上差一点,图案就会多出一个点。其三,摘要写的是护目镜「检测局部光强的变化」,这一级为了先跑通,用的是最简版:亮度超过阈值就发脉冲。「只对变化发脉冲」留作下一步的变式,到那时,两帧之间没有变化的格子就该安静下来。
自己验:给上面这个 3×3,阈值 100,放电的格子应该正好是中间一列三个,其余六格的放电数是 0,打印出来是一条竖线(每一行都是 . X .)。阈值改成 205,只有中间那一格(210)放电,因为 205 不严格大于 205。阈值改成 250,九格都不放电,图是空的。阈值改成 5,九格全放电,图是一个实心方块,认不出形状。这里假设第 9 级的神经元在 20 Hz、10 ms 的脉冲下至少放一个电。四个都对上,这一级就成了。
读的时候要小心:本章的事实只依据一份摘要
Sahel 等 2021 年的全文本站没有读,本章写的事实全部来自摘要,本站自己的推断(比如为什么需要护目镜)在正文里已经标明。患者的年龄、失明了多少年、随访多久、护目镜的参数、投射的光强数值,摘要里都没有,本章没有写;实验台练习里的亮度图和 20 Hz、10 ms 是练习里取的数,不是护目镜的真实参数。「首个」是摘要自己的说法。Bi 等 2006 年同样只依据摘要,摘要里写的是视网膜内层神经元,Sahel 等的摘要里写的是神经节细胞,神经节细胞属于内层神经元的一类。
留给你的问题
把第 14 章的 2×2 对照放到这位病人身上,摘要里的哪几句话各对应一格?如果你是审稿人,还想再加哪一种情形,才更能排除「护目镜带来的别的线索」?
不看材料,写下这一章的三堵墙
第一堵:脑深处光照不进,埋光纤才能照到,基因也不好送,逼出从眼睛开始:光天然进得去,感光细胞死了而后面接力的神经节细胞有一部分还活着,可以让它们自己学会感光。第二堵:光开关没有人眼感光细胞那串传话链,本站推断日常的光不够,逼出特制护目镜和红移的 ChrimsonR:护目镜按场景写成够亮的脉冲,关得快的开关让脉冲排得开。第三堵:一个病例的分量有限,它自带治疗前后、戴与不戴护目镜的对照,可只有一个病人、效果能保持多久不知道,还差更多病人、更长时间,脑内应用还要解决光递送和安全性。
第16章 一个奖只能给三个人
同一项工作,六个人怎么变成了三个人
开篇故事第 16 集 · 六个人的奖被截成了三个一束蓝光的十八天
食堂的黑板上,今天的菜单被擦掉了一半,许一舟用粉笔在剩下的半边画好了一张表,厨房计时器的发条在蓝光过敏手里咔嗒咔嗒地走着,离铃声还有四十秒。
半个小时之前,岑老师在食堂门口抽了签,辩题只有一行:2013 年六个人分一份 Brain Prize,2026 年三个人分一份诺贝尔奖,六个人是怎么变成三个人的?输的一方要连夜给光台写一份出处表,台上每一个数出自哪篇论文,一行一行写清楚,明天结营闯关之前交齐。许一舟一个人抽到了正方,反方是衣藻本藻和电极老炮,其余的人端着餐盘围了一圈。
许一舟的算法很干净。他昨晚把 2002 年和 2003 年两篇论文的作者名单抄成了一张表,粉笔点着黑板说:“第一位做的实验最多,最后一位带着课题,位置靠两头的功劳大,六个人砍成三个,就是按位置往里取。照这个读法,2002 年那篇有七位作者,黑格曼排最后,ChR1 是他的发现;2003 年那篇有九位作者,班贝格排最后,ChR2 是班贝格的发现。”
衣藻本藻把一张打印纸推到桌子中央,指着两份名单的末尾:“同样是黑格曼和班贝格,2002 年班贝格倒数第二、黑格曼最后,到了 2003 年两个人的位置换了过来,按你的读法,他们的功劳一年之内也换了一次?”许一舟张了张嘴,粉笔在黑板上断成两截。电极老炮这时候举起了手,嘴里还叼着半根筷子:“对照组呢?你只拿两篇论文推出一个排名,应该拿去对一对别的奖,看它们是不是同一个排名截出来的。”
衣藻本藻早有准备,又抽出一张表摊开,2013 年六人,2018、2020、2021、2026 年各三人,一格一格打着黑点,计时器就在这时候响了。岑老师拿起那张表,用指甲在四列三人名单上各划了一道。“2018、2020、2021、2026 这四份三人名单,没有任何两份相同。要是每个奖都取同一个排名的前三,这四份该一模一样。诺奖按规则每项最多三个人,截是必须的,从哪里截,要看授奖词圈的是哪一段路。位置只记分工,装不下功劳大小。”
系统提示辩论判定:正方只用作者位置这一项依据,没有拿别的奖的名单去对照,判负。
系统提示赌约兑现:许一舟今晚写完全营的光台出处表,找不到来源的参数,一律在等级栏写明找不到出处。
认输帖:论文里作者排在最后一位,到底能说明什么
1L许一舟我认输,同样两个人在 2002 和 2003 年的末两位换了一次,我的表读出来功劳也换了一次,这个读法站不住。
2L蓝光过敏可是三个人拿了奖,肯定就是这三个人做得最多,名单外面的人做得少,这总没错吧?
3L衣藻本藻不对,博伊登 2011 年的回顾里写,2005 年那篇论文约一半的 ChR2 实验是在钱永佑的实验室做的,他不在作者名单里,落在名单外面,说明不了那一步做得少。
4L电极老炮补一条对照,黑格曼五份名单全在,戴塞洛斯在四份里,其余的人各在一到三份里,没有哪个顺序能把这些列叠成一份排名。
5L岑(带教认证)3L 和 4L 都对,名单只回答这个奖想纪念哪一段路,回答不了每个人各值多少。
熄灯之后,许一舟坐在暗室门口的小桌前写出处表,每个数后面写一个字母,A 是读过原文,B 是只读了摘要,C 是转引或二手,D 是自己算出来的。第一行他写的是新闻里三位获奖者的年龄,STAT 写 55、72、73,美联社和路透社写 54、71、73,他按出生日期算了周岁,选了后一组,备注里写明这是推算。
写到“ChR2 约 1 mW/mm² 就能激活”这一行,他把手边所有的论文都翻了一遍,没有找到哪一篇说这个数是量出来的,只好在等级栏写下一个问号,旁边注明找不到出处。光台恰好在这时推送了一条通知,他没敢点开,只看见标题的前半句:明天结营闯关,出处表里画着问号的格子,光台会原样用上。
系统结算 · 本章考点
- 2002 年 ChR1 论文七位作者,纳格尔第一、班贝格倒数第二、黑格曼最后;2003 年 ChR2 论文九位作者,纳格尔第一、黑格曼倒数第二、班贝格最后:作者位置是惯例,读不出谁的功劳更大
- 生命科学论文里常见的约定是第一作者做具体实验最多、最后一位常是带课题的人、通讯作者负责联系期刊,各处并不统一,不能当功劳排行榜
- 2005 年那篇论文第一作者博伊登,通讯作者戴塞洛斯;博伊登 2011 年的回顾写到,约一半的 ChR2 实验在钱永佑的实验室做,他不在作者名单里
- 2018、2020、2021、2026 四份三人名单没有任何两份相同;黑格曼五份名单全在、戴塞洛斯四份,没有哪个顺序能叠成一份排名
- 诺奖按规则每项最多三人,授奖词先圈出一段路,名单再从圈里取人;评审内部怎样商量,公开材料里没有
- 出处表分五级:A 读过原文,B 只读摘要,C 转引或二手,D 本站计算,? 找不到出处;「ChR2 约 1 mW/mm² 就能激活」这一行要写找不到出处
- 同一天的新闻里年龄对不上:STAT 写 55、72、73 岁,美联社和路透社写 54、71、73 岁;按出生日期算周岁,2026 年 10 月 5 日是 54、71、73,所以用后一组,并写明是推算
2013 年,六个人分一份 Brain Prize。2026 年,三个人分一份诺贝尔奖,授奖理由是光门控离子通道和光遗传学。名单从六个人变成三个人,这条路上做过的工作并没有因此变少。一项发现到底是谁做出来的,一份名单又是怎样从这件事里截出来的,这一章拿材料一条一条对。
学完这一章你应该能做到
- 说出「谁第一个想到,奖就给谁」这条规则撞上的事实,以及当时真正稀缺的是什么
- 看着一篇论文的作者名单,说出哪些话能从位置上读出来,哪些读不出来
- 拿五个奖的名单对照授奖词,讲清名单为什么每次都不一样
- 面对同一天对不上的两条新闻,按固定的顺序核对,并把拿不准的原话改成转述
- 给自己的实验台写一份出处表,一眼找出没有出处的参数
这一章给虚拟实验台加上一份出处表:台上每一个数,旁边都写清它来自哪篇论文,是原文核对过的,还是转引来的。前十五级往台上放了神经元、光开关、光强、氯浓度的各种数,现在它们只是一堆数,哪个站得住,没有人说得清,出处表要把这件事摊开。
16.1 谁第一个想到用光控制神经元,奖就该给谁?
要给一项发现发奖,最省事的规则是,谁第一个想到用光控制神经元,奖就给谁。假如真的去翻 2000 年到 2005 年的材料,找这个最早想到的人,你觉得会翻出什么?
答完再看
第二个对。博伊登在 2011 年的回顾里写,用光去激活经基因指定的神经元,这个想法当时明摆着就在空气里,很多组都在追,他的英文是 clearly in the air。2002 年米森伯克实验室的论文已经让神经元对光敏感,博伊登回顾里还说,那篇论文指出用光激活指定的神经元可以当工具,去找神经之间的联系。第一个错在以为想法只有一个源头。第三个错在漏掉了 2002 年那篇已经发表的论文。
先把这条规则认真走一遍,走法是列一张想法先后的表。材料里能排进去的有这几行。博伊登 2011 年的回顾说,2000 年春天,他和当时还是学生的戴塞洛斯,在斯坦福钱永佑的实验室里深夜讨论怎样控制特定类型的神经元,同年 5 月他写信向研究盐视紫红质的兰尼要这个基因,用途写的是用光主动控制神经元。2002 年,米森伯克实验室发表 ChARGe,把三个果蝇基因一起放进神经元,神经元就对光有了反应。黑格曼与纳格尔 2013 年的回顾还提到,更早就有人把光敏部件放进宿主细胞,例子是米森伯克和 Kramer 两个实验室。
表上有两种行:2000 年春的谈话和邮件,出自博伊登 2011 年的回顾;2002 年的 ChARGe,出自一篇发表的论文。按第 1 章的证据四档,它们各属于哪一档?如果只认原始论文,表上最早的一行是哪一行?如果也认当事人回顾呢?
变式:如果又找到一封写于 1999 年的邮件,里面写着类似的想法,它能把「最早」再往前挪吗?先要问它属于哪一档,别人能不能核对它。
表排完,规则撞了两次墙。第一次,上面那道题已经露出来:2000 年的几件事是博伊登事后写下的回忆,2002 年那篇是白纸黑字的论文,把两种证据放在同一个秤上,先要决定信谁,而这个决定本身就在改变「最早」是谁。第二次,表上的行是并排的:同一个想法,几年里被好几拨人各自做了出来,没有哪一行能指着说就是它。上面那条回顾说的就是这个:想法当时明摆着在空气里,很多组都在追。想法这样便宜,名单就没有办法从想法的先后里长出来。
那改成谁第一个把它做成了呢?2002 年米森伯克的组确实做成了,神经元听光了。可拿第 4 章的三把尺子去量,ChARGe 要三个基因一起表达,开和关都要好几秒,这是博伊登 2011 年的说法。想法有了,卡在手里的分子上。
ChARGe(2002,米森伯克组)
三个果蝇基因一起表达,脊椎动物的神经元对光敏感。开关要好几秒。想法已经白纸黑字写出来了。
ChR2 进神经元(2005,博伊登等)
ChR2 的前 315 个氨基酸接一个黄色荧光蛋白,只要一个基因。大鼠海马神经元里,第一个动作电位约 8 ms 出现,不加视黄醛。
差别在:同样让神经元听光,一个要三个基因加几秒,一个只要一个基因加几毫秒,稀缺的是后一种分子,想法不稀缺。
要的分子得只靠一个基因,开关以毫秒计,在哺乳动物的神经元里还要直接能用,最后一条动手之前并不确定。博伊登回顾里列了他们当时担心的几件事:它也许在神经元里表达不好,也许要从外面补视黄醛,也许电流小到引不起放电,还有一件,是通道视紫红质的发现论文已经发表,别的组也许正抢着试。2004 年 8 月 4 日凌晨约 1 点,他记录到的第一个表达 ChR2 的神经元,就对蓝光发出了精确的动作电位。按他的叙述,前三件担心都没有成真:ChR2 在神经元里表达出来了,电流也大到引起了放电。2005 年的论文里记下的数是,持续光照下第一个动作电位出现在光照开始后 8.0 ± 1.9 ms,培养液和记录液里都没有额外加视黄醛,这就是第二件担心的答案。
分子也只是半截路。要在自由活动的小鼠身上用,还要有把光送进脑里的光纤、把分子限定在一类细胞里的办法、让细胞闭嘴的另一半,这些在 2007 年陆续出现。所以稀缺的东西有两层,一个合格的分子,加上把它变成整套办法的一串工作,两层各有各的人。
假设 2003 年有一个新工具,只需要一个基因,就能让神经元对光有反应,可开和关都要几秒。拿 ChARGe 比,它进步在哪里?按第 4 章的三把尺子,它仍然缺哪一把?
变式:另一个工具一个基因、毫秒级,可只在爪蟾卵母细胞里测过,从没在神经元里试过。它缺的是三把尺子,还是缺一个动手之前没人能确定的东西?
一篇科普文章写道:「2005 年,博伊登等人第一次用光让神经元放电,光遗传学由此开始。」请指出这句话的漏洞,并改成一句站得住的话。
变式:把「第一次」改成「最早之一」,再问一遍这句话还缺什么证据。
答辩:如果我是审稿人
你说想法不稀缺,可是 2020 年的邵逸夫奖把米森伯克放进了名单。按你的讲法,这个奖是不是在奖一个想法?
参考防守(先自己组织语言再看)
授奖词写的是发现。邵逸夫奖公布的授奖词(颁奖机构写明奖励什么的那段话),意思是让大脑里特定的神经网络可以被远程控制的发现。米森伯克的组做出来并发表的是系统:2002 年 ChARGe 让神经元对光敏感,2005 年 Lima 与米森伯克的 Cell 论文,让果蝇里被指定的神经元用光触发跳跃、振翅、起飞。这些都是已经落到纸面上的结果。想法不稀缺,意思是想法的先后没法决定名单,做成的事有没有价值,是另一个问题,它要用三把尺子去量。一个奖看重哪一段路,名单就从那一段里取人,这是下面 16.4 要讲的。
16.2 论文的第一作者,就是主要发现者吗?
2002 年 ChR1 那篇论文有七位作者:纳格尔第一,班贝格倒数第二,黑格曼排最后。2003 年 ChR2 那篇有九位作者:纳格尔第一,黑格曼倒数第二,班贝格排最后。同样两个人,最后两个位置换了一次。你觉得这说明什么?
答完再看
第三个对。生命科学论文里常见的做法是,做具体实验最多的人排第一,带这个课题的人排最后,通讯作者负责和期刊联系。这是惯例,各个实验室、各个领域并不统一。第一个错在把位置当成排名:照这个读法,同一对人在相邻两年里互换了高低,没有哪条材料支持这个结论。第二个错在把位置当成随机:位置有约定的含义,只是这个含义装不下功劳大小。
我们先拿最硬的读法试一遍:规定最后一位是主要发现者。2002 年的名单读出来是黑格曼,2003 年读出来是班贝格。可是黑格曼与纳格尔 2013 年的回顾,讲的是一个合作。2001 年,黑格曼组里的苏尼尔·卡特里亚在衣藻的 cDNA 数据库(把衣藻读出来的基因序列收在一起的一本目录)里找到了编码较大的微生物型视紫红质的新序列。纳格尔把其中两条表达在爪蟾卵母细胞里,两个组合作证明它们编码的是直接受光开关的通道,并一起取名通道视紫红质。选卵母细胞也有来历:班贝格和纳格尔更早就把细菌视紫红质放进卵母细胞,精确测量过它光驱动质子泵的电流同电压的关系,这套办法是为另一个问题备好的,后来拿来证明了通道。一条这样的分工线,是排不进一份名单里去的。
2002 年 ChR1(Science,七位作者)
纳格尔排第一,班贝格倒数第二,黑格曼最后一位。
2003 年 ChR2(PNAS,九位作者)
纳格尔排第一,黑格曼倒数第二,班贝格最后一位。戴塞洛斯不在名单里。
差别在:同样两个人,末两位的位置换了一次,名单的写法没有变,读出来的「谁最重要」却变了。
再看 2005 年那一篇。作者五位:博伊登、张锋、班贝格、纳格尔、戴塞洛斯,第一作者是博伊登,通讯作者是戴塞洛斯。博伊登 2011 年的回顾里还写到,这篇论文约一半的 ChR2 实验是在钱永佑的实验室做的,那里有他用来记录的那台设备,他很遗憾第一篇论文里没有就此致谢。钱永佑不在这份名单里。名单没有写错,它是一种约定的格式,装不下整张地图。
名单还有一个特点,会让「队伍」这个词失灵:人在几支队伍之间来回出现。2005 年那篇有班贝格和纳格尔,2007 年 Zhang 等人发表在 Nature 上的盐视紫红质论文,作者里也有班贝格和纳格尔,还有戴塞洛斯。2005 年 Li 等人的论文作者里有黑格曼,同年线虫的那篇作者里有班贝格。数一数这些重叠,会发现论文背后的组并不是各自封闭的。
按本节的材料,说出 2005 年那篇论文的第一作者、通讯作者、最后一位作者各是谁。再说说这三个位置在生命科学论文里,各自常见的含义。
变式:2003 年 ChR2 那篇的第一作者和最后一位作者各是谁?他们两人在 2002 年那篇的位置是什么?
有人对着 2002 和 2003 年两份名单说:班贝格排在 ChR2 论文最后,所以 ChR2 是班贝格的发现;黑格曼排在 ChR1 论文最后,所以 ChR1 是黑格曼的发现。这个推理缺了什么?补上你会去读的一份材料。
变式:假设两篇论文的末两位始终是同一个顺序,这个推理会更可信吗?它仍然缺什么?
16.3 从 1971 到 2026,这些人各在路的哪一段?
把这些年份摆到一条线上,最先看到的是挤:2002 年到 2007 年这几年里,互相认识、又各有各课题的几个组,在不同的地方同时往前走。下面分两段看,先到 2003 年,再从 2004 年到今天。
按图 16-1,1973 年那篇论文提出细菌视紫红质是什么?按第 6 章讲的区别,这一类分子属于泵还是通道?
变式:盐视紫红质 1982 年确立的是什么泵?它朝哪个方向运离子?
路的起点在微生物那一头。1971 年,厄斯特黑尔特和施特克纽斯报告了嗜盐菌里的一种视紫红质,1973 年的论文提出它是光驱动的质子泵,这是整个微生物视紫红质一家的起点。班贝格和纳格尔为了测这个泵的电流和电压的关系,更早把它表达在爪蟾卵母细胞里,这是黑格曼与纳格尔 2013 年回顾里的叙述。衣藻那一头,1991 年黑格曼等在眼点处测到光调控的电流,1996 年测到延迟小于 50 微秒。两头在 2001 年到 2003 年碰上:黑格曼组里的卡特里亚找到序列,纳格尔把序列表达在卵母细胞里,班贝格和黑格曼同在两篇论文的作者名单里。
微生物视紫红质(microbial rhodopsin):细菌、古菌、真菌、藻类里一大家含视黄醛的七次跨膜蛋白,细菌视紫红质、盐视紫红质、通道视紫红质都是这一家的成员。
2001 到 2003 年两头碰上:谁找到了新序列?谁把序列表达在哪种细胞里?这样证明了什么?
变式:假如当时把序列放回衣藻自己的细胞里去测光电流,能不能同样证明它自己就是通道?为什么?
2004 年起,路上的人多了起来。
博伊登这一支
2004 年 8 月 4 日凌晨约 1 点,记录到第一个表达 ChR2、被蓝光驱动放电的神经元(博伊登的回忆)。2005 年 8 月,论文在线发表。
潘卓华这一支
2004 年 2 月起在培养的视网膜神经节细胞上试 ChR2,同年 11 月 25 日投 Nature,后又被另两家期刊退稿,2005 年 5 月在 ARVO 年会(眼科研究的学术会议)上报告,2006 年 4 月发表在 Neuron(STAT 2016 的报道)。
差别在:两支动手的月份都在 2004 年,发表的日期隔了 8 个月,发表日期当不了动手先后的证据。
同一时期还在路上的,米森伯克的组在 2005 年 Lima 与米森伯克的 Cell 论文里,让果蝇中被指定的神经元用光触发跳跃、振翅、起飞。2005 年初戴塞洛斯建起自己的实验室,一年级研究生张锋加入进来,让这段基因在神经元里的表达比原来的办法稳得多,这是博伊登 2011 年的叙述。赫利策和兰德梅塞的组、八尾宽的组、戈特沙尔克和纳格尔的合作,各自把 ChR2 用在了鸡胚脊髓、脑片、线虫上。潘卓华 2006 年的论文,是在光感受器退化的小鼠视网膜里表达 ChR2,视网膜恢复了对光信号的编码,信号传到了视皮层,第 15 章讲了视网膜这条线后来怎样走到病人身上。黑格曼与纳格尔 2013 年的回顾,把 2005 到 2006 年的这五篇一起称为光遗传学的开端。
黑格曼与纳格尔 2013 年的回顾说的光遗传学的开端,是几篇论文?来自几个实验室?这对「谁第一个做出来」这个问法意味着什么?
变式:2005 年 8 月在线的那一篇,在线日期早于另外四篇中的哪几篇?在线日期早,能不能说明那个组动手也早?
16.4 一个奖的名单,就是这段历史的定论吗?
2013 年的 Brain Prize 给了六个人,诺贝尔奖按规则每项最多三个人。2026 年的诺奖名单有三个人,三个都在那六个人里面。六个变成三个,你觉得由什么来决定?
答完再看
第四个对。把已经公布的五份名单摆在一起:2018、2020、2021、2026 四份三人名单,没有任何两份相同。如果每个奖都取同一个排名的前三,这四份应该一模一样。黑格曼五份名单里都在,戴塞洛斯在四份里,其余的人各在一到三份里。第一个错在把位置当排名,16.2 已经走过,而且黑格曼根本不在 2005 年那篇的作者里;第二个错在把想法的先后当标准,16.1 已经走过;第三个错在以为存在一个排名,四份不同的三人名单就是反例。
选第一个和第二个的,前两节已经把那两堵墙走过了。选第三个的,需要一个对照:先不争谁更重要,把已经公布的几份名单并排放在一张表里。
| 人 | 2013 Brain Prize | 2018 盖尔德纳 | 2020 邵逸夫 | 2021 拉斯克 | 2026 诺奖 | 入选次数 |
|---|---|---|---|---|---|---|
| 黑格曼 | ● | ● | ● | ● | ● | 5 |
| 戴塞洛斯 | ● | ● | — | ● | ● | 4 |
| 纳格尔 | ● | — | ● | — | ● | 3 |
| 博伊登 | ● | ● | — | — | — | 2 |
| 米森伯克 | ● | — | ● | — | — | 2 |
| 班贝格 | ● | — | — | — | — | 1 |
| 厄斯特黑尔特 | — | — | — | ● | — | 1 |
| 名单人数 | 6 | 3 | 3 | 3 | 3 |
表要竖着读,也要横着读。竖着读,每一列是一个奖截出的一段,只有 2013 年那一列满满六个。横着读,黑格曼五个奖全在,戴塞洛斯四个,纳格尔三个,博伊登和米森伯克各两个,班贝格和厄斯特黑尔特各一个。没有哪个顺序能把这些列叠成一份从大到小的排名:2021 年有厄斯特黑尔特,2026 年没有;2026 年有纳格尔,2021 年没有。名单是从同一张更大的名单里,一次一次截出一段。
按表 16-1,列出入选次数最多的两个人,以及五份名单中人数最多的那一份。再看 2018、2020、2021、2026 这四份三人名单,各取了谁。
变式:假如只看这五份名单,能不能说黑格曼是这项工作里贡献最大的人?入选次数能回答什么,回答不了什么?
五个奖里,本站读到授奖词的有三个。授奖词写的是什么,和名单里有谁,放在一起读,规律就出来了。
| 奖 | 授奖词的意思 | 本站对照后读出的路段 |
|---|---|---|
| 2020 邵逸夫奖 | 让大脑里特定的神经网络可以被远程控制的发现 | 用光等手段远程控制指定的神经元,包括 ChARGe 一类的路线 |
| 2021 拉斯克基础医学奖 | 发现了能激活或沉默单个脑细胞的、对光敏感的微生物蛋白,并用它们发展出光遗传学 | 微生物蛋白这一头,加光遗传学这一头 |
| 2026 诺贝尔奖 | 以表彰他们在光门控离子通道和光遗传学方面的发现(中新网译法) | 通道这一头,加光遗传学这一头 |
2020 邵逸夫奖:米森伯克、黑格曼、纳格尔
授奖词讲让特定的神经网络可以被远程控制。名单里有 2002 年做 ChARGe 的人和找出通道的两个人。
2021 拉斯克奖:戴塞洛斯、黑格曼、厄斯特黑尔特
授奖词从微生物蛋白讲到光遗传学。名单里有细菌视紫红质的发现者之一厄斯特黑尔特,通道的发现者之一黑格曼,和戴塞洛斯。
差别在:两份名单都是三个人,只共用了黑格曼一个,授奖词写到的路段不同,名单也就跟着不同。
拉斯克的授奖词从微生物蛋白讲起,名单里有 1971 年报告细菌视紫红质的厄斯特黑尔特。邵逸夫的授奖词讲远程控制神经网络,名单里有 2002 年做 ChARGe 的米森伯克。诺奖的授奖词讲光门控离子通道和光遗传学,名单里有找出通道的黑格曼和纳格尔,以及戴塞洛斯,第 9、14 章里 2005、2007、2012 年的几项工作,他都是作者之一。每一次,授奖词先圈出一段路,名单再从圈里取人。这是本站对着公布的文字做的读法,评审内部怎样商量,公开材料里没有。诺贝尔奖按规则每项最多三个人,六个人进不了同一份名单,截是必须的,从哪里截,要看授奖词圈的是哪一段。表 16-2 里没有 Brain Prize 和盖尔德纳,是因为本站没有读到它们的授奖词。
本站读到的几篇今天的报道,包括美联社、路透社、STAT、Keystone-SDA 和 Business Today,稿子里都没有出现博伊登、班贝格、米森伯克、厄斯特黑尔特的名字。博伊登本人今天的表态,本站没有读到。
假设 2027 年有一个新奖,授奖词的意思是「发现了让神经元对光有反应的第一批遗传工具」。对照表 16-1 和本章讲的几段路,你预计名单会从哪几个名字里取?说出依据,也说出你的预计可能错在哪里。
变式:新奖的授奖词改成「发现了微生物视紫红质这一家蛋白」,预计的名单会往哪一端移?
打个比方
一场接力赛只给一个人发金牌,这件事好懂。但这里不是接力,没有一个人跑完把棒交给下一个人。更像几支队伍在不同的路段同时修路,各修各的,最后路连上了。奖像是在这条路上只能挂三块牌,每块牌挂在哪一段,取决于这一次想纪念哪一段路。
类比失效处:修路的队伍各干各的,用不着彼此的材料,这里却有交接,2004 年 3 月戴塞洛斯拿到的 ChR2 基因,是纳格尔给的(博伊登 2011 年的叙述)。修路的队伍知道自己在修同一条路,这里却不是:黑格曼与纳格尔 2013 年的回顾开头写,他们十年前设计和做实验时,没有想到研究藻类趋光、古菌的光驱动离子运输,会引起医学期刊读者的兴趣。路修通以后路面上看不出谁修了哪一段,论文里却写得出来,所以这个比方只能解释名单为什么是截出来的,解释不了每一段路各自值多少。
有人说:米森伯克 2002 年的 ChARGe,已经用光控制了神经元,2026 年的诺奖名单漏掉了他。请写一段回应,用到下面三样东西:第 4 章讲的三把尺子,想法的先后,名单与授奖词的关系。再说出,你的回应回答不了的那一部分是什么。
变式:把句子改成「博伊登 2005 年是论文第一作者,名单漏掉了他」,三样东西里哪一样要换成 16.2 的道理?
自己推一遍:从一段历史到一份名单
把 2000 年到 2007 年的工作拆成几步,哪几步缺了它,后面的步骤就做不成?
想好了再看
至少三步:先有一个只要一个基因就受光开关的分子,以及它直接受光开关的证明(2002、2003 年,卵母细胞里);再有它在哺乳动物神经元里能用的证明(2005 年及同期几篇);再有整套能用在活动物身上的办法(2007 年前后的光纤、基因选细胞、抑制)。第一步缺了,后面没有东西可装;第二步缺了,第三步没有可靠的基础。
对每一步问:材料里有几个组各自独立走过它?
想好了再看
第一步的序列,三个组各自独立找到(Boyden 2005 引言引用的 Nagel 2002 与 2003、Sineshchekov 2002、Suzuki 2003),把它证明成通道的是纳格尔和黑格曼、班贝格的合作。第二步,2005 到 2006 年有五篇用 ChR2 的论文,来自不同的组。第三步,博伊登与戴塞洛斯两边的组差不多同时做出盐视紫红质抑制。一步里有多少独立的组,本身就是判断,不是查表能得出的数。
一个奖的授奖词,圈进了哪几步?
想好了再看
授奖词里的词,对着步骤去找:「光门控离子通道」对第一步,「光遗传学」对第二、三步。拉斯克的「微生物蛋白」再往前对到 1971 年的起点。
三个名额按什么填进圈里?圈外的人为什么不能说成做得少?
想好了再看
名额按圈里的步骤取人,名额不够时,圈里也会有人落在外面,所以每份名单都是一次截取。圈外的人,可能落在另一个奖的圈里,也可能不在本站核对的任何一份名单上,比如潘卓华 2006 年的视网膜工作,他的名字没有出现在表 16-1 的五份名单里。落在圈外,说明不了那一步做得多还是少。
答辩:如果我是审稿人
诺奖只给三个人,会不会让大家误以为科学是少数天才的事?
参考防守(先自己组织语言再看)
要看读者拿名单当什么。如果把名单当成做出这件事的全部人,会误解:这一章里,2005 年那篇论文约一半的实验是在钱永佑的实验室做的,他不在作者名单里,序列由不在任何一份获奖名单上的卡特里亚找到,2005 到 2006 年有五篇来自不同组的论文,这些人在三个人的故事里都消失了。另一面,本站读到的授奖词只写了发现,没有对科学怎样运作下断言,名额由规则限定,同一项工作从六个人到三个人,名单自己就在显示它可以怎样变。如果把名单当成评审从这件事里截出的一段,就不会误解。这一章把同一项工作的五份名单摆在一起,用意就是让名单被当作后一种东西读。
16.5 同一天的两条新闻对不上,怎么核?
今天的新闻里就有一处对不上:STAT 写三位获奖者是 55、72、73 岁,美联社和路透社写的是 54、71、73 岁。要写稿,最快的办法是打开手边第一个页面,照抄。这条路走下去,抄了 STAT,戴塞洛斯和黑格曼就都被多写了一岁,而且读者没有办法发现,页面上看不出这个数从哪里来。
那就多抄几家,哪个数出现得多用哪个?这条路走得远一点,也撞墙:数页面,数到的是转载站,数不到消息的来源。本站读到的美联社稿,是 click2houston 转载的,路透社稿是 KFGO 转载的。一家通讯社的稿子被十个站转载,十个站写的数一致,来源仍然只有一个。
三家网站写了同一个年龄,所以这个年龄一定对。请构造一个具体情形,使得三家写得一致,数却是错的。
变式:怎样判断两家稿子的来源是不是互相独立?页面上的哪些线索能帮上忙?
下面我把核对的过程说出来。我先问这个数最早是谁写的。美联社和路透社是两家不同的通讯社,各发各的稿,两家都写 54、71、73,这一条比页面的数目更有分量。STAT 写 55、72、73,和它们不同,我先不下结论,转去用自己能算的东西来验。出生日期,英文维基百科写戴塞洛斯是 1971 年 11 月 18 日,黑格曼 1954 年 12 月 11 日,纳格尔 1953 年 8 月 24 日,Tagesspiegel 给出的出生年份 1971、1954、1953 与之一致,年份有两个来源。2026 年 10 月 5 日这一天,按生日算岁数(没过生日就还是上一岁,这叫周岁),戴塞洛斯的生日 11 月 18 日没到,是 54 岁;黑格曼的 12 月 11 日没到,是 71 岁;纳格尔的 8 月 24 日已过,是 73 岁。算出来是 54、71、73,和两家通讯社对上了。
STAT 的差一岁还有一个能对上的解释:它的三个数 55、72、73,恰好等于 2026 减去出生年份。这能解释它怎样错,却证明不了 STAT 真是这样算的,所以我把它记在旁边,不写成结论。
假设另有一家中文媒体写纳格尔 74 岁。照上面的顺序走一遍:你每一步做什么,会得到什么?再想想,中文里有没有一种算岁数的习惯,能让 74 说得通?
变式:按虚岁算,戴塞洛斯和黑格曼各是几岁?它们和 STAT 写的 55、72 一样吗?这对 STAT 的差一岁说明了什么?
第二处对不上,是委员会主席斯文宁松的话。最早的出处应该是诺贝尔奖官网上委员会自己的新闻稿,本站没能打开那个页面。手里几家稿子的英文写法至少有两种。这些页面又是经过一道摘要才读到的,引号里的字词,本站自己也保证不了逐字。所以我不把它写成引号里的原话,只写大意:光遗传学让我们能用过去只能梦想的方式绘制大脑的图谱。大意几家一致,字词不一致,转述刚好站在一致的那一层上。
| 项 | 一种写法 | 另一种写法 | 本站的处理 |
|---|---|---|---|
| 年龄 | STAT:55、72、73 | 美联社、路透社:54、71、73 | 用 54、71、73,按出生日期推算与之一致 |
| 主席的话 | STAT、Business Today、IANS 的英文写法,意思是光遗传学提供了机会,方式是我们曾经只能梦想的 | Keystone-SDA 英文稿的写法,意思是光遗传学打开了可能,方式是我们过去只能梦想的 | 只写大意,不加引号当原话 |
核对顺序:先问这条数最早是谁写的,找原稿,不数转载;再看几家说法是不是互相独立;最后拿一个自己能算的东西去验。原话核不到逐字,就写成转述,不加引号。
有人把斯文宁松的话写成一句引号里的英文,来源是其中一家的稿子。这样写哪里不稳?请改成一句本站可以用的话。
变式:假设你拿到了官网新闻稿,原话与某一家的写法逐字相同,这时引号可以用了吗?还需要补什么?
对你而言未知戴塞洛斯本人怎么讲这段历史?
本章讲谁先想到、谁做了哪一步,用到的当事人叙述主要是两份:博伊登 2011 年的回顾,和黑格曼与纳格尔 2013 年的回顾。戴塞洛斯本人也写过历史回顾,Deisseroth 2015,Nature Neuroscience 18:1213,和 Deisseroth 2011,Nature Methods 8:26,都在 PMC 上,本站没有读到全文。所以博伊登那一边的叙述,这一章里没有对照。答案存在,只是不在本站的材料里。
先做这一步:在 Europe PMC 里按期刊、卷、页码找到这两篇,读完后做一张对照表,把同一件事(2000 年春的讨论、2004 年 3 月拿到基因、2005 年那篇论文)在博伊登 2011 年的叙述和戴塞洛斯的叙述里怎么写,一栏一栏放在一起,标出两边一致的、只有一方提到的、说法不同的。读的时候记住,它们都属于证据四档里的当事人回顾。
给虚拟实验台加一份出处表
为什么现在才加:前十五级往台上放了很多数:τoff、暗中恢复时间、光在组织里的散射系数 S、光纤的数值孔径 NA、算 ECl 用的胞内外氯浓度。每一个数都在某一章里「查到了」,可一个数当初从哪里来,现在没有人记得。这一章看到,同一份材料里的数,证据强弱可以差得很远,所以台上每个数旁边都要有它自己的出处。
难点:等级不是写一次就完的。第一,等级跟着你读到的那一份走:同一个数,从 A 级的论文抄进 C 级的综述,等级就变了,表里记的是你自己读到的那一份。第二,算出来的数继承输入的弱点。ECl 用能斯特公式算,公式没有问题,可胞内 5 mM 是 Chamma 2012 转引 Khirug 2008 与 Tyzio 2008 的,胞外 120 mM 是 Doyon 2011 模型里的假设,这个数不能比它的输入更可靠,所以备注里要把输入各自的出处和等级列出来。第三,有些数找不到出处,不能随手填一个等级。「ChR2 约 1 mW/mm² 就能激活」在文献里通行,Schmid 2016 自己写的是「假设」,本站核对过的两篇被引的论文 Bi 2006 和 Ishizuka 2006,摘要里都没有这个数,表里这一行的等级栏要写「找不到出处」。
自己验:从表里随机挑三个参数。挑到 τoff,应当查到 9.5 ± 2.8 ms,出处 Mager 2018 表 1,A 级。挑到 ECl(胞内氯 5 mM),应当查到约 −84.9 mV(37 °C),等级 D,备注里列出胞内 5 mM 与胞外 120 mM 两个输入各自的出处和等级。挑到「ChR2 激活阈值 1 mW/mm²」,应当查到「找不到出处」。三个都能查到出处和等级,这一级才算成了,查不到的那一个就是你实验台的漏洞。再反向验一次:把表里 τoff 那一行删掉,audit 应当只报 τoff 一条,其余不报。
读的时候要小心:这一章几处说法的出处
「诺贝尔奖每项最多三人」依据的是维基百科 Nobel Prize 词条,章程原文本站没有核对,所以正文用「按规则」的语气。表 16-2 里三份授奖词的中文是本站转述的,邵逸夫奖来自牛津大学神经回路与行为中心的新闻,拉斯克奖来自拉斯克基金会的页面,Brain Prize 和盖尔德纳奖的授奖词本站没有读到。第 16.1 到 16.3 节里关于 2000 年春的谈话、2004 年 8 月 4 日的记录、哪个组什么时候拿到基因,出自博伊登 2011 年和黑格曼与纳格尔 2013 年两份当事人回顾,是亲历者的记忆,各讲各的一条线。潘卓华的经历出自 STAT 2016 年的报道,本站没有读到论文以外的原始记录。本站读新闻页面时经过一道摘要,所以引号里的新闻原话,本站都不当逐字材料用。
留给你的问题
2013 年 Brain Prize 的六人名单,如果按本章讲的几段路分成几组,你会分成几组,每组放谁?下一个奖的授奖词只圈其中一段,你怎样预测它的名单会怎样变?
不看材料,写下这一章的三堵墙
第一堵:谁第一个想到,奖就给谁。想法在 2000 年代初已经在空气里,2002 年的论文就写下了它,稀缺的是一个只要一个基因、毫秒级、能在哺乳动物神经元里直接工作的分子,加上把它变成整套办法的一串工作。第二堵:第一作者就是主要发现者。作者顺序记的是分工和惯例,同样两个人在 2002 和 2003 年两篇论文里末两位换了一次,位置读不出功劳大小。第三堵:一个奖的名单就是定论。2018、2020、2021、2026 四份三人名单没有两份相同,每个奖先由授奖词圈出一段路,名单再从圈里取人。
第17章 终极闯关:这个奖没告诉你的事
同一批细胞,「激活」两个字怎么读,数出来的个数就不一样
开篇故事第 17 集 · 七十个细胞,四层都错了一束蓝光的十八天
光台总装的最后一行跳出来一个数,70,大屏下面紧跟着一行淡蓝色的小字,说六层复核里有四层没有通过。
开营第一天,营地的大屏上直播过诺贝尔奖的公布,十六天之后,同一块大屏挂着结营闯关的最后一道题:把前十六天学的东西在光台上接成一次完整的实验,每人守一层,输出一个带数字的预期。选细胞和挑工具两层,岑老师留给了自己。她只定了一条规矩,错的那一层越靠上游,下面各层就跟着错得越多,答辩也就越晚上场;先上场的人先挑开放课题,最后一个上场的人,要替全营答终极答辩那一问。
开跑之前,四个人抽签领了各自的层。蓝光过敏抢到算光,说光开到十倍,深度也该深十倍。衣藻本藻领到开关和神经元,说原文写频率越高放电概率越低,模型也是越快越少,趋势一样就算验证过了。电极老炮领到对照,说荧光对照组只要把峰值光强调得和实验组一样,就没有人挑得出毛病。许一舟领到读数,他把“ChR2 约 1 mW/mm² 就能激活”填进了参数栏,落在光里的细胞一个个数过去,每一步都有算式。
岑老师没有先看那个 70,她在三层前各停了一下。她把出纤光强拨到十倍,台面上那束蓝光亮得人直眯眼,深度刻度却只往下挪了一小截;她把模型的放电个数和图上读出的数摆在一起,两排数字只有下降的方向一样;她把对照组的脉冲串叠到实验组上,两条光强线差出了整整一截。
系统提示第二层算光未通过:出纤光强提到 10 倍,阈值线走到的深度只多了 2.7 倍,光强和深度并不同比例变化。
系统提示第三层开关和神经元未通过:模型和实验只对上了趋势这一层,个数是从图上读出的约数,形状一个陡一个缓,不能说成已经验证。
系统提示第六层对照未通过:对照组只把峰值光强调得和实验组一样,脉冲却是 40 Hz 对 5 Hz,整串脉冲的平均光强差了 8 倍,没有排除光本身。
最后她停在许一舟的读数层前:“你的 70,是光强不低于 1 的细胞个数。现在把‘激活’改成二十个脉冲各放出一个动作电位,同一批细胞,你觉得还剩几个?”许一舟看着自己写满一页的算式,说光没变,深度没变,细胞也没变,顶多少一两个,应该还在 70 附近。
读数重新跑了一遍,台面上亮着的细胞从深处一排一排暗下去,计数器停在 39。岑老师又连着拨了两次读法,数先跳成 100,再跳成 26。“同一批细胞,四种读法,数出来是 100、70、39、26。”她说,“读成光强线,数的是光;读成放电,数的是光、开关和神经元合起来的结果。阈值落在哪里,由这三样一起决定,一个分子说了不算。”许一舟这才想起,出处表里那一格昨晚他亲手画过问号。
系统提示第四层读数未通过:「ChR2 约 1 mW/mm² 就能激活」找不到原始出处,只能当约定使用,数字旁边必须写明读法和表达量。
系统提示总装复核结束,按出错的层从下游到上游排出答辩顺序:电极老炮第一个,许一舟第二个,衣藻本藻第三个,蓝光过敏最后一个。
岑老师把总装的层一层一层关掉:“墙上写着在光台里错一万次,你们今天每人只用掉了一次,真的实验室里,每个数旁边都要先写出处。”蓝光过敏把遥控器往桌上一放,那句光开大一点不就行了,这回一个字也没说出口。岑老师给每个人发了一张答辩卡,蓝光过敏的那张只有一行字:新闻稿说光遗传学让我们能用过去只能梦想的方式绘制大脑的图谱,请你逐条回答,它证明了什么,没有证明什么,哪一句话你自己也不敢写。光台熄灯之前推送来一条通知,是明天上午的结营答辩,蓝光过敏把卡翻过来又翻回去,没敢点开。
系统结算 · 本章考点
- 「ChR2 约 1 mW/mm² 就能激活」找不到原始出处,只能当约定使用;同一批 100 个 A 类细胞,四种读法数出 26、39、70、100,阈值由光、开关和神经元一起决定,要写明读法和表达量
- 把出纤光强提到 10 倍,阈值线走到的深度只多 2.7 倍
- 模型和实验只对上了趋势一层;个数是从图上读出的约数(19、16、7、4),形状一个陡一个缓,不能说成复现了图 3b
- 对照组要匹配整串脉冲(频率、脉宽、峰值):5 Hz 平均 0.5 mW/mm²,40 Hz 平均 4 mW/mm²,只让峰值相同,两组吃到的光差 8 倍
- 总装按选细胞、算光、开关和神经元、数放电、挑工具、设对照六步接线,「响应」要写成参数,没有三态参数的工具要报告「没法仿真」
- 终极答辩要分层回答:证明了的有四层,没有证明的也有四层,每一层都要回到材料里找依据
奖项公布那天,新闻稿讲的是这件事有多好:一个开关,一束光,毫秒之内让指定的神经元听话。前十六章里,你把它拆开走了一遍,手里有了会放电的神经元、会累的光开关、会变暗的光,和一份挑开关的表。这一章问新闻稿没有问的事:这些数里,哪些真有人量过,哪些是借来的,哪些谁也没量过。问完以后,你拿前面所有的东西做一次完整的实验设计,再带走几个今天就能动手的问题。
学完这一章你应该能做到
- 对一条「存疑」,说出它该归入已推翻、可推出、真没说里的哪一种,并写出依据
- 解释为什么「约 1 mW/mm² 激活 ChR2」不是分子的性质,并用本站模型数出同一批细胞在四种读法下差多少
- 说出一个「第一个」最多能被证明到哪一步
- 面对两个对不上的数,先问哪一个会让答案动得最多,再去追它
- 对一个没人量过的参数,把它挪过材料承认的范围,看结论翻不翻面
- 把前十六级接成一次完整的实验,给出带数字的预期,并说出哪一级的数撑不住
这一章给虚拟实验台装最后一级,不加新部件,只加一根接线:从选细胞开始,经过算光、开关、神经元、挑工具,一直到设对照,把前十六级串成一次完整的实验,输出一个带数字的预期。接完以后,哪一级的数撑得住整条线,哪一级的数一动整条线就跟着动,你会亲眼看到。
17.1 折叠框里写着「本站没有核对」的一句话,怎样查成三种结局?
第 4 章的折叠框里有一行小字:药物那一行是定性的道理,没有对应的论文数据。读到这里,很容易以为事情说完了,既然没有数据,就不用,也不讲。
走一遍这条路,会发现「没有数据」可能是两件不同的事:材料里真的没有,或者材料里有,只是当时没有人找到。前一种可以放心不讲,后一种不讲就丢了一块。全站的折叠框和研究笔记里一共留下了 52 条这样的存疑,这一章把它们逐条回到材料里走了一遍。
每一条先问三个问题,顺序不能换。第一问,材料里有没有人明说,有就找到那一句,记下它在哪一篇、哪一节。第二问,没有人明说,能不能从明说的几句推出来,推得出就把推导写下来。第三问,两条路都走不通,这一条才是真没说。
三种结局:已推翻,指原先写的「查不到」不成立,材料里明说了;可推出,指没有逐字的话,但能由明说的几句推出,推导写得出来;真没说,指材料里没有,也推不出。只有第三种,才是新闻稿没告诉你的事。
第 4 章的折叠框写过,药物的速度没有对应的论文数据。后来在 Han 与 Boyden 2007 的引言里找到一句:靠化学物质递送和冲洗来失活神经元的方法,诱导和撤销的时间至少是几分钟到几小时。这一条该归入三种结局里的哪一种?
变式:如果这句话只出现在一篇综述里,综述写的是「据报道」,结局还是已推翻吗?
下面是这一章实际查过的四条(表 17-1),其中三条被推翻,一条走到了第二问。
| 原先写的 | 去哪里查 | 结局 | 依据 |
|---|---|---|---|
| 药物慢,没有论文数据(第 4 章) | Han 与 Boyden 2007 引言 | 已推翻 | 靠化学物质递送和冲洗的方法,诱导和撤销至少要几分钟到几小时 |
| 电极连路过的纤维一起刺激,没有逐字出处(第 1 章) | Schmid 等 2016 | 已推翻 | 原文写电微刺激会非特异地刺激路过的纤维 |
| 泵每个光子至多搬一个离子,只有教科书(第 6 章) | Kim 等 2018 引言 | 已推翻 | 原文写这些泵每个光子只搬一个离子,通道是几百个 |
| ChR2 就是衣藻的 CSRB,没有明文(第 5 章) | 坐标文件头、Sineshchekov 等 2002、Boyden 2011 | 可推出 | 文件头写着 SENSORY OPSIN B;CSRB 吸收峰 470 nm、电流慢、低光强处饱和;Boyden 把趋光的视蛋白引到该文。三条各自独立,指向同一处 |
给下面三条各定一个结局,并写出页面上该怎么写。(a)光驱动泵每个光子至多搬一个离子,第 6 章只有教科书的说法;后来在 Kim 等 2018 的引言里读到,这些泵每个光子只搬一个离子,通道则是几百个。(b)ChR2 就是 Sineshchekov 等 2002 里的 CSRB:ChR2 坐标文件头写着 SENSORY OPSIN B,Sineshchekov 等说 CSRB 的吸收峰在 470 nm,Boyden 2011 把驱动衣藻趋光的视蛋白引到这篇论文,没有哪份材料写过这一整句。(c)Nagel 等 2003 里 ChR2 的反转电位:本站只读到摘要,摘要里没有这个数。
变式:如果(b)的三条线索里有一条和另外两条互相矛盾,结局会变成什么?
留下来的存疑里,有一批三问都走不通。后面五节挑其中七条讲,它们有一个共同的样子:新闻稿不会告诉你,可一个读原始材料的人,几乎一定会碰上。
17.2 「约 1 mW/mm² 就能激活 ChR2」,这是 ChR2 的性质吗?
第 11 章让你把「约 1 mW/mm²」写成参数 ITH,用它数过 100 个 A 类细胞里有几个被激活。现在把「激活」换成一件更具体的事:一串 20 个 5 Hz、10 ms 的光脉冲,20 个脉冲各引出一个动作电位才算。这个数主要取决于什么?
答完再看
第二个对。同一批细胞,换一种读法,数就变;同一种读法,换一个表达量,数也变。后面用本站模型把这两件事各数一遍。第一个把阈值当成了分子的名片,第三个忘了光到达细胞以后,还要被细胞自己的开关接住。
第 11 章你算过深度:出纤光强 380 mW/mm² 时,1 mW/mm² 走到 1.40 mm 深,10 mW/mm² 走到 0.515 mm 深。两条线都画得干干净净。可那个 1 mW/mm²,是谁在什么条件下量出来的?
回到材料里找。Schmid 等 2016 年把这个数写成「假设」,并列了四篇文献。其中 Bi 等 2006 与 Ishizuka 等 2006,本站读到的摘要里没有这个数;Aravanis 等 2007 与 Logothetis 等 2010 的正文,本站没有读到。四条路走完,没有一处材料说测到过 1 mW/mm²,第 16 章出处表里这一格写的正是「找不到出处」。
没有出处,也可以先当成一个约定来用。先走一遍,看会走到哪里。把「激活」读成四种意思,数同一批 100 个 A 类细胞:深度取 0.02 × (i + 0.5) mm,i 从 0 到 99,出纤 380 mW/mm²,5 Hz、10 ms 的脉冲,表达量取第 9 章台阶里的 0.38。
四种读法分别是:光强不低于 10 mW/mm²;光强不低于 1 mW/mm²;20 个脉冲各引出一个动作电位;至少引出过一个动作电位。同一批 100 个细胞,数出来的个数从多到少,你觉得怎么排?
答完再看
第二个对,个数是 100、70、39、26。「至少放过一个」最宽,光再弱,第一个脉冲也能让神经元放一个电。「20 个各放」要求神经元每次都过关,而第一个脉冲之后,每个脉冲带来的光电流只剩第一个的四分之一左右,所以它的光强线夹在 1 和 10 之间,落在约 4 mW/mm²。光强线只比较两个数,不看神经元,所以排得最整齐。
| 「激活」的读法 | 数的是什么 | A 类细胞 |
|---|---|---|
| 光强不低于 10 mW/mm² | 光 | 26 |
| 光强不低于 1 mW/mm² | 光 | 70 |
| 20 个脉冲各放一个 | 光、开关、神经元合起来 | 39 |
| 至少放过一个 | 光、开关、神经元合起来 | 100 |
26、39、70、100,四个数都对,差别全在「激活」两个字怎么读。读成光强线,数的是光;读成神经元的反应,数的是光、开关和神经元三样东西合起来的结果。阈值落在哪里,由这三样一起决定,一个分子说了不算。
再动表达量。用第 9 章台阶的写法,把 G_MAX 从 0.30 拨到 0.57,5 Hz 下每个脉冲都放电的最深处,从 0.36 mm 移到 1.44 mm,深了 4 倍。用第 9 章实验室,表达量取默认的 0.45:只数第一个脉冲放不放,光强线是 0.325 mW/mm²;数 20 个各放一个,光强线是 3.91 mW/mm²,差 12 倍。
阈值写成读法和表达量的函数
ITH(读法,表达量):每写一个数,旁边写它用的是哪种读法、哪一档表达量。第一个脉冲放电的线 0.325,每个脉冲都放的线 3.91,两个数并排放着,谁也不会被当成另一个。
阈值写成 ChR2 的名片
「ChR2 约 1 mW/mm² 激活」:一句话把读法和表达量都藏掉了。读的人只会记住 1 这个数,回头拿它去数细胞,从 26 到 100 哪个都有可能。
差别在:数字旁边有没有写明,它是在哪一种读法、哪一档表达量下得到的。
自己推一遍:从一个读数到一个阈值
把「激活」改写成两件能数的事:第一个脉冲放电,和 20 个脉冲各放一个。各自要神经元做到什么?
想好了再看
前一件事只要膜电位在第一个脉冲期间越过放电的门槛一次。后一件事要每个脉冲都越过,包括第一个之后开关已经累了的那些。后者是前者的一个子集,所以它的光强线一定不低于前者。
为什么「各放一个」的光强线,比「第一个放电」的高出 12 倍?
想好了再看
第一个脉冲结束后,一部分通道落进「累」那一态,要慢慢才回来(第 8 章),后面每个脉冲带来的光电流只有第一个的四分之一左右。同样的放电,需要更多的光。光强线是由最难的那个脉冲定下来的。
把这两条光强线换成深度,100 个 A 类细胞里各有多少个被算作激活?
想好了再看
按第 9 章实验室的表达量 0.45,0.325 mW/mm² 在 2.16 mm 深,比整个脑区的 2 mm 还深,100 个全算;3.91 mW/mm² 在 0.80 mm,约 40 个。同一束光,同一批细胞,一种读法说全部,一种读法说不到一半。
一篇论文写:用出纤 380 mW/mm² 的光纤,深度 0.9 mm 的细胞「有响应」。另一篇论文写:同样的光纤、同样的开关,深度 0.9 mm 的细胞「没有响应」。两个说法可以同时成立。请写出两种差别,每一种用一个具体的数说明它会把结论拨向哪一边。
变式:如果两篇论文一篇用 5 Hz,一篇用 20 Hz,结论还会往哪边拨?说出方向和原因。
答辩:如果我是审稿人
文献里人人都用 1 mW/mm² 估算,你却说它没有出处,这算不算吹毛求疵?
参考防守(先自己组织语言再看)
要看追问的是什么。一个约定可以拿来用,条件是用的人知道它是约定。出处缺失本身伤害不大,伤害出在它被写成「ChR2 的性质」的那一刻:读法和表达量这两样决定数的东西,被一句话藏掉了。表 17-2 里的 26、39、70、100 说明被藏掉的东西有多大。所以本站的做法是继续用它,把它写成参数 ITH,旁边写明是约定,再换一个值重跑一遍。这样用一个没有出处的数,结论就不会偷偷依赖它。
17.3 一个「第一个」,最多能被证明到哪一步?
第 5 章留下过一个问题:「受体就是通道」这个想法,是谁在哪一年第一次提出的。几份材料各说各的,当时没有解开。现在要在页面上写一句,你手里的材料能撑到哪一步?
把四份材料各自写的摆在一起(表 17-3),看每一份能证明到哪一年。
| 材料 | 它写的 | 本站能用它证明什么 |
|---|---|---|
| Holland 等 1996 摘要 | 感光分子与通道「紧密耦合,或者构成同一个通道复合体」 | 这个想法不晚于 1996 年已经发表 |
| 黑格曼与纳格尔 2013 回顾 | 把单一蛋白复合体的说法归到 1999 年一篇关于团藻的论文 | 这是它的归属,证明不了此前没有更早的 |
| 拉斯克基金会的介绍 | 说是 1991 年之后 | 没有给出处,证明不了什么 |
| Harz 与 Hegemann 1991 | 摘要里没有这句话,全文本站没有读到 | 读不到,证明不了 |
按表 17-3,页面上能不能写下面三句?(a)「受体就是通道」这个想法是 1991 年提出的。(b)这个想法不晚于 1996 年已经出现在发表的论文里。(c)这个想法最早出现在 1999 年。说出理由,再说怎样才能把(b)往前推。
变式:如果在一份 1988 年的会议摘要里找到了类似的话,页面上那句「不晚于」该怎么改?还要核对什么?
所以页面上最稳的一句是:这个想法不晚于 1996 年已经出现在发表的论文里。「不晚于」之所以能证,是因为只需要找到一份材料;「就是那一年第一次」要证的是此前没有任何一份,这永远找不完。
名字的事同样。「optogenetics」这个词,Boyden 2011 写的是:它在那段时间被造出来,首次用在一篇 2006 年的论文里。那篇论文是 Deisseroth 等人的,有六位作者,其中包括米森伯克。「首次出现在哪一篇」是能查的,「谁造的」要看有没有人说过,材料里没有,署名栏也看不出来。
有人写:「Deisseroth 等 2006 年的论文最早用了 optogenetics 这个词,所以这个词是戴塞洛斯造的。」Boyden 2011 的原话是:这个词在那段时间被造出来,首次用在那篇论文里。请指出这个推理缺哪两步,再写一句本站站得住的话。
变式:如果找到一封 2005 年的邮件,里面某个人写了这个词,它能不能证明「是他造的」?还差什么?
17.4 两个数对不上,先去怀疑哪一个?
第 11 章的深度曲线,出纤光强取 380 mW/mm²,这个数摘自 Aravanis 等 2007 年的摘要。可摘要里还有另外两个数:20 mW 的激光,直径约 200 µm 的光纤。拿它们自己算一遍,得到的不是 380。
纤芯面积是 π × 0.1² ≈ 0.0314 mm²,20 mW 除以它,是 637 mW/mm²,比 380 大 1.7 倍。反过来,380 对应约 11.9 mW,是 20 mW 的 60%。
最顺手的解释是:光从激光进到光纤的时候损失了一部分,耦合效率约 60%。这个解释和数字对得上,可摘要里没有一句话说它。对得上只说明相容,另一种相容的说法是,摘要里取的功率或纤芯不是这一组。材料里没有一句话能在两种说法里挑一个,所以它是假设,不是发现。
第 11 章的函数里,出纤光强取 380 mW/mm² 时,1 mW/mm² 走到约 1.40 mm 深。把出纤光强改成 637 mW/mm²(摘要里功率除以纤芯面积的结果),其余不变,1 mW/mm² 走到约 1.71 mm。深了百分之几?再算:出纤光强仍取 380,把阈值从 1 换成 10 mW/mm²,深度变成原来的几分之几?哪一个动得更多?
变式:要让阈值取 10 的深度回到 1.40 mm,出纤光强要加到多少?提示:光强和出纤光强成正比。
| 动的数 | 取值 | 走到的深度 | 变化 |
|---|---|---|---|
| 基准 | I0 380,NA 0.37,S 10.3 | 1.40 mm | 无 |
| 出纤光强 | 380 到 637 | 1.71 mm | 深 22% |
| 数值孔径 | 0.37 到 0.48 | 1.17 mm | 浅 17% |
| 散射系数 | 10.3 到 12.0 | 1.32 mm | 浅 5.5% |
| 阈值 | 1 到 10 | 0.515 mm | 变成 0.37 倍 |
这张表把「对不上」排了序:出纤光强的争议动 22%,数值孔径动 17%,散射系数动 5.5%,而全表动得最多的,是一个根本没有两个读数可比的数,阈值,一换就是 2.7 倍。该先追哪一个,看的是答案对它有多敏感,和它对得上对不上无关。
先追动得最多的:两个数对不上,先把其中一个换成另一个,看你关心的答案动多少。动得多的才值得追,动得少的写一句话就放下。
第 13 章的选型函数用 e−T/τ_off 与 0.15 的粗筛线比,40 Hz 时 T = 25 ms。Chronos 的 τ_off 有两个数:3.6 ms 与 3.1 ms。ChrimsonR 取 12.2 ms。假设另一个实验室测得 ChrimsonR 是 13.5 ms。分别算出每种情形的剩余比例,说明哪一处「对不上」会改变选型结果,哪一处不会。
变式:把频率改成 20 Hz,ChrimsonR 的两个读数还会翻面吗?
还有一处没有解开:S = 10.3 mm⁻¹,Schmid 写成大鼠灰质的值,另有文献把 Aravanis 的同一批数据说成小鼠皮层,材料里没有第三个来源,所以它只能当一个典型取值。
17.5 一个谁也没量过的参数,会让结论翻面吗?
第 12 章算 ECl 用了两个浓度:胞外氯 120 mM,胞内氯 5 mM。前者是 Doyon 等 2011 年模型里的假设,后者是转引的转引,材料自己写成熟神经元的胞内氯在 5 到 15 mM 甚至更高之间变。两个数都不是量出来的。哪一个取错,更可能把「氯通道抑制」翻成「氯通道兴奋」?
答完再看
第二个对。ECl 取决于胞外与胞内浓度之比的对数。胞外 120 改成 110 或 130,比值只动不到一成,ECl 动约 2 mV;胞内 5 改成 15,比值缩成三分之一,ECl 从 −84.9 mV 变成 −55.6 mV,动了近 30 mV。第一个把「数大」当成了「影响大」;第三个只对了一半:要两个浓度改变同样的比例,才会一样。
第 12 章的实验室里,把胞内氯从 5 mM 拨到 15 mM,氯通道的电流方向翻了过来:5 mM 时是外向,让膜变负;15 mM 时是内向,让膜变正。一个拨杆,抑制就开始变成兴奋。拨杆上的数,是谁量的?
回到材料。胞外 120 mM 是 Doyon 等 2011 模型里设的值;胞内 5 mM 是 Chamma 等 2012 年转引 Khirug 2008 与 Tyzio 2008 的数;本站想核对的教科书浓度表没能打开。材料自己的说法是,成熟神经元的胞内氯在 5 到 15 mM 甚至更高之间。
拿到一个没人量过的参数,不要先问它有没有出处,先看一件事:把它在材料承认的范围里挪一挪,结论动不动。第 12 章实验室的神经元里,氯通道从抑制翻成兴奋的分界约在 ECl −57 mV,对应胞内氯约 14 mM。胞外氯在 110 到 130 mM 之间挪,ECl 只在 −82.6 到 −87.1 mV 之间,离分界还有 25 mV 以上;胞内氯在 5 到 15 mM 之间挪,ECl 从 −84.9 走到 −55.6 mV,跨过了分界。
给它一个出处等级
「胞内氯 5 mM:转引,C 级。」这回答的是这个数靠不靠得住,不回答结论靠不靠它。
把它挪过材料承认的范围
「胞内氯 5 到 15 mM:ECl 从 −84.9 到 −55.6 mV,跨过分界。」这回答的是结论靠不靠这个数。
差别在:一个回答「这个数靠不靠得住」,一个回答「我的结论靠不靠这个数」。两个问题都要问,答案可以相反。
这个分界是本站拼起来的模型里的:6.3 °C 的枪乌贼轴突,加 37 °C 的氯浓度。第 12 章习题把阈值设成 −50 mV,分界对应的胞内氯就在约 18 mM。两处位置不同,所以这里不去读分界的数值,只看一件事:翻面发生在材料承认的区间之内或边上。
要回答「这种氯通道在这类神经元里是抑制还是兴奋」,一个组打算查教科书上胞内氯的浓度,查到一个数就代入 ECl。请说出这个做法漏掉了什么,再写出一个不依赖这个浓度的交叉办法。
变式:同一个脑区里,细胞体的胞内氯低、轴突末梢的胞内氯高,这个交叉办法应该放在哪个部位做?
答辩:如果我是审稿人
你的模型把枪乌贼轴突和哺乳动物的氯浓度拼在一起,分界不对应任何真实神经元,这个翻面还有什么价值?
参考防守(先自己组织语言再看)
价值不在那个分界的数值上。本节拿它回答的是一个比较窄的问题:翻面发生的位置,落在材料自己承认的范围里,还是范围外。落在范围外,没人量过也不要紧;落在范围里,这个没人量过的数就成了结论的开关,必须先测。实验室里约 −57 mV,第 12 章习题里阈值是 −50 mV,两处的分界不同,都落在 5 到 15 mM 甚至更高的范围附近。真实细胞的分界在哪里,这个模型回答不了,那要对真实的细胞去测,第 12 章 12.4 的三步就是为这个准备的。
17.6 模型和实验只对上了趋势,模型的哪些话还能信?
Boyden 等 2005 的正文写:脉冲频率越高,放电概率越低。第 9 章的实验室里,5、10、20、30、40 Hz 的放电个数是 20、20、20、10、1,图 3b 上读出的约数是 19、16、7、4。你觉得这说明模型怎么样?
答完再看
第二个对。趋势有正文的文字,对上了;个数是从图上估的,正文没有,实验室里的个数又随表达量变,没有可比的;形状按读图的约数,实验缓、模型陡,对不上。三件事验证了一件。第一个把一件事的对上说成三件事的对上;第三个把形状的出入说成了趋势的错。
第 9 章末尾,实验室的 20、20、20、10、1 摆在 Boyden 图 3b 读出来的约 19、16、7、4 旁边,下降的方向一样,很容易让人觉得模型已经被实验验证了。
把模型的话分成三层,每一层问一句,实验有没有写。第一层是趋势,频率越高越跟不上,Boyden 的正文写了。第二层是个数,19、16、7、4 是从图上估的,正文没有写,实验室里的个数又随表达量变,这一层没有可比的数。第三层是形状:模型在 5 到 20 Hz 一路满分,30 Hz 掉一半,40 Hz 几乎归零,图上读出的却是一路缓降,这一层对不上。
对上了一层
趋势:频率越高越跟不上。这一句有正文的文字,也有机制:勾掉「累」这一态,各个频率都放满 20 个。
说成「复现了图 3b」
20、20、20、10、1 不是 Boyden 的数,表达量是本站挑的,神经元是枪乌贼的;连第一个动作电位的时刻,实验是 8.0 ms,模型约 2.6 ms。
差别在:对上了几层。趋势一层,个数和形状两层都没有对上。
模型里的数,还要问它是什么身份。开源模型 PyRhO 的默认参数没有文档,不知道是野生型还是 H134R,也不知道什么细胞、什么温度,所以实验室里的 0.63、0.22、9.6 ms 只说明形状和量级。6EID 坐标里,视黄醛有占 70% 和占 30% 的两套位置,30% 那套是整理坐标时的建模选择,还是真有三成分子长这样,文件没有写。读图读出的约数和建模选择,都不是观测记录,表 17-5 把四种身份并排放着。
| 身份 | 例子 | 能当什么用 |
|---|---|---|
| 观测记录 | 第一个动作电位 8.0 ± 1.9 ms(Boyden 2005 正文) | 可以直接对照 |
| 读图的约数 | 图 3b 上读出的约 19、16、7、4 | 只看趋势,不引成数据 |
| 建模选择 | 坐标文件里占 30% 的视黄醛位置;实验室的表达量 | 不能当观测 |
| 本站计算 | 本章的 26、39、70、100 | 公式与参数公开,可复现,换参数就变 |
按表 17-5 把四个数各归入一种身份:(a)第一个动作电位出现在光照开始后 8.0 ± 1.9 ms;(b)图 3b 上读出的约 19 个;(c)坐标文件里视黄醛占 30% 的另一套位置;(d)实验室里 O 的峰值 0.63。
变式:把你自己在实验室里拨出来的放电个数,也放进这张表,它属于哪一种身份?
形状那一层,有一个能在实验室里检验的猜测:模型里每个细胞的表达量一样,真实的细胞各不相同,Boyden 的峰值光电流是 496 ± 336 pA,细胞之间差得很远。表达量一旦散开,一道悬崖就会在细胞群里被抹成缓坡。这只是猜测,材料里没有人检验过,17.9 的第一个开放课题就是它。
答辩:如果我是审稿人
模型和实验只对上趋势,那这个模型还有什么用?
参考防守(先自己组织语言再看)
趋势恰好是模型最擅长回答的一层:为什么高频会跟不上。勾掉「累」这一态,各个频率都放满,说明高频失败的原因在开关这一端,不在神经元那一端。这是一个机制的结论,不依赖个数。个数和形状,模型没有资格回答,那要靠实验。这一节要你做的,是不让一层的证据去替另一层做担保。模型当作机制的草图用,不当预测用。
17.7 前十六章的道理放在一起,你能不看提示做对几道?
前面的题,都有它所在的那一章做靠山。下面九道没有:题干里不写用哪一章,要你自己认出来。提示分四级,一级一级往下看,每多看一级,就记下来。
第 6 章的光子账说,泵要推起同样大的电流,所需的光强是通道的 162 到 9737 倍。第 11 章里,出纤 380 mW/mm² 的光,光强随深度衰减。通道需要的光强取 1 或 10 mW/mm²(两个取值都没有出处),泵按 162 倍或 9737 倍。四种组合里,泵在哪几种里还有可能工作?它最深走到哪里?通道各走到哪里?哪一句结论在四种组合里都成立?
变式:如果把出纤光强提到 10 倍(3800 mW/mm²,不管发热),哪几种组合里泵从「用不了」变成「能用」?
第 13 章的选型函数在 40 Hz、深度 0.5 mm 时,把 ChR2 放进候选,因为剩余比例 e−25/9.5 约 0.07,低于 0.15。第 9 章的实验室里同样是 ChR2,40 Hz、10 mW/mm²(约等于 0.5 mm 深处的光强)、表达量 0.45,20 个脉冲只放 1 个电。两边都是本站的东西,哪一边错了?不换分子,有哪三种办法让实验室里的 40 Hz 回到接近 20 个?每一种对应前面哪一章的哪个量?
变式:脉宽从 10 ms 改成 5 ms,其余不变,选型函数的预测和实验室的结果,哪一个会先变?
一个组把光门控氯通道(第 12 章的通道类)装进某个脑区的神经元,照光后行为被抑制,他们写:「氯通道抑制了这群神经元。」设的三组是:表达氯通道加光、只表达荧光蛋白加光、表达氯通道不加光。第 14 章的检查器会怎么读这个设计?哪一件事它仍然没有排除?再加哪一组,才能回答「这群细胞里氯通道到底是抑制还是兴奋」?
变式:同一个脑区里,细胞体的胞内氯低、轴突末梢的胞内氯高,行为变弱,能不能说成「抑制了这群神经元」?
第 10 章里,一个细胞响应,要同时满足「被光照到」和「表达了开关」。现在把 100 个 B 类细胞(不表达,深度和 A 类相同)加进 17.2 的实验:出纤 380 mW/mm²,5 Hz,10 ms,A 类表达量 0.38。按「20 个脉冲各放一个」读,B 类里响应的有几个?总共响应几个?要回答「装了开关的细胞里,有多大比例在这个深度能被每个脉冲可靠驱动」,该报表 17-2 里的哪个数?有人只用光强线读两类细胞,报告「A 类 70 个、B 类也 70 个响应」,错在哪里?
变式:把 B 类的表达量改成很低但不是零,读法不变,B 类的数还会是 0 吗?用实验室试一试。
第 16 章把 ECl 记成 D 级(本站计算),输入是胞内 5 mM、胞外 120 mM,都不是量出来的。用第 2 章的能斯特方程(37 °C,氯带负电),把胞外在 110 到 130 mM 之间挪(胞内取 5 mM),再把胞内在 5 到 15 mM 之间挪(胞外取 120 mM),各算 ECl 的变化。备注里哪个输入该写在最前面?为什么?
变式:胞内氯固定在 15 mM,胞外在 110 到 130 mM 之间挪,ECl 变化多少?这时两个输入的排序会变吗?
第 5 章里,衣藻眼点光电流的延迟小于 50 µs。第 9 章里,大鼠神经元中第一个动作电位出现在光照开始后 8.0 ± 1.9 ms,本站模型约 2.6 ms。有人想用 50 µs 去解释模型和实验的差。算一算:这个差是 50 µs 的多少倍?这个解释能不能成立?50 µs 这个数本身,能不能直接拿来做减法?
变式:第一个动作电位出现时刻的抖动是 0.5 ± 0.3 ms,它和 50 µs 比,哪个大?这说明什么?
第 1 章的 expand 能生成任意频率和脉宽的脉冲。同样是 10 ms 脉宽、峰值 10 mW/mm²,5 Hz 和 40 Hz 的平均光强各是多少?光子数相差几倍?第 14 章里,只表达荧光蛋白的照光对照组,该匹配的是峰值,还是整串脉冲?为什么?
变式:如果对照组只能用 5 Hz,而实验组用 40 Hz,这个对照还能排除「光本身」吗?
第 11 章你数过:深度 0 到 2 mm 均匀排开的 100 个 A 类细胞,阈值取 1 mW/mm² 时有 70 个在光里,取 10 mW/mm² 时有 26 个。一个组用光纤抑制这一脑区的 A 类细胞(假设工具的光强需求就是这条阈值线),行为没有变,他们写:「A 类细胞对这个行为不是必要的。」这个阴性结果最多能支持多强的话?怎样才能把话说强?
变式:如果同一个实验里行为反而变弱了,结论的力度比阴性结果更强还是更弱?说出理由。
把下面五个时间从短到长排成一行,并指出最远的两个相差几个数量级:(a)ChR2 的 τ_off 9.5 ms;(b)衣藻眼点光电流的延迟上限 50 µs;(c)化学物质递送和冲洗的失活方法的诱导与撤销时间,至少几分钟到几小时;(d)ChR2 在大鼠神经元里诱发第一个动作电位的潜伏期 8.0 ms;(e)ChR2 的暗中恢复 5.1 s。
变式:ChARGe 的「好几秒」放进这条线,会落在(e)的哪一侧?这能不能排出确切的先后?
终极答辩:光遗传学证明了什么,没证明什么
一位审稿人读完你的全部材料,只问一句:新闻稿说,光遗传学让我们能用过去只能梦想的方式绘制大脑的图谱。请你逐条回答:它证明了什么,没有证明什么,哪一句话你自己也不敢写。
参考防守(先自己组织语言再看)
先分层。证明了的有四层。第一层,在装了开关的细胞里,光能在毫秒的尺度上触发放电,第一个动作电位约 8 ms,原文有记录(Boyden 等 2005,第 9 章)。第二层,选细胞的是基因,不是光:光只管位置和时间,哪一类细胞响应,由谁读出了开关决定(第 10 章)。第三层,在清醒的动物身上,只打开一类细胞,足以引起行为的变化(第 14 章的觉醒和冻结两个例子)。第四层,在一个病人身上,开关加护目镜让他检测到物体,单独哪一样都不行(Sahel 等 2021 摘要,第 15 章)。没有证明的也有四层。第一,自然状态下是不是这样:足以不等于自然如此(第 14 章)。第二,数字:1 mW/mm² 没有原始测量,阈值随读法和表达量变(17.2),深度随每一个参数变(17.4)。第三,抑制的方向:氯通道在哪里抑制、在哪里兴奋,要看胞内氯,而这个数没有一处量过(17.5)。第四,一个病人不是一群病人,效果能保持多久,在脑里行不行,材料里都没有(第 15 章)。我自己不敢写的一句,是「光遗传学绘制了大脑的图谱」:材料能支持的是,它让我们能一类细胞一类细胞地问「是它吗」,每次问的是一类细胞在一件事里的作用。图谱是把很多这样的答案拼起来的结果,这一步的证据,不在本站读过的任何一份材料里。
17.8 把前十六级接成一次完整的实验,会得到什么数?
到这里,台上放着十几块东西,每一块单独都验过。接起来还对不对,是另一件事:数怎样从一块流到下一块,哪一块的口径一变,整条线的结果就跟着变。
一次完整的实验按这条线走。先决定哪类细胞有开关(第 10 级),再算光走到每个细胞还剩多少(第 11 级),把剩下的光交给开关和神经元(第 8、9 级),数细胞放几个电,回头问这个工具选得对不对(第 13 级),最后问设的对照排除了什么(第 14 级)。
给虚拟实验台做总装:把前十六级接成一次实验
为什么现在才加它:前十六级一块一块验过,每块都对。可整条线接起来,口径要一致:同一批细胞,从选类型到数放电,用的是同一个深度、同一个光强函数、同一个读法。这一级只接线,不加部件;它还会把 17.2 到 17.6 查出来的几个数,各放回它在线上的位置。
难点有三处。其一,「响应」要写成参数,不要写死。同一批细胞,四种读法数出 100、70、39、26,写死哪一种,就把 17.2 的结论藏起来了。其二,选出来的工具,仿真器里没有它的三态参数,就要报告「没法仿真」。悄悄换成 ChR2 往下算,给出的是 ChR2 的数,却挂着别的名字。其三,B 类细胞也要进仿真,g 等于 0 也要跑,这是第 10 级的老规矩,到这一级它多了一个用处:对照里「没有开关的细胞」就是它们。
自己验:100 个细胞各跑 20 个脉冲很慢,先验两个边界细胞。A 类在 z = 0.51 mm 处光强约 10.2 mW/mm²,respond 里的 n 应该是 20;z = 0.99 mm 处光强约 2.35,n 应该是 2;B 类在任何深度都应该是 0。z = 0.77 mm 的 A 类细胞应该得到 20,z = 0.79 mm 的应该约得到 3,这两格之间就是 39 与 40 的分界。READOUT 取 'full' 时,A 类应该约 39 个(37 到 41 都算对),B 类应该是 0;依次改成 'any'、'line1'、'line10',A 类应该分别得到 100、70、26,B 类仍然是 0。choose(5, 0.5, 'on') 应该得到候选 Chronos、ChETA、ChR2、ChrimsonR、Chrimson,SSFO 出局,理由是「开了不关」;assemble('ChR2') 才往下算,assemble('Chronos') 应该返回没有三态参数。check_design(GROUPS) 应该得到光本身「已排除」、表达本身「已排除」,第三行仍是提醒。再把 FREQ 改成 40,I0 不变:z = 0.2 mm 的细胞应该放约 19 个(18 到 20 都算对),z = 0.5 mm 的应该放 1 个,而 choose(40, 0.5, 'on') 仍然把 ChR2 放在候选里。
总装里,A 类细胞在 z = 0.99 mm 处光强约 2.35 mW/mm²,5 Hz,表达量 0.38。先预测它在 20 个脉冲里放几个电:是 0、2,还是 20?再解释为什么不是另外两个。
变式:把 z 改成 1.99 mm,光强约 0.40 mW/mm²,放几个?先预测,再用台阶 9 验。
17.9 还有哪些问题,真的没有人答过?
新闻稿讲完,读的人很容易觉得这个领域没有问题了。你一路查到的每一处「真没说」,其实都是一个问题。下面三个各标了类型:真未解,是领域里的材料自己写着还没有共识;对你而言未知,是答案已经存在,只是不在本站读过的材料里,或者你今天就能自己算出来。
对你而言未知表达量各不相同的细胞,会把悬崖抹成缓坡吗?
本站模型里每个细胞的表达量一样,5 Hz 的满分在一道深度悬崖上结束;Boyden 实验里峰值光电流是 496 ± 336 pA,细胞之间差别很大。这个猜测,材料里没有人检验过。
先做这一步:第 9 章实验室,5 Hz、10 ms、10 mW/mm²,表达量从 0.30 到 0.60 每隔 0.03 拨一次,记下放电个数;台阶应落在 0.36 到 0.42 之间。再设 100 个细胞的表达量在 0.30 到 0.60 之间均匀分布,算出每个脉冲都放电的比例。
第 9 章实验室里,5 Hz、10 ms、10 mW/mm² 时,表达量低于约 0.37,20 个脉冲只放 1 个;约 0.39 放 19 个;0.40 以上放满 20 个。设 100 个细胞的表达量在 0.30 到 0.60 之间均匀分布。先预测:每个脉冲都放电的细胞占多少比例?再预测:光强改成 30 mW/mm²,放满 20 个所需的表达量降到约 0.33,比例会往哪边变,大约变成多少?
变式:如果表达量都集中在 0.40 附近,分布很窄,群体的曲线会更陡还是更缓?
真未解光开关里「累」的那一态,在分子里是什么?
Becker-Baldus 等 2021 命名了光循环的中间态,其中 P4 与去敏感有关,它在循环里的位置没有共识:一种模型认为它从暗态直接由光产生,另一种认为在开放态衰减时才形成。三态模型里的 D,只是把这个争议包成了一个箱子。
先做这一步:读 Becker-Baldus 等 2021 的摘要,把两种说法各写一行,每行写它预言「光一开」后 P4 比开放态先出现还是后出现;再到第 8 章实验室勾上「去掉累了这一态」,看光电流少了什么。
P4 与去敏感有关,它的位置有两种模型:A 说它从暗态直接由光产生,B 说它在开放态衰减时才形成。有人在光一开的头几毫秒里,同时记录光电流和 P4 的特征吸收。A、B 各预言 P4 相对开放态怎样出现?这样的记录能不能把两个模型分开?还需要什么条件?
变式:第 8 章的三态模型把 D 画在开放态后面(C 到 O 再到 D),它默认了哪一个模型?
对你而言未知「受体就是通道」,白纸黑字第一次出现在哪一年?
1991 年哈尔茨与黑格曼那篇的摘要里没有这句话,1996 年霍兰德等的摘要里有,黑格曼与纳格尔 2013 年把它归到 1999 年的一篇论文,拉斯克的介绍说是 1991 年之后。答案在这几篇的引言和正文里,本站没有逐篇读到。
先做这一步:在 Europe PMC 打开 Holland 等 1996(Biophys J 70:924),读引言,记下它为「感光分子与通道紧密耦合」这个想法引了哪几篇更早的论文,每一篇写下作者、年份、原话,再顺着引用往前追一层。
读的时候要小心:这一章新算的数,和「真没说」指的是什么
本章里 26、39、70、100,0.36 到 1.44 mm,0.325 与 3.91 mW/mm²,1.71、1.17、1.32 mm,0.065 mm,都是用本站的模型算出来的,公式和参数公开,能复现,换参数就变,不是实验测量。第 9 章台阶里的表达量取 0.38,第 9 章实验室默认取 0.45,两处都能让 5 Hz、10 mW/mm² 放满 20 个,细节略有差别,比如各个脉冲都放的细胞,台阶的写法数到 39 个,实验室数到约 40 个,所以正文里写明了用的是哪一个。「真没说」指的是本站读过的材料里没有、也推不出:Aravanis 等 2007 与 Harz 和 Hegemann 1991 的正文,本站都没有读到,手里有全文的人,有可能直接查到。Kim 等 2018 和 Schmid 等 2016 的句子,是本站从全文文本里读到的,引用时请回到原文核对字词。
留给你的问题
挑一个你在前十六章里最信的数,按这一章走:材料里有没有人明说,能不能推出来,都不行,它就是真没说。然后把它在材料承认的范围里挪一挪,你最想保住的那个结论动不动?你挑的那个数会落在哪一种结局,结论动不动?
不看材料,写下这一章的三堵墙
第一堵:「本站没有核对」就是「不能用,也不用讲」。没找到和没有是两件事,三问把它们分开:材料里有没有明说,能不能推出来,都不行才是真没说,这一章走过的 52 条里,5 条被推翻。第二堵:一个数是对象的性质。阈值随「激活」的读法和表达量变,同一批 100 个细胞数出 26、39、70、100;两个对不上的数,该先追让答案动得最多的那个;一个没人量过的参数,要挪过材料承认的范围,看结论翻不翻面,胞内氯从 5 到 15 mM 就翻了面。第三堵:模型和实验对上了趋势,就是对上了。趋势、个数、形状是三层,实验只写了第一层;读图的约数和建模选择,都不是观测记录。